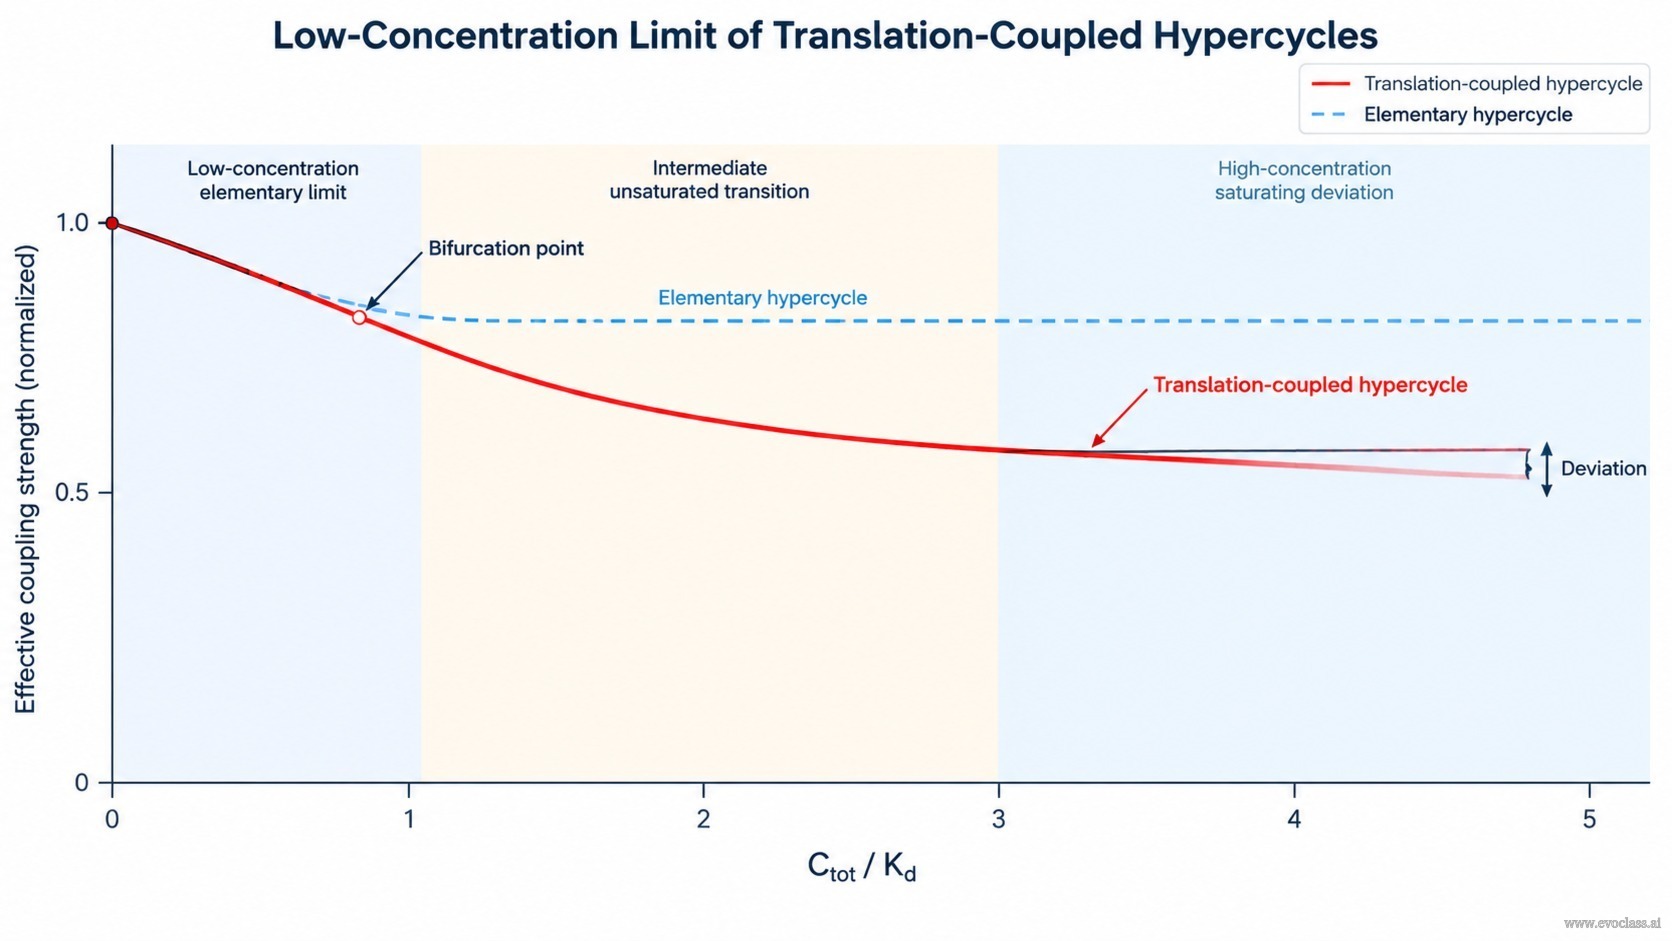
「 翻訳連関ハイパーサイクル」では、各RNAテンプレートは複製されるだけでなく、翻訳されてポリペプチドを生じ、そのポリペプチドは可逆的な複合体形成を通じてRNAに結合し直します。この結合段階は解離定数
なぜ低い総濃度が反応速度論を単純化するのか
RNAとポリペプチドの総濃度が
- 遊離種が支配的。 [複合体]は[RNA]や[ポリペプチド]よりはるかに小さいため、ダイナミクスは結合した物質ではなく遊離種によって担われます。
- 複合体濃度は双一次式。 [複合体] ≈ [RNA][ポリペプチド]/Kd、すなわち二つの遊離濃度の 積 に比例し、どちらか一方だけに比例するのではありません。
- 二次の触媒フラックス。 複合体が触媒であるため、それを介したフラックス kcat[RNA][ポリペプチド]/Kd ≈ (kcat/Kd)[RNA][ポリペプチド] は二次の質量作用項であり、まさに初等ハイパーサイクルが用いる連関の形式です。
実効速度定数と保存されるトポロジー
会合定数と触媒定数はその組み合わせを通じてのみ現れるため、単一の実効速度定数 keff = kcat/Kd に吸収できます。その結果、係数が繰り込まれた初等ハイパーサイクルが得られます。重要なのは、環状の連関トポロジーが保たれることで、各構成要素は依然としてループに沿って次の構成要素の複製を触媒し、この極限では翻訳は独立した動的連関をもたらしません — 速度を再スケールするだけです。このため、初等ハイパーサイクルに対して開発された固定点・安定性・リミットサイクル・誤り閾値の解析は、希薄条件が成り立つ限り、翻訳連関ハイパーサイクルにそのまま適用でき、まさにこの点がこの簡約を選択や誤り閾値の議論にとって有用なものにしています。
簡約が破綻する場合
この簡約は漸近的なものであり、恒等式ではありません。複合体形成が非飽和である間だけ有効です。総濃度が
翻訳連関ハイパーサイクルの低濃度極限翻訳連関ハイパーサイクルの実効結合強度を、無次元の総濃度 C_tot/K_d に対してプロットしたもの。低い値では、実線の翻訳連関曲線は破線の初等ハイパーサイクル参照線と一致します。これは、まばらで非飽和なRNA–ポリペプチド複合体が、実効定数 k_cat/K_d をもつ双一次の触媒フラックスを与えるためです。濃度が高くなるにつれて複合体が飽和し、二つの曲線は離れていきます。