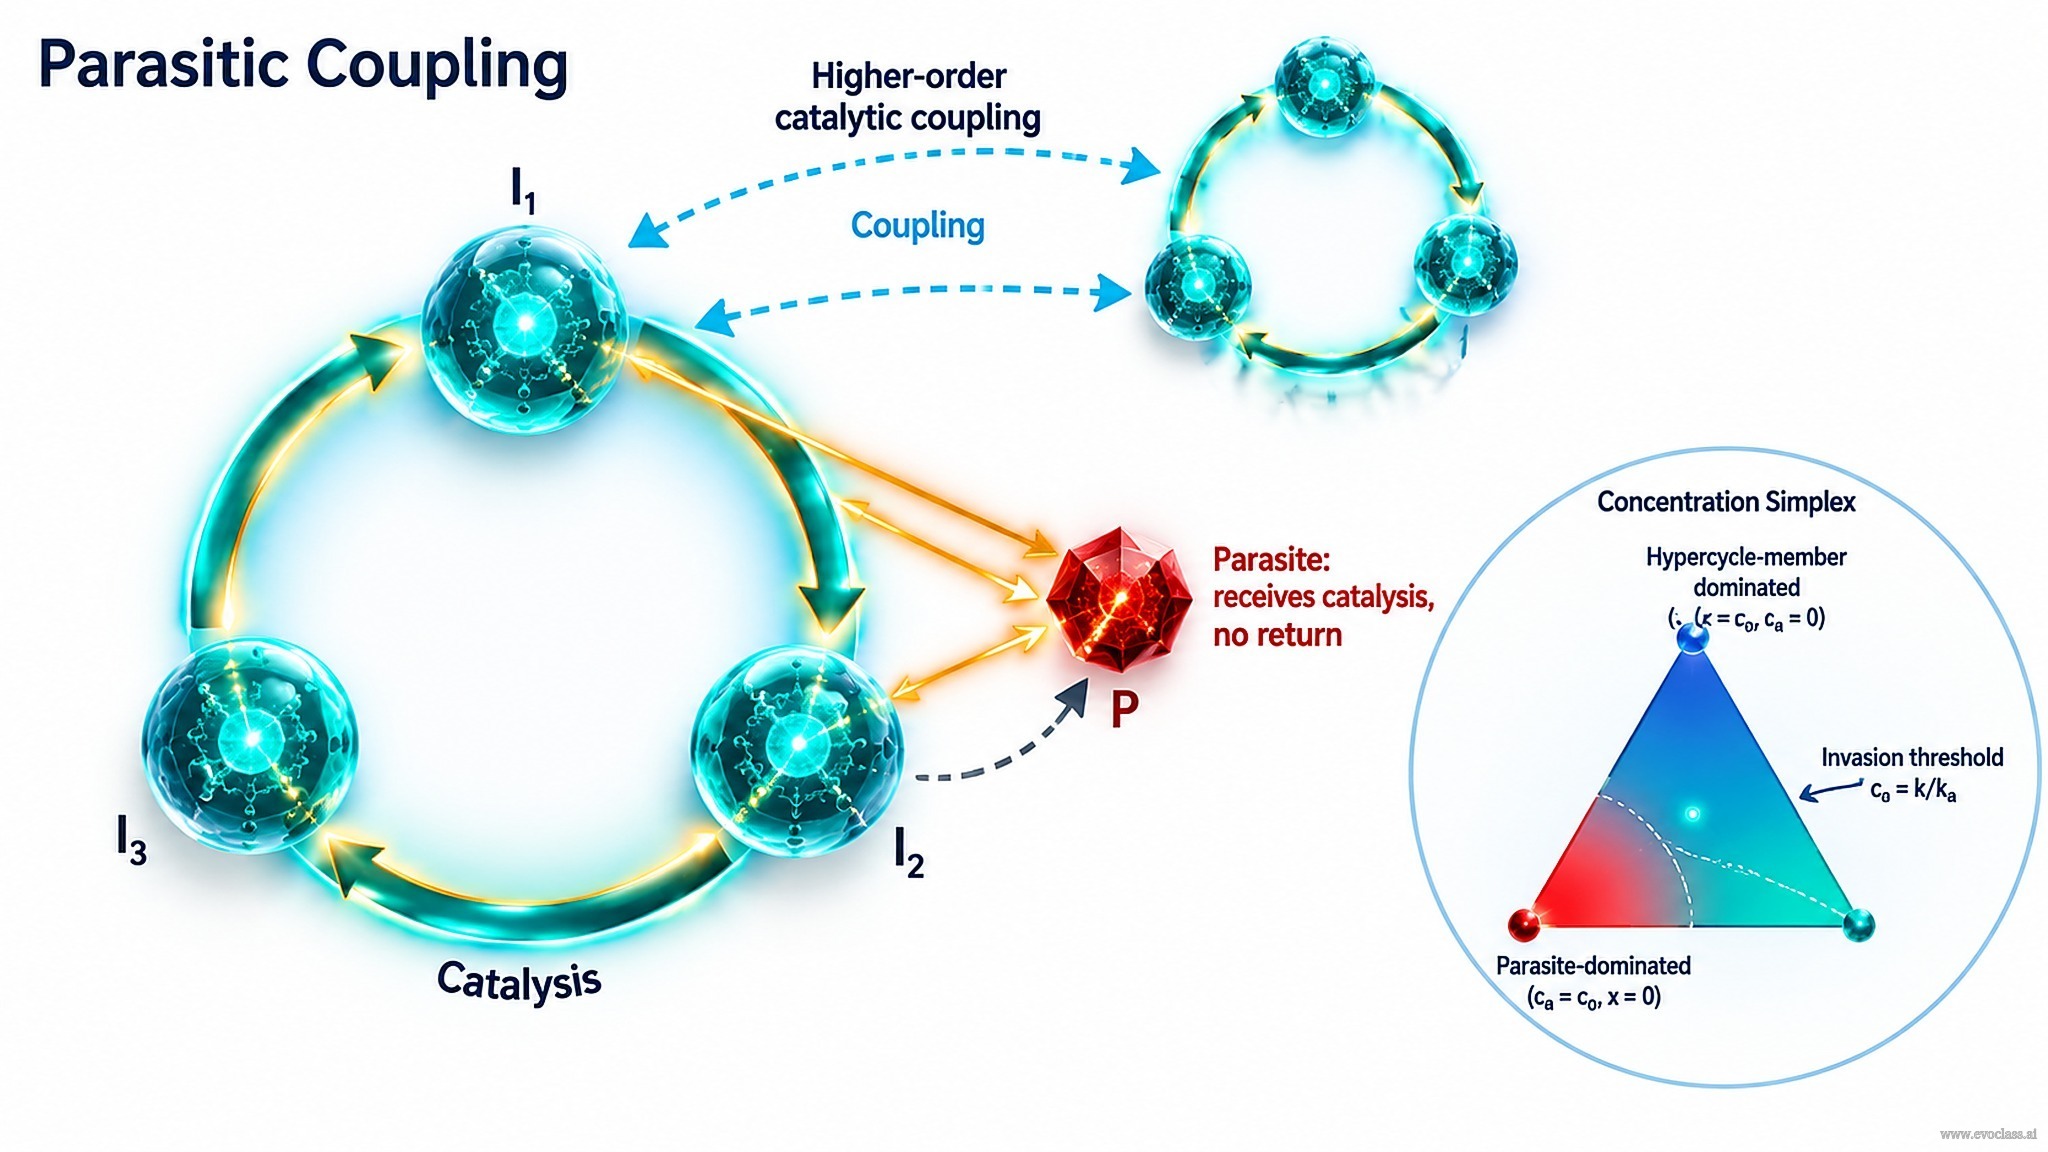
超循環組織 は触媒的閉環を通じて、本来なら競合する複製子を統合するが、寄生体による搾取やエラー閾値・情報量の限界に対して脆弱なままである。高次触媒カップリング——超循環が他の超循環を触媒する——は、この組織を階層的に拡張するが、同時に新たな統合と寄生体の問題を生み出す。
寄生カップリング
A 寄生体 は、超循環の構成要素の1つ以上から触媒的支援を受け取るが、超循環の触媒ループには寄与しない。触媒的支援を返すことなく循環を搾取する。一定の総濃度のもとで超循環の構成要素 x と競合する自己複製的寄生体 A について
ċₐ = kₐ cₐ² − (cₐ/c0)(kₐ cₐ² + k cₐ x)
この系は濃度シンプレックス S のコーナーに2つの固定点をもつ2:寄生体の優位(cₐ = c0、
統合の問題
単一の巨大な複製単位への直接的なライゲーションは、vₘₐₓ の閾値関係により困難である。統合された単位は、さらなる進化を遂げ、自身の特定の情報を失わないために、自身の変異体に対して競争力を保たなければならない。与えられた統合の問いは次のとおりである:「vₘₐₓ の閾値関係により困難である、単一の巨大な複製単位へのライゲーション以外に、競合する分子の統合をどのように構想できるだろうか?(統合される単位は、さらなる進化を遂げ、自身の特定の情報を失わないために、自身の変異体に対して競争力を保たなければならないことに留意せよ。)」
可能な道筋には次のものがある:
- 機能的カップリング:分子が共有結合的な融合なしに触媒的に協力する。
- 区画化:構成要素が有限の体積内にとどまる。
- 超循環組織:競合体が触媒サイクルを通じて統合される。
どの道筋でも、統合された単位が自身の変異体に対して競争力を保てるものでなければならない。
なぜ分離した遺伝子の超循環組織が必要なのか?
単一の巨大なゲノムは、その長さが増すにつれて変異配列の組合せ爆発を蓄積する。100部位の場合、1エラー変異体が100、2エラー変異体が4,950、3エラー変異体が161,700、以下同様である。エラー閾値を超えるとエラーのない複製は不可能になる。超循環組織は情報を分散し、変異モジュール間の選択を可能にし、単一の長いゲノムの維持負担を軽減する。
限界と改善
超循環組織の限界には、寄生体への脆弱性、総情報量に対するエラー閾値の制約、分離した遺伝子間の調整の遅さや非効率さが含まれる。提案される改善や移行には、より緊密な構造的統合、区画化、協力する遺伝子の共分離を保証する単一ゲノムの進化が含まれる。
高次触媒カップリング
高次触媒カップリングは、超循環が他の超循環を触媒するときに生じる。これは統合を単一の循環を超えて拡張するが、新たな寄生・調整・安定性の課題をもたらす。翻訳共役型超循環では、複製をポリペプチド合成にカップリングすることで複合体形成と会合定数が加わり、低濃度・高濃度の極限や飽和動態が同じ統合と寄生体の制約を変化させる。
寄生カップリング超循環のリングが、触媒的見返りを返さない寄生ノードを支え、破線の矢印はある超循環が2番目の超循環を触媒していることを示す。挿入された濃度シンプレックスは、寄生体が優位なコーナー固定点と超循環構成要素が優位なコーナー固定点、および侵入閾値 c を示す