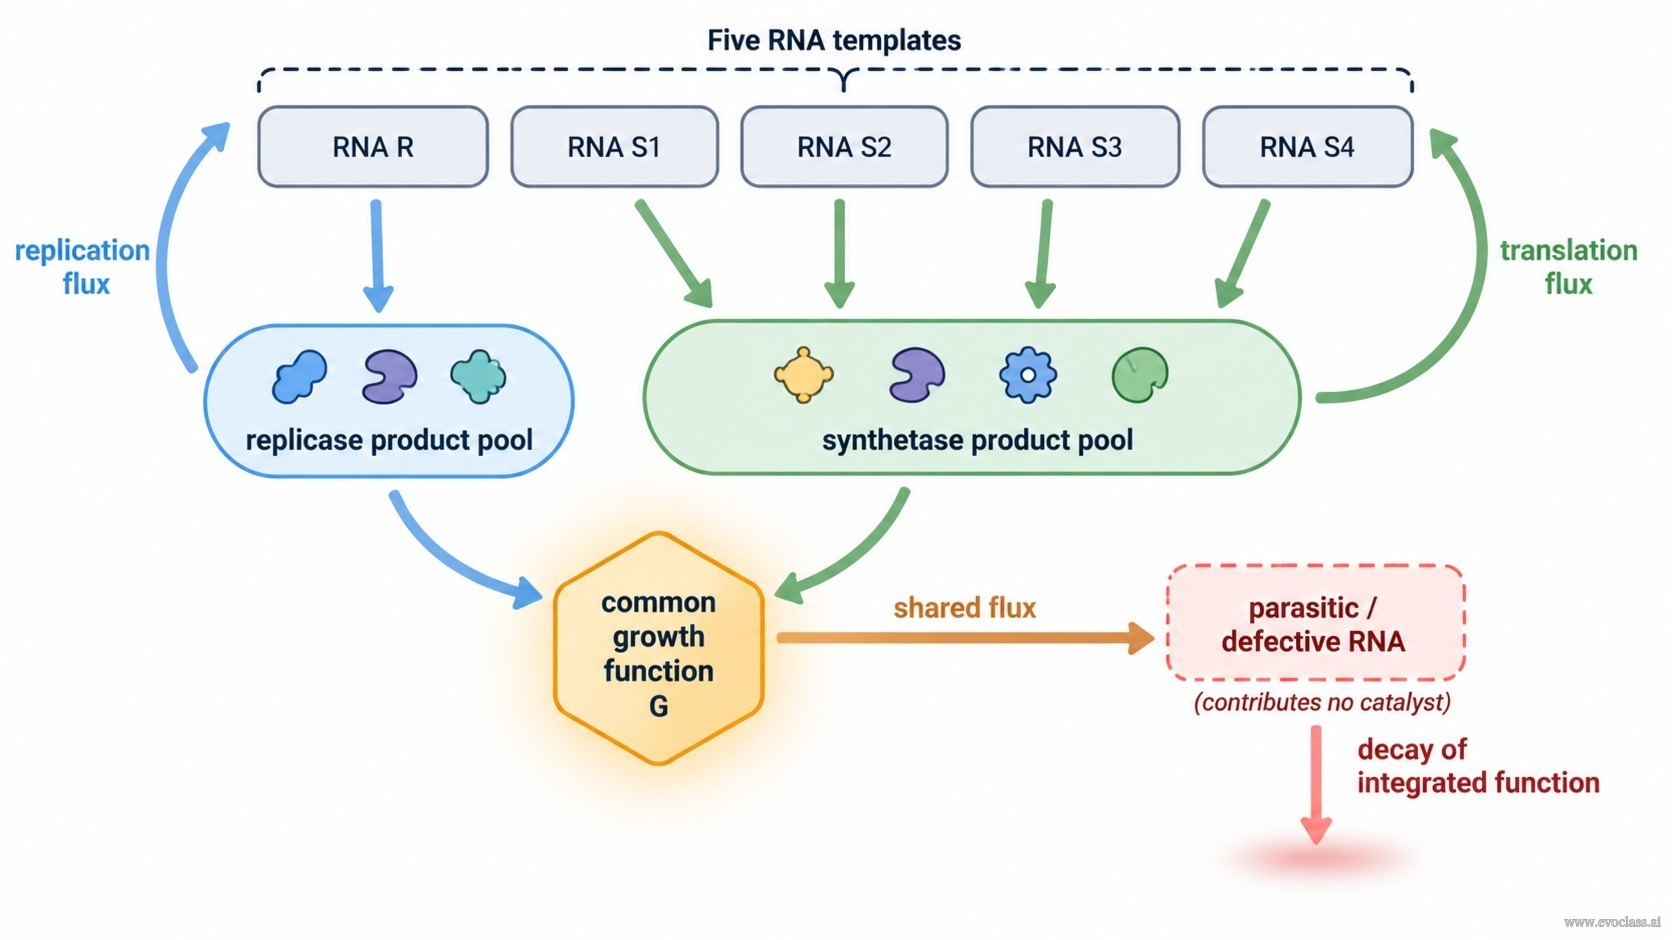
最小レプリカーゼ・シンテターゼ方式 は、具体的な分子モデルとして記述できる最小の翻訳共役ハイパーサイクルです。すなわち、1本の鋳型(R)がレプリカーゼをコードし、4本の鋳型(S1–S4)がシンテターゼをコードするRNA鎖の集合です。これは意図的に単一の自己複製RNAではありません。むしろ、この方式はコンソーシアムであり、同一のRNA集団が複製の鋳型と翻訳のメッセージの両方を供給します。
機能的連関:レプリカーゼ産物は5本すべてのRNA鎖を複製し、シンテターゼ産物はそれら同じ5本の鎖の翻訳を可能にします。同一の集団が鋳型と触媒産物の両方であるため、複製と翻訳は別個のサブシステムではなく相互に共役しています。この共役が最小ハイパーサイクルの構造的核心です。
共有成長への還元:触媒が集合全体に作用するとき、個々の複製項と翻訳項は触媒をコードする鎖に固有のものではなくなります。それらは共有プール項となります。数学的には、共役系はすべての鎖に対して単一の 共通成長関数G に還元されます。各鎖の正味成長は、集合的寄与と相対組成項の和として表せますが、すべての成員が同じ成長フラックスを利用するため、触媒を生産することへの選択的報酬は希釈されます。
崩壊メカニズム:すべての成員が同じ成長フラックスを利用するため、触媒生産を減少または省略した変異体も共有の利益を受け取ります。そのような変異体が、たとえばRNAが短いために速く複製されるなら、レプリカーゼやシンテターゼの活性に寄与することなく相対頻度を増加させることができます。これにより機能的な触媒が希釈され、寄生性または退化した鎖が蓄積されます。したがって、最小方式だけでは堅牢なダーウィン的統合には不十分です。
安定性への含意:崩壊を抑制するには、追加の組織化が必要です。区画化、空間構造、またはハイパーサイクル的閉包は、触媒・鋳型・産物を共局在化させることにより、鎖の生存をそれ自身の触媒的寄与に依存させることができます。このような組織化は化学量論的バランスを維持し、共通成長フラックスが非生産的な変異体に奪われるのを防ぎます。
解析的補足:原著の扱い(66–76ページ)では、共有成長への還元は集団変数のアフィン変換を通じて明示されます。この変換は、集合的成長モードを相対組成モードから分離します。共通成長モードは集合全体の拡大を記述し、残りのモードは組成がどのように変化するか — 寄生性または欠損した鎖の侵入を含めて — を記述します。この座標変換により、共有成長が各成分の触媒的寄与を選択的に報酬できない理由が明らかになります。
最小レプリカーゼ・シンテターゼ方式5本のRNA鋳型 — レプリカーゼをコードするRと、シンテターゼをコードするS₁–S₄ — がレプリカーゼとシンテターゼの産物プールへと流入します。両プールは共通成長関数Gに収束します。破線で示された寄生性RNAは同じフラックスを受け取りますが触媒を提供せず、統合機能の崩壊を引き起こします。