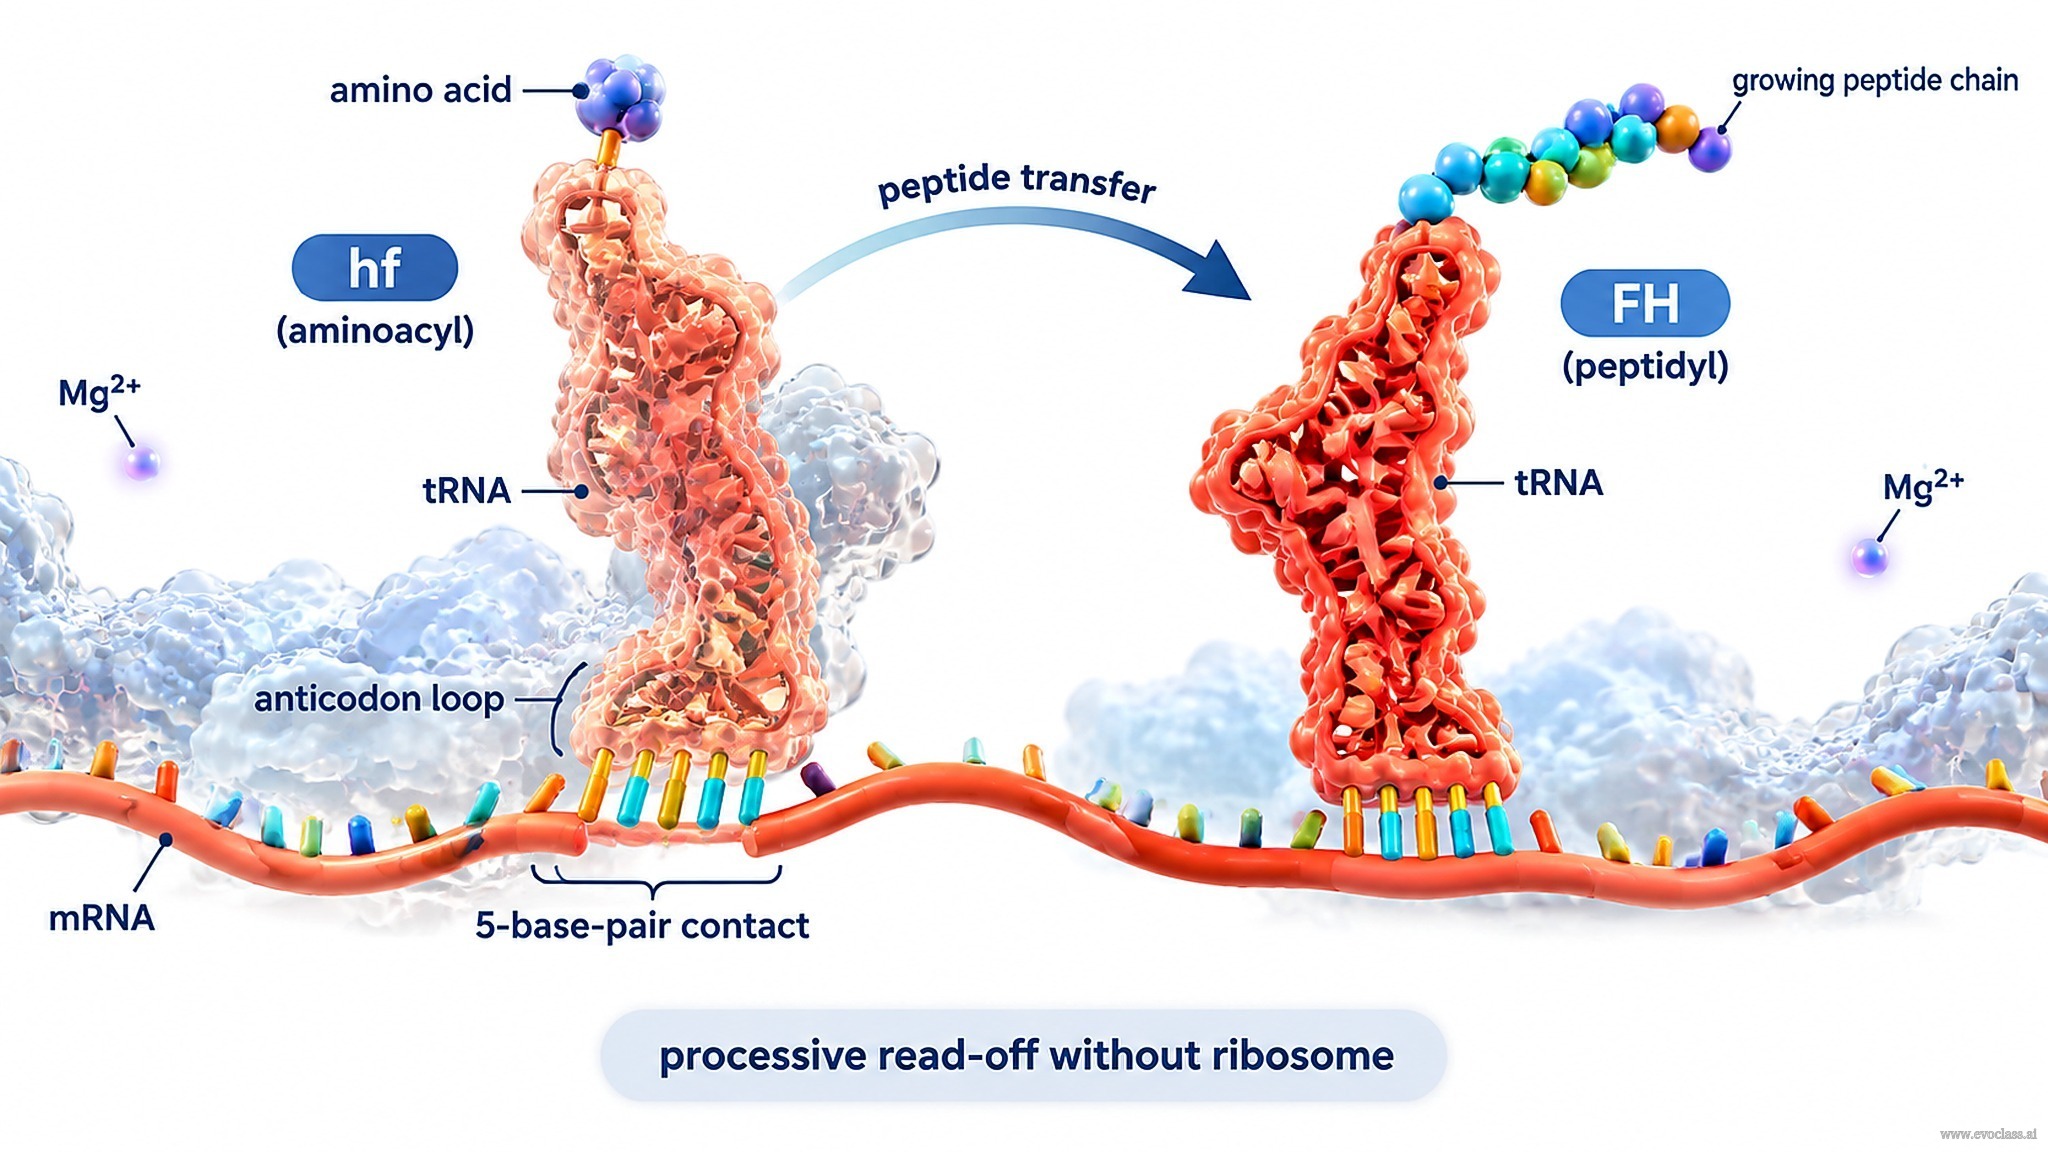
この リボソーム非依存性ペプチド転移モデル は、原始翻訳における中心的な問題、すなわち成長中のペプチド鎖がどのようにしてメッセンジャーRNAに結合したまま、リボソームなしで伸長され得るのかという問題に取り組みます。提案されている仕組みは、ペプチジルtRNAが次の部位を介してメッセージに結合し続けられるというものです: 5塩基対の接触 アンチコドンループとメッセージとの間の接触です。
重要なのは、tRNAが単一の固定された形を持つのではなく、その立体配置は何を運搬しているかに依存するという点です。tRNAが単一のアミノ酸に結合しているときは、 hf配置をとります。ペプチド鎖に結合しているときは、 FH配置をとります。アミノ酸が成長中のペプチド鎖へ転移されると、tRNAはhfからFHへと反転します(図49参照)。
このhf → FHの切り替えが機構上の鍵となるステップです。これにより、高度な翻訳装置なしでメッセージを連続的に読み取る手段が提供されます。すなわち、tRNAは5塩基対の接触によって固定されたままであり、ペプチド転移のたびにその立体配座が変化して、次のコドンに結合できるようになります。ハイパーサイクルの枠組みにおいて、このリボソーム非依存性ペプチド転移は、RNAとペプチド産物の間の初期の機能的カップリングを支えることができます。
なぜ5塩基対が重要なのか
標準的なコドン–アンチコドン相互作用は3塩基対からなります。リボソーム非依存性モデルでは、アンチコドンループがメッセージと5塩基対の接触を形成します。この追加の対合が、リボソームが存在しないときに成長中のペプチジルtRNAをメッセージ上に保持する役割を担っています。これがなければ、ペプチジルtRNAは繰り返される伸長の各ステップで安定して結合したままにはなれません。
2つの配置、1つのスイッチ
tRNAの立体配置は任意ではなく、積荷によって決まります。アミノ酸を運搬するtRNAはhf状態にあり、ペプチド鎖を運搬するtRNAはFH状態にあります。アミノ酸がペプチド鎖へ転移されると、tRNAはhfからFHへと反転します。この立体配座スイッチは、ペプチド結合形成の化学反応と共役しています(図49参照)。
リボソームなしでの連続的な読み取り
hf → FHの切り替えは、高度な翻訳装置なしでメッセージを連続的に読み取る仕組みを説明します。ペプチド転移のたびに鎖が伸長されるとともにtRNAの立体配座が変化し、5塩基対の接触が複合体を結合させたまま次のコドンに結合できるようになります。これは、リボソームなしでメッセージをペプチドへ翻訳するための、もっともらしい原始的な機構を提供します。
リボソーム非依存性ペプチド転移成長中のペプチジルtRNAは、アンチコドンループとメッセージとの間の5塩基対の接触によってメッセージに結合したままになります。tRNAは、アミノ酸を運搬しているときはhf配置を、ペプチド鎖を運搬しているときはFH配置をとります。アミノ酸がペプチド鎖へ転移されるとtRNAはhfからFHへと反転し、リボソームなしでの連続的な読み取りが可能になります。