このページでは、これまで別々に扱われてきた3つの流れを、一貫した原始生命前夜のシナリオへと統合します。 翻訳共役ハイパーサイクル動態、 原始コーディングの論理、そして GCリッチRNA化学。この統合から、現実的なハイパーサイクルは共有された複製項と翻訳項だけでは組み立てられず、RNAにコードされた機能どうしの閉じた触媒的連環が必要であることが示されます。
崩壊する集合体から閉じた触媒的連環へ
一組のRNA鎖が1つのレプリカーゼと4つの合成酵素機能をコードするという最小スキームが、この問題を端的に示します。複製項と翻訳項が共有されると、それらは単一の共通成長関数へと収束し、集合体は内部競争によって崩壊します。欠けている要素は次のものです。 閉じた触媒的連環:各RNAコード機能が他の機能の複製または翻訳に寄与し、集合体が競合するテンプレートの寄せ集めではなくハイパーサイクルとして存続する必要があります。
原始コーディングとリボソーム不要の読み取り
原始コーディングは、フレーム整合性、カンマフリー読み取り、リボソーム不要のペプチド転移を解決しなければなりません。原始的なメッセージは、ペプチド転移の際に以下の2つの配置を切り替えるtRNA様アダプターを通じて読み取ることができます。 hf と FH (図49参照)。どちらの配置が活性化するかは、tRNA様分子がアミノ酸を運んでいるか、伸長中のペプチド鎖に結合しているかによって決まります。アミノ酸がペプチド鎖へ転移されるとアダプターはhfからFHへフリップし、高度な翻訳装置なしでも連続的な読み取りが可能になります。5塩基対のアンチコドンループ接触と2つのループ配置が、伸長中のペプチジルtRNAをメッセージに留めます。フレーム整合性とカンマフリー復号により、読み取りは正しい読み枠に保たれ、重複した読み枠や別の読み枠へ崩れることはありません。
GCリッチ化学と初期のコドン割り当て
GCリッチな配列は二重鎖の安定性と忠実性を高め、最初の再現可能なアダプターやメッセンジャーの前駆体となった可能性が高いと考えられます。AUの不完全性は、後に選択的に意味のある変異をもたらすことができます。GGC/GCCやそれに続くGAC/GUC段階のような初期のコドン割り当ては、完全に現代的の翻訳装置ではなく、物理化学とヌクレオチドの存在度によって解釈されます。選択的に有利なAUの不完全性をもつ非周期的GC格子と、一次アミノ酸アルファベットの背後にある構造基準が、この全体像を完成させます。
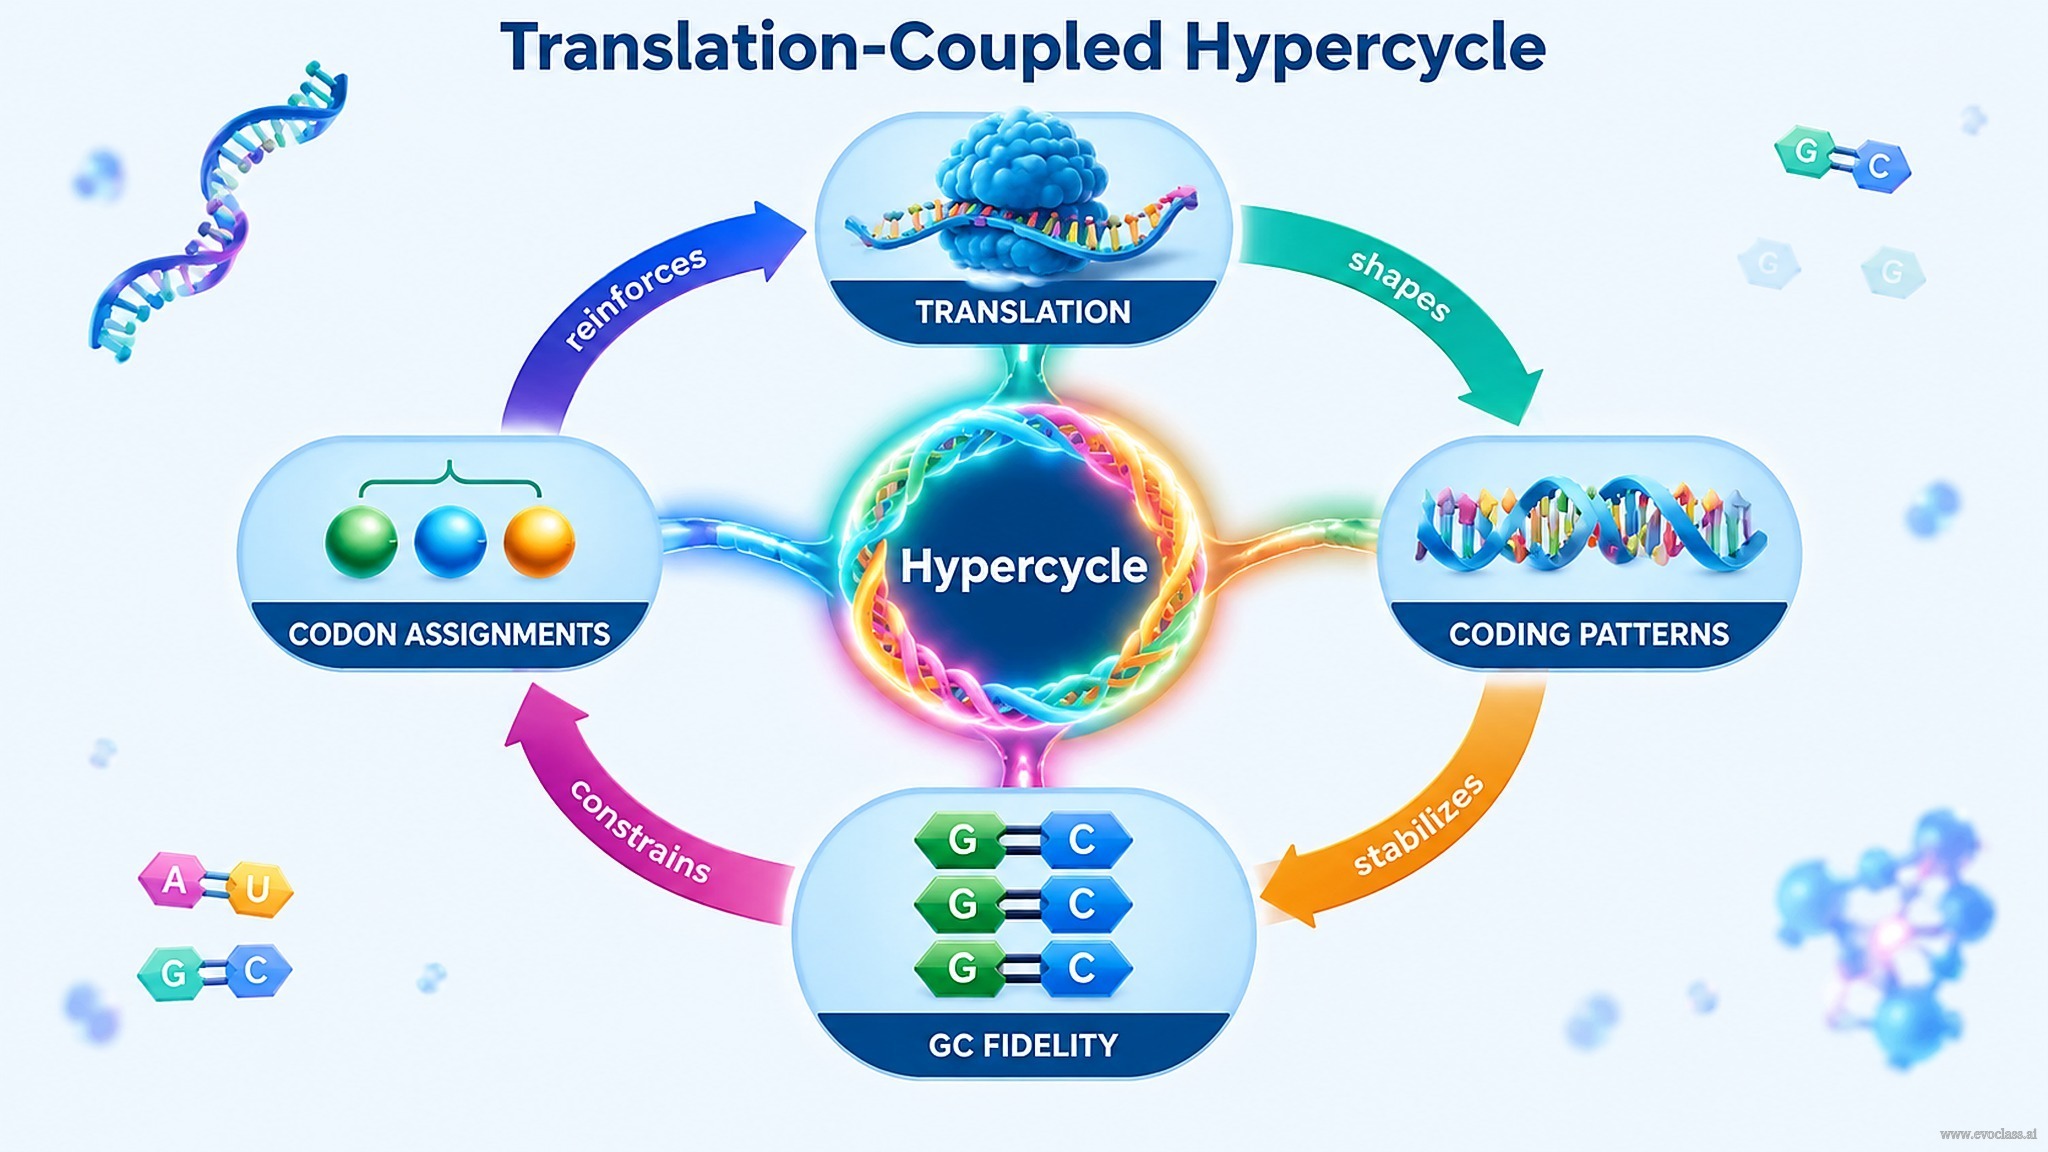
これらの流れは独立した発明ではありません。コーディングパターンは翻訳様転移を制約し、翻訳様転移は触媒的閉鎖を必要とし、GCリッチ化学はその両方の安定性の閾値を定めます。この結果として得られるシナリオは、翻訳の起源と遺伝暗号の起源を、互いに結びついた分子論的問題として扱います。
翻訳と原始コーディングの統合このコンセプトマップは、RNAコード機能どうしの閉じた触媒的連環、フレーム整合性とカンマフリー読み取りを備えた原始コーディング、hf/FHアダプターフリップによるリボソーム不要のペプチド転移、GCリッチによる忠実性と安定性、そしてGGC/GCCのような初期のコドン割り当てを統合しています。矢印は翻訳・コーディング・ハイパーサイクル的組織化の間の相互制約とフィードバックを示します。