スライド69は 間接的だが収束的な証拠 をまとめている。すなわち、一本のRNA鎖が同時に アダプター (伸長中の鎖にアミノ酸を渡すtRNA様の運搬体)としても、 メッセンジャー (読み取ることができるmRNA様の配列)としても働けるという証拠である。もし両方の役割が一分子に共存できるなら、超循環的RNA複製と原始的翻訳の間の壁は劇的に下がる。つまり、別個のアダプタークラスも、ごく初期においては合成酵素も、メッセージが解読される前に出現する必要はなかったのである。
4つの収束する証拠の系統
- tRNA配列および構造アラインメント: アダプター機能とメッセンジャー機能は同一のRNAファミリーに共存しうる — 一分子がアミノ酸受容・転移の役割と読み取り可能な配列情報の両方を担う。
- Qβミディバリアントのde novo合成: RNAは既存の翻訳装置なしで自己複製できるため、高度な翻訳が存在する以前でも、tRNAサイズの大きく再現性のあるRNA分子は妥当に存在しうる。
- 単純なβシート酵素前駆体: 初期の機能性タンパク質は複雑な折りたたみを必要としなかった。最小限のペプチドでも、完全に折りたたまれた酵素なしに原始的な機能を提供できた。
- tRNAのコンホメーション柔軟性(hf ↔ FH): アダプターと鋳型という役割は、別個のRNAクラスに完全には分離されていない。
hf ↔ FH スイッチ
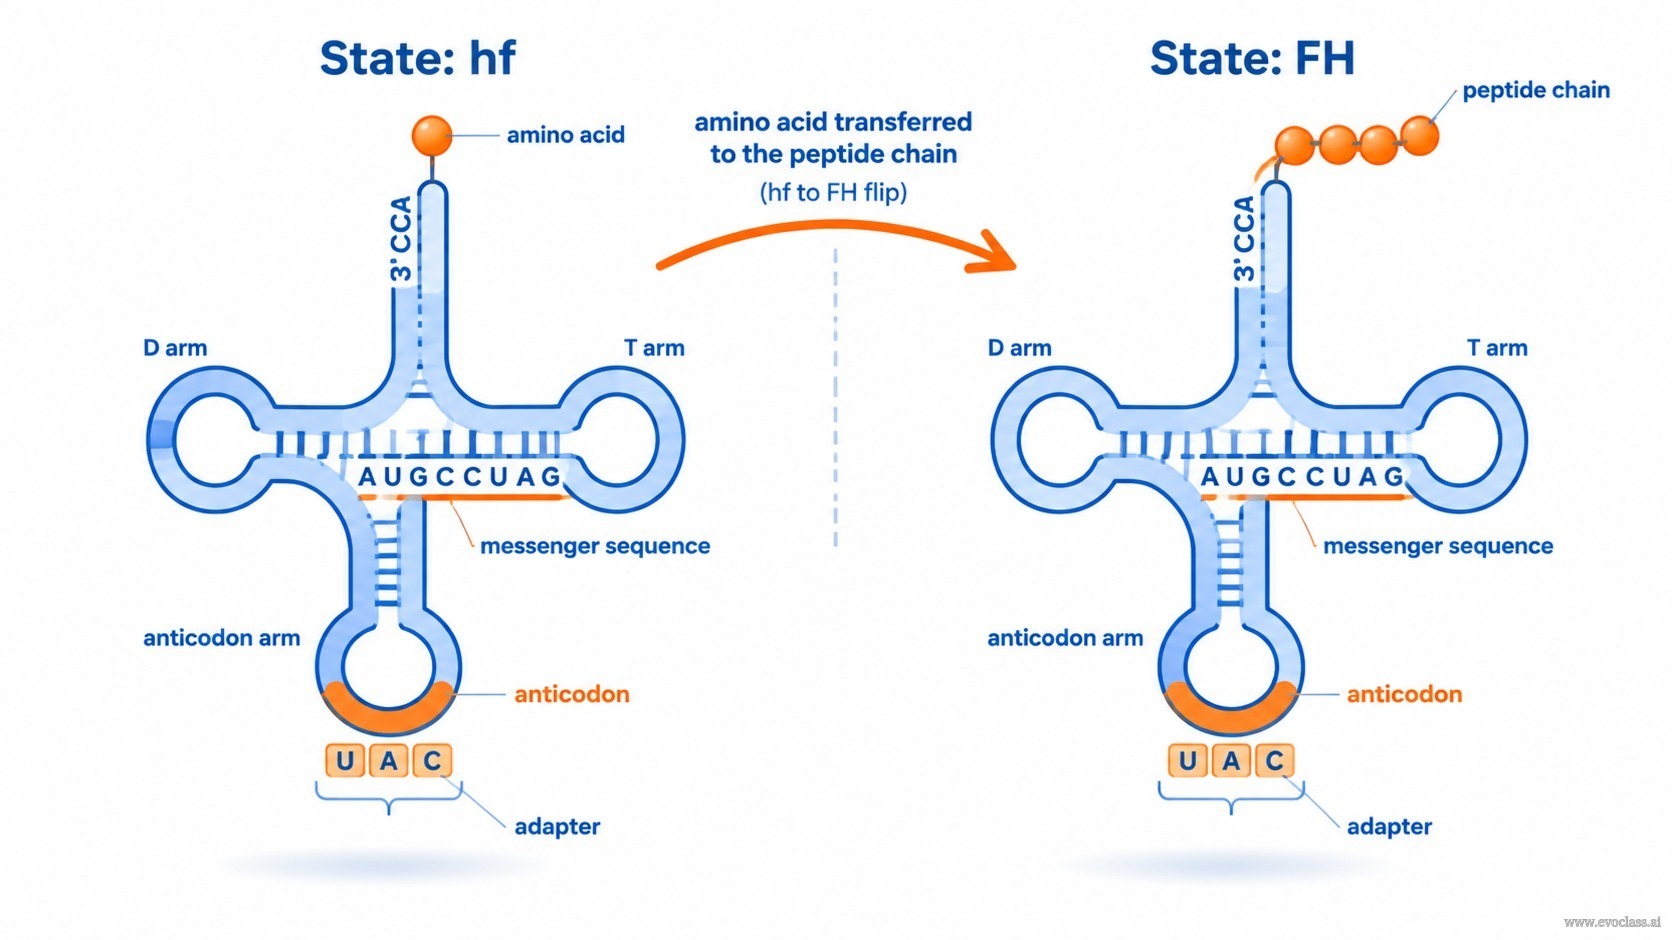
実際にどちらの配置が存在するかは、tRNAがアミノ酸に結合しているかペプチド鎖に結合しているかによって決まる。アミノ酸をペプチド鎖へ転移することにより、tRNAは hf から FH 配置へと反転する(図49参照)。このモデルは、高度な翻訳装置が存在しない状況でどのようにメッセージが読み取られるかをうまく説明している。すなわち、アミノ酸を運ぶのと同じ鎖が、読み取り可能な配列も露出しているのである。
真剣に受け止めるべき反問
tRNAほどに大きい再現性のあるRNA分子が存在し、十分に一般的な限られた数のアミノ酸から原始的な形でタンパク質を合成する前提条件が整っているならば、翻訳の起源はどのように描けるだろうか。この問いは次のような反論として鋭く問い直せる: 「この問いは言い換えれば、なぜ小さなオリゴヌクレオチドのアダプターではいけないのか、ということでもある。」 二重機能モデルはこれに対し、分子はアダプター認識とメッセンジャーとしての読み取りやすさの両方を支えるのに十分な長さと構造を持たなければならないと答える。したがって、ごく短いオリゴヌクレオチドでは不十分である。
解釈上の注意
これらは二重機能RNA世界のための妥当性を示す論拠であり、直接の化石的証拠ではない。Qβミディバリアントは現代の複製子の類似物であり、βシート前駆体は最小限の折りたたみに関する推論であり、hf/FHスイッチは初期翻訳に関する機構的仮説であって、直接の古代の証拠ではない。
tRNAのhfからFHへのスイッチ一本のtRNA鎖を2つの状態で示す: アミノ酸を運んでいるときのhfと、そのアミノ酸がペプチド鎖へ転移された後のFHである。同じ鎖が読み取り可能な配列も露出しているため、アダプターとしての役割(アンチコドン認識)とメッセンジャーとしての役割(読み取り可能な鋳型)は別々のRNAクラスに分かれていない — まさにこれが、高度な翻訳装置なしにメッセージを読み取れる理由である。
tRNAのhfからFHへのスイッチ
一本のtRNA鎖を2つの状態で示す: アミノ酸を運んでいるときのhfと、そのアミノ酸がペプチド鎖へ転移された後のFHである。同じ鎖が読み取り可能な配列も露出しているため、アダプターとしての役割(アンチコドン認識)とメッセンジャーとしての役割(読み取り可能な鋳型)は別々のRNAクラスに分かれていない — まさにこれが、高度な翻訳装置なしにメッセージを読み取れる理由である。