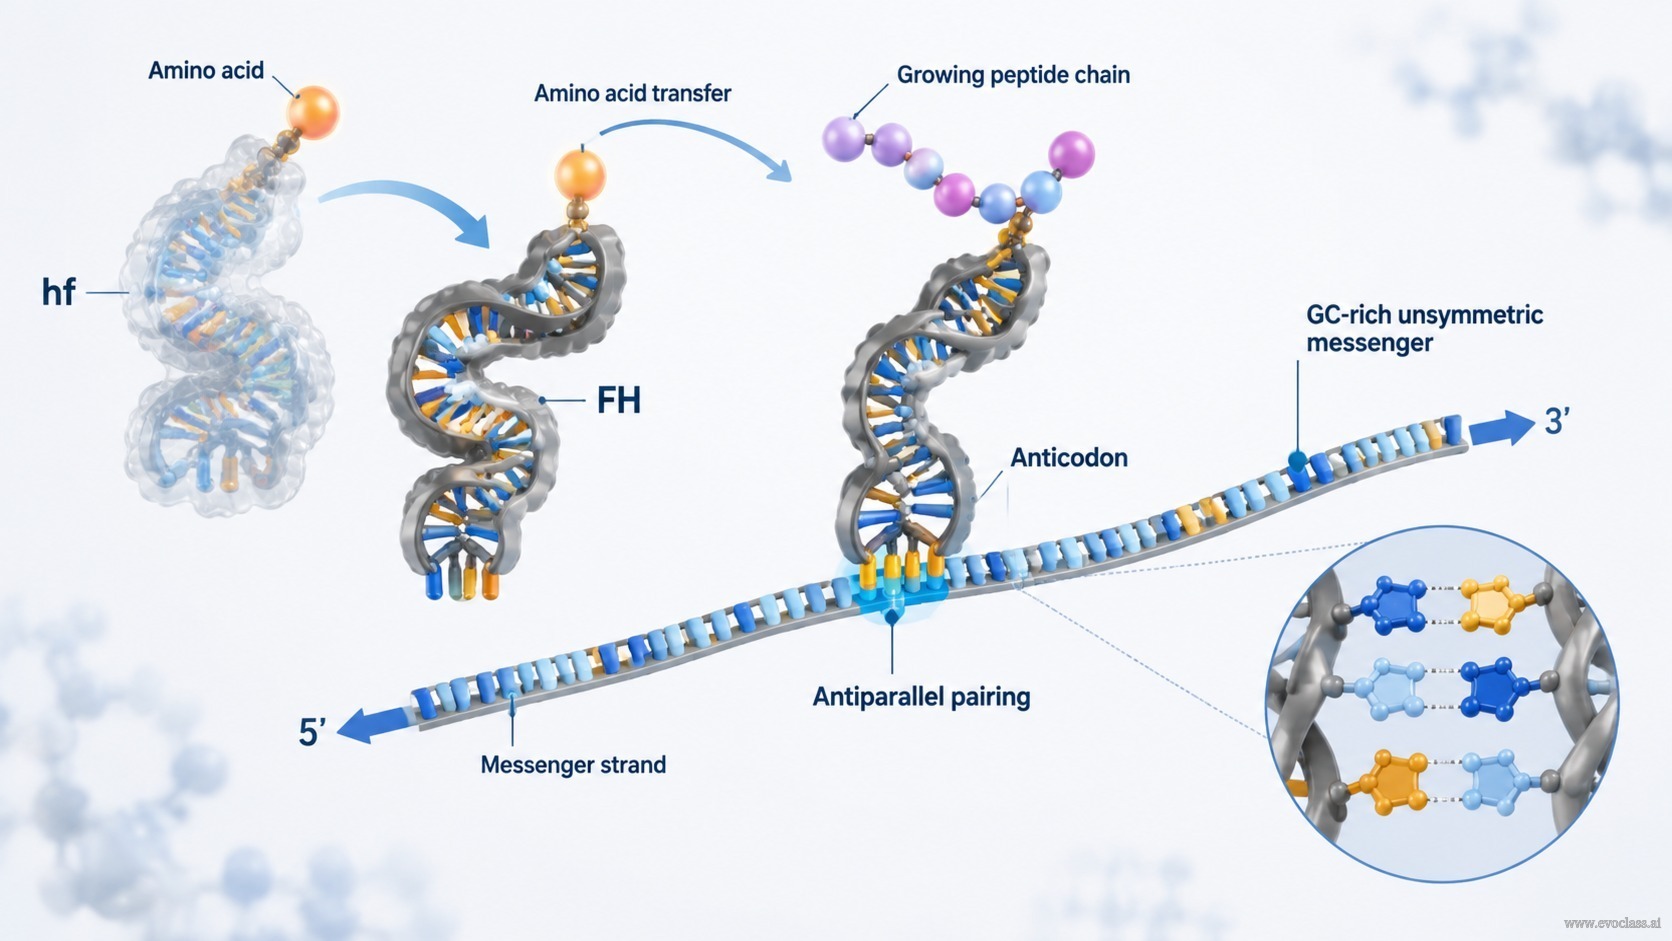
初期生命における翻訳は、完全に形成されたリボソームから始まった必要はない。このモデルは次のように提唱している。 単純なtRNA様アダプター は、ペプチド結合形成の触媒的支援が利用可能であれば、相補的かつ逆平行な対合によってメッセンジャーを読み取ることができる。アダプターのコンフォメーションはその積荷に依存し、アミノ酸を運ぶときは hf配置 をとり、ペプチド鎖を運ぶときは FH配置 をとる。伸長中のペプチド鎖へアミノ酸が転移されると、アダプターはhfからFHへと反転する(図49参照)。
アダプターとメッセンジャーの整列は逆平行であるため、高度な翻訳装置がなくてもメッセージを読み取ることができる。GCリッチな開始パターンの選択は4つの論拠によって導かれる。すなわち、アダプター–メッセンジャー相互作用の安定性と複製の忠実性はいずれもGCの組み合わせを出発点として支持すること、そして翻訳におけるコンマフリーな読み取りには非対称なGCパターンが必要であることである。こうして、分離シグナルや複雑な翻訳装置を必要とせず読み取りを可能にする非対称なGCパターンから、コンマフリーなメッセンジャーパターンが生じる。
機構上の重要ポイント
- 触媒的支援 は依然として翻訳機能に必要であるが、初期の翻訳は完全なリボソームではなく単純なアダプターを用いた可能性がある。
- 積荷依存的なコンフォメーション:tRNAの配置はアミノ酸を運ぶかペプチド鎖を運ぶかに依存する。転移によりhfからFHへ反転する。
- 逆平行対合:アダプターとメッセンジャーの相補的整列は逆平行であり、高度な装置なしでの読み取りを可能にする。
- GCリッチで非対称なパターン:安定性と複製の忠実性はGCを支持し、コンマフリーな読み取りには重複フレームの曖昧さを避けるために非対称なGCが必要である。
図49との関連
hf → FHの反転は、アミノ酸のペプチド鎖への転移に伴って起こる。逆平行でGCリッチな非対称メッセンジャーパターンこそが、現代的なリボソームが存在する以前にコンマフリーな読み取りを可能にしたのである。
アダプター–メッセンジャーの読み取りこの図は、hfおよびFH配置のtRNA様アダプター、GCリッチで非対称なメッセンジャーへの逆平行な相補的対合、そしてhfからFHへの反転をもたらすアミノ酸転移を示しており、高度なリボソームなしでコンマフリーな読み取りを可能にする。
アダプター–メッセンジャーの読み取り
この図は、hfおよびFH配置のtRNA様アダプター、GCリッチで非対称なメッセンジャーへの逆平行な相補的対合、そしてhfからFHへの反転をもたらすアミノ酸転移を示しており、高度なリボソームなしでコンマフリーな読み取りを可能にする。