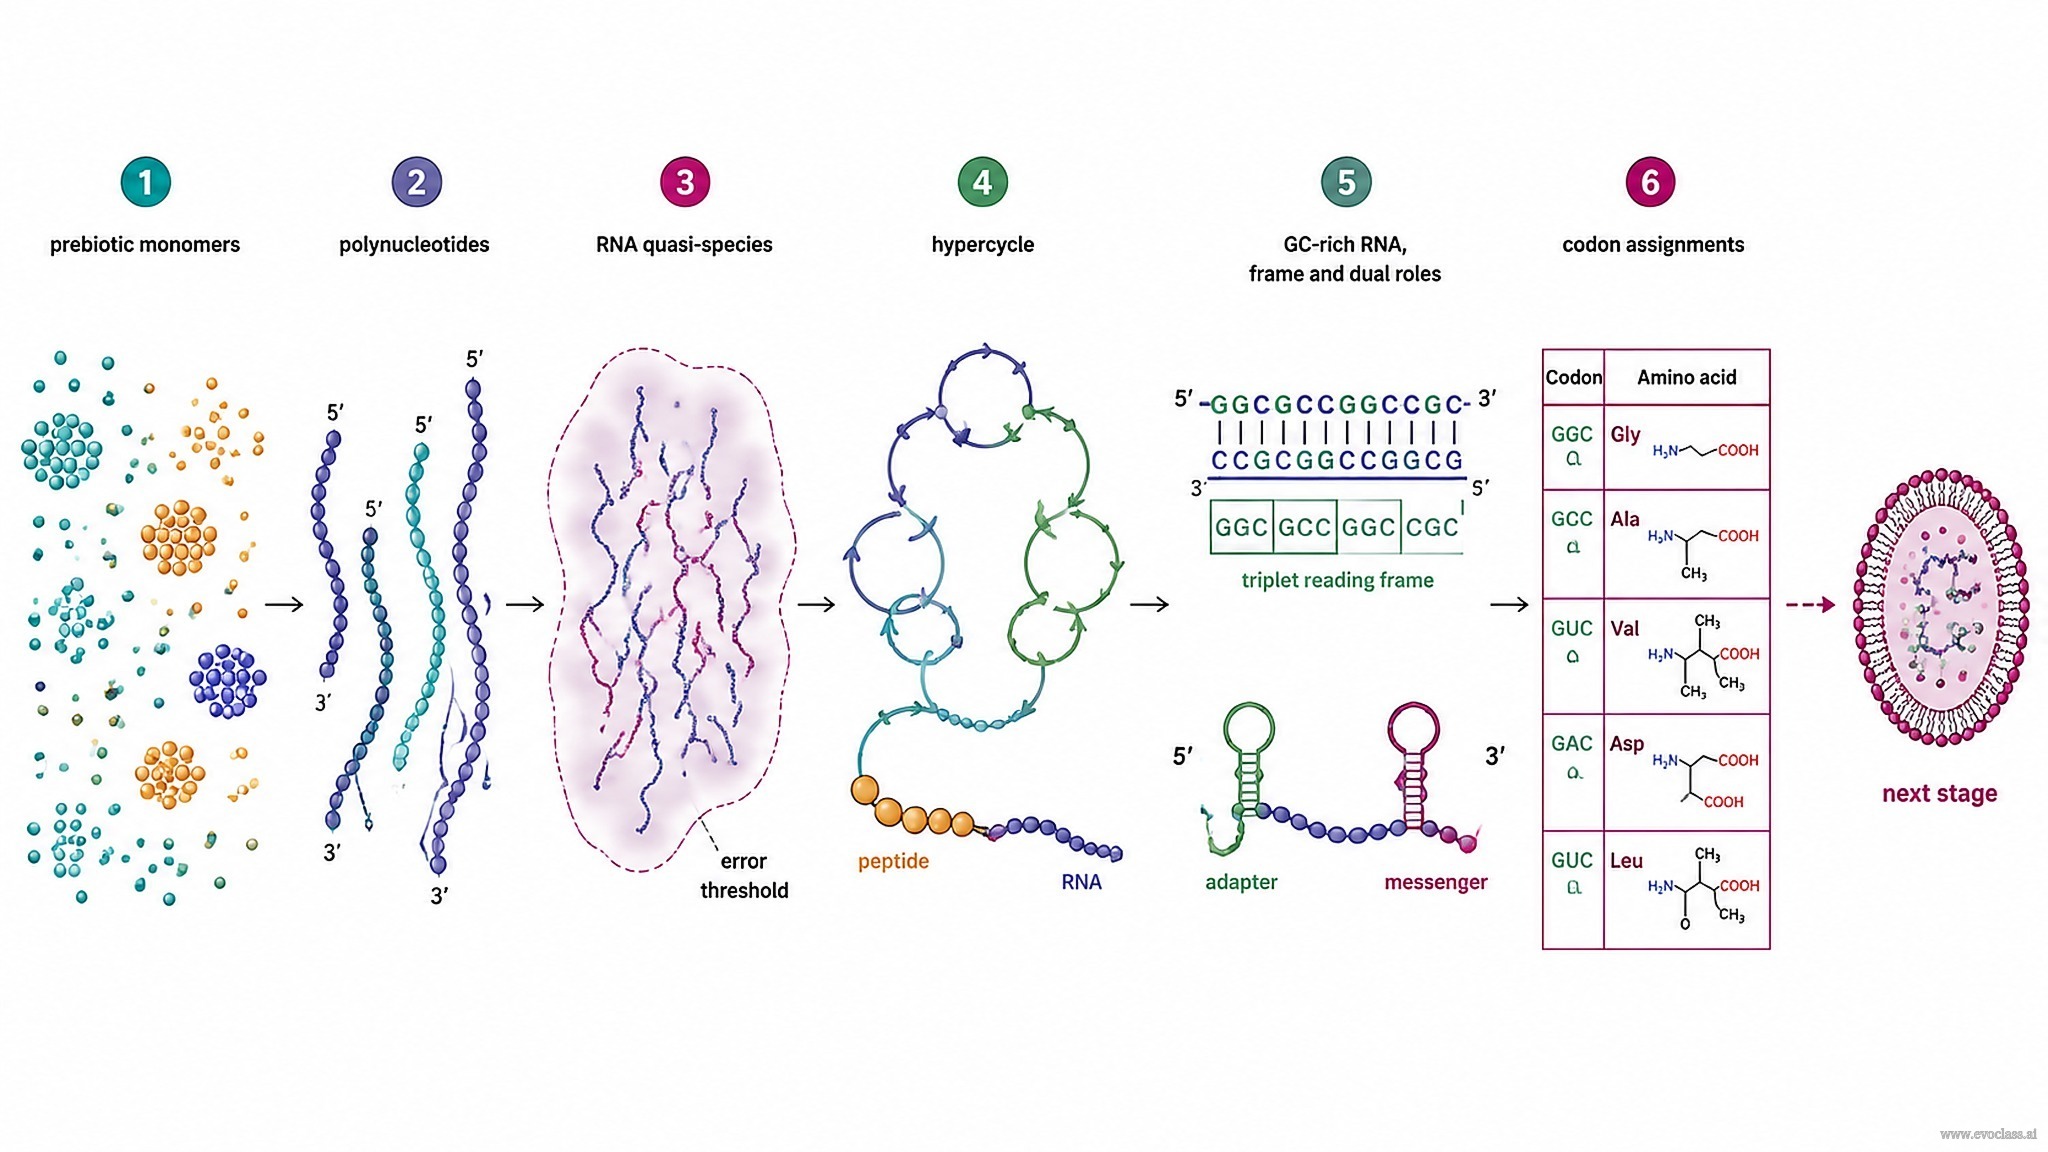
このページは、提唱されている 生体以前の高分子から最初のコドン割り当てに至る連続性をまとめたものです。ここで主張されているのは、単一の出来事が遺伝暗号を生み出したということではなく、一連の物理的・情報的段階が可能な割り当ての空間を徐々に狭め、最終的に三重項からアミノ酸への小さく実用的な対応表だけが残った、ということです。
1. 非無作為な出発プール
生体以前の合成は均一な混合物をもたらすわけではありません。アミノ酸とヌクレオチドはきわめて 非無作為な存在量で蓄積し、その偏りは上位へと受け継がれます。つまり、豊富で持続的なモノマーだけが、最初期のコーディング相互作用に取り込まれうるものとなるのです。最適化ではなく入手可能性が出発点の選択肢を決め、あらゆる割り当てはその中から選ばれなければなりません。
2. 単一分子ではなく準種としてのポリヌクレオチド
初期のポリヌクレオチドは、単一の最適化された配列として進化するのではなく、 準種として進化します。すなわち、突然変異–選択平衡のもとで維持される関連変異体の雲です。その情報量は誤り閾値によって上限が決まります。部位あたりの突然変異率が高すぎれば、マスター配列は平坦で情報に乏しい変異体分布へと溶解してしまいます。また、低い複製精度は、より長い分子を抑制する変異体負荷をもたらします。したがって初期のコーディングは、長いプロトゲノムからではなく、誤り閾値に制限された短い配列から始まります。
3. 機能的共役とハイパーサイクル的組織化
RNA触媒作用をペプチド機能に共役させることで、そうでなければ競合する複製子どうしが互いを支え合えるようになります。 ハイパーサイクル的組織化 は、これらの機能を統合し、標準的な反論に対処するための提案された方法です。反論とは、核形成(そもそもサイクルがどのように始まるのか)、寄生者(貢献せずにサイクルを利用するより短い種)、そして情報の喪失です。共役は、ゲノムが存在する以前にコーディング様の相互作用を安定化させます。
4. 初期のコーディングを形づくる制約
- GCに富む複製 は、アクセス可能な配列空間をG/Cに富む鋳型へと偏らせます。
- カンマ不要フレーム はフレームシフトの曖昧さを避けるため、区切り記号なしで読める三重項コードは限られます。
- 二重用途RNA:同じ分子がアミノ酸を運ぶアダプターとしても、読み取られるメッセンジャーとしても機能しうるため、あらゆる割り当ては両方の役割を同時に満たさなければなりません。
5. 最初の割り当てとその先の道筋
これらの制約のもとで、最初期のコドン割り当てはおそらくGGC/GCC様の三重項が 比較的豊富な脂肪族アミノ酸に対応づけられたものだったと考えられます。この移行は跳躍ではなく勾配です。それは誤り閾値に制限された情報、触媒的閉鎖、そしてより後の段階である区画化を前提としており、区画化がゲノムを単一の境界内部に統合し、統合されたプロトセルをもたらします。
まとめの目標: 提唱されている出来事の順序を説明できるようになること — 高分子と準種、次にコドン割り当て、次に区画化されたハイパーサイクル、そして最後に統合されたプロトセル。
高分子からコドン割り当てへ非無作為な生体以前のモノマープールがポリヌクレオチドプールへとつながり、それが誤り閾値に制限された突然変異–選択平衡のもとでRNA準種として持続する、直線的な連続性の道筋です。その後、機能的なRNA–ペプチド共役とハイパーサイクル的組織化が、二重用途のアダプターとメッセンジャーを備えたGCに富むカンマ不要フレームを支え、そこから最初のコドン割り当てが現れます。区画化されたハイパーサイクル、統合されたプロトセル、統合されたゲノムは、この段階の一部ではなく次の段階として示されています。