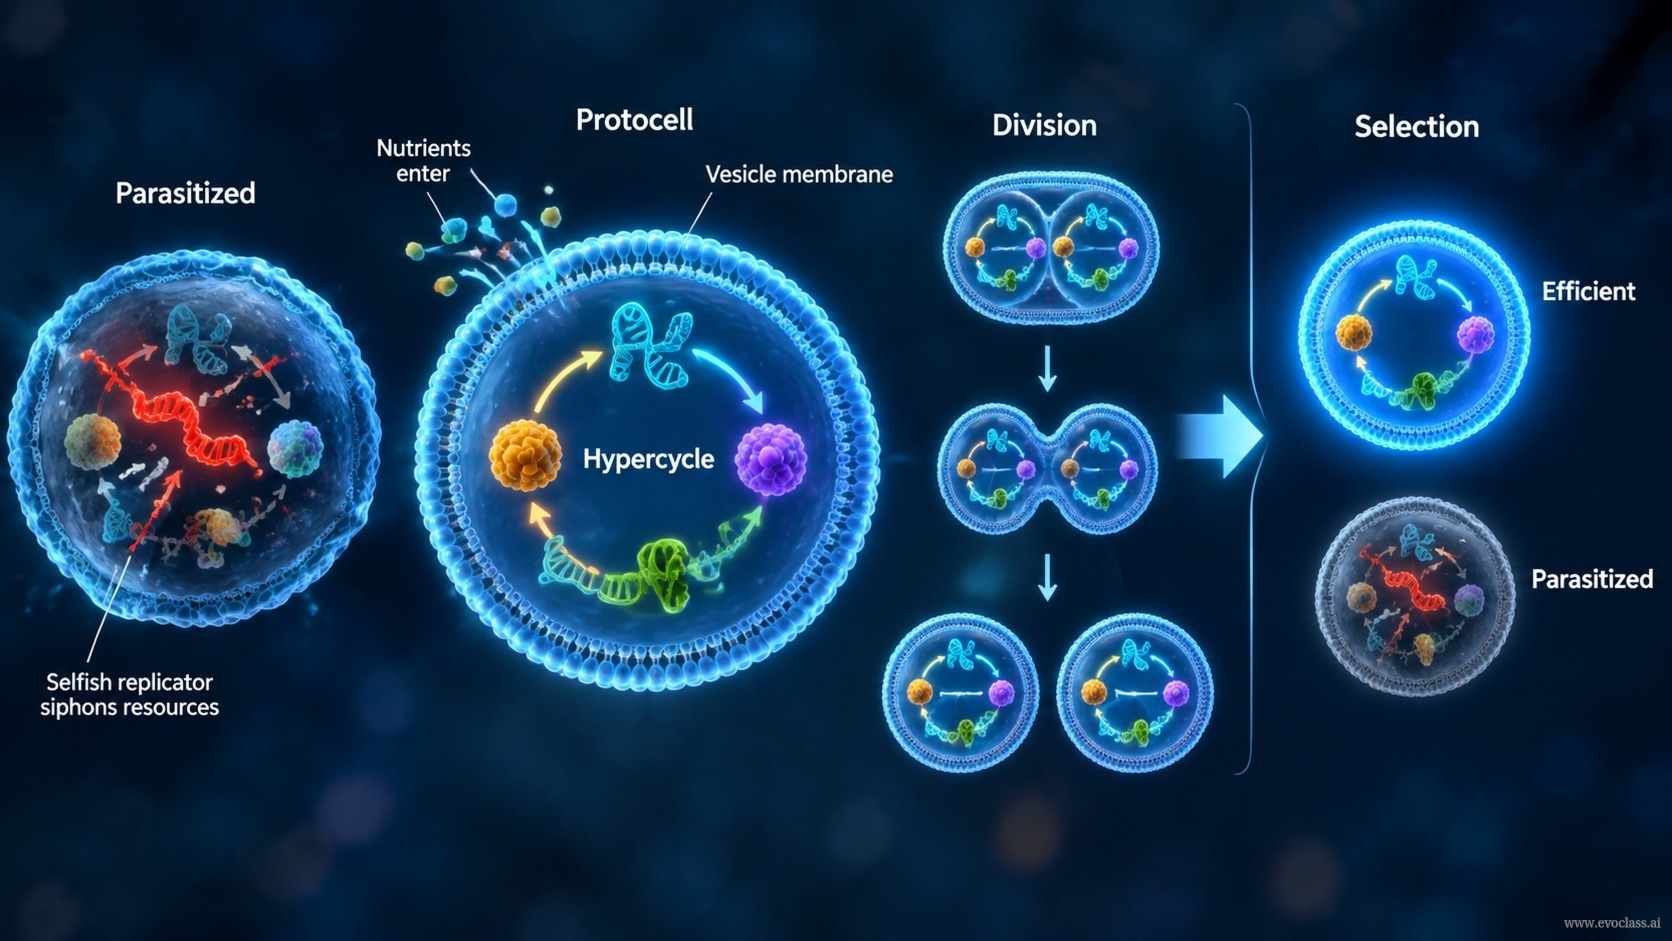
区画化は初期生命の進化における決定的な転換点である。それは、機能的に連結されたハイパーサイクル——複製が相互に触媒的に作用する自己複製分子の集合体——を、 プロトセルへと変換する。膜に包まれた単位であり、全体として選択される。小胞の内部ではハイパーサイクルの動態が持続し、各複製子が次の複製子の複製を触媒して、相互依存の閉じたサイクルを形成する。しかし、境界は新たな組織化のレベルをもたらす。境界は触媒とその産物を近接した状態に保ち、触媒による利益がそれを生産する複製子と結びついたままになるようにする。この空間的な閉じ込めによって、有益な分子がその供給源から拡散するのを防ぎ、寄生性のサブサイクルが集団に貢献することなく系を搾取する機会を減らす。
選択は今や 区画レベルに作用する。より高い集団的複製速度、より大きな内部安定性、より効率的な分裂を示す小胞は、効率の低いものや寄生性要素を抱えるものを凌駕する。プロトセルの適応度は、創発的な特性に依存する。すなわち、その構成要素間の触媒的連結の強さ、寄生性サブサイクルへの抵抗性、分裂時に構成要素が分離される精度、そして成長と分裂の速度である。重要なのは、区画の成長と分裂は、その分子構成要素の内部複製と連結していなければならないという点である。分裂が無作為に起こったり、複製と切り離されたりすると、有利なハイパーサイクルは希釈されたり失われたりする可能性がある。
このようにして区画化は、ハイパーサイクル組織が抱える根本的な制約を解決する。すなわち、協調的なネットワークが統合された全体として競争することを可能にすることで、複雑性の進化の仕組みを提供するのである。しかし、生存可能性は物理的な現実によって制約される。膜を介した栄養の取り込み、膜の透過性、温度、複製の精度が、いずれも境界条件を課す。これらの制約と内部動態との相互作用が、どのプロトセルが生き残り増殖するかを決定する。
例:小胞間の選択
それぞれ異なるハイパーサイクルネットワークを含む2つの小胞を考えよう。小胞Aは効率的な触媒的連結を持ち、急速に分裂する。一方、小胞Bは資源を奪う寄生性サブサイクルを含むか、必須構成要素をうまく分離できない。成長と分裂を繰り返すうちに、小胞Aの集団は小胞Bに対して増加する。選択される形質はプロトセルの集合的な内部ネットワークであり、単一の分子ではない。これは選択が統合された区画に作用することを示している。
小胞に内包されたハイパーサイクル膜の境界を持つプロトセルが、複製子と触媒からなるハイパーサイクルネットワークを内包している。栄養は膜を通じて入り、区画は成長し分裂する。集団のパネルは、寄生性サブサイクルを持つ小胞よりも、効率的な触媒的連結を持つ小胞を優遇する選択を示している。