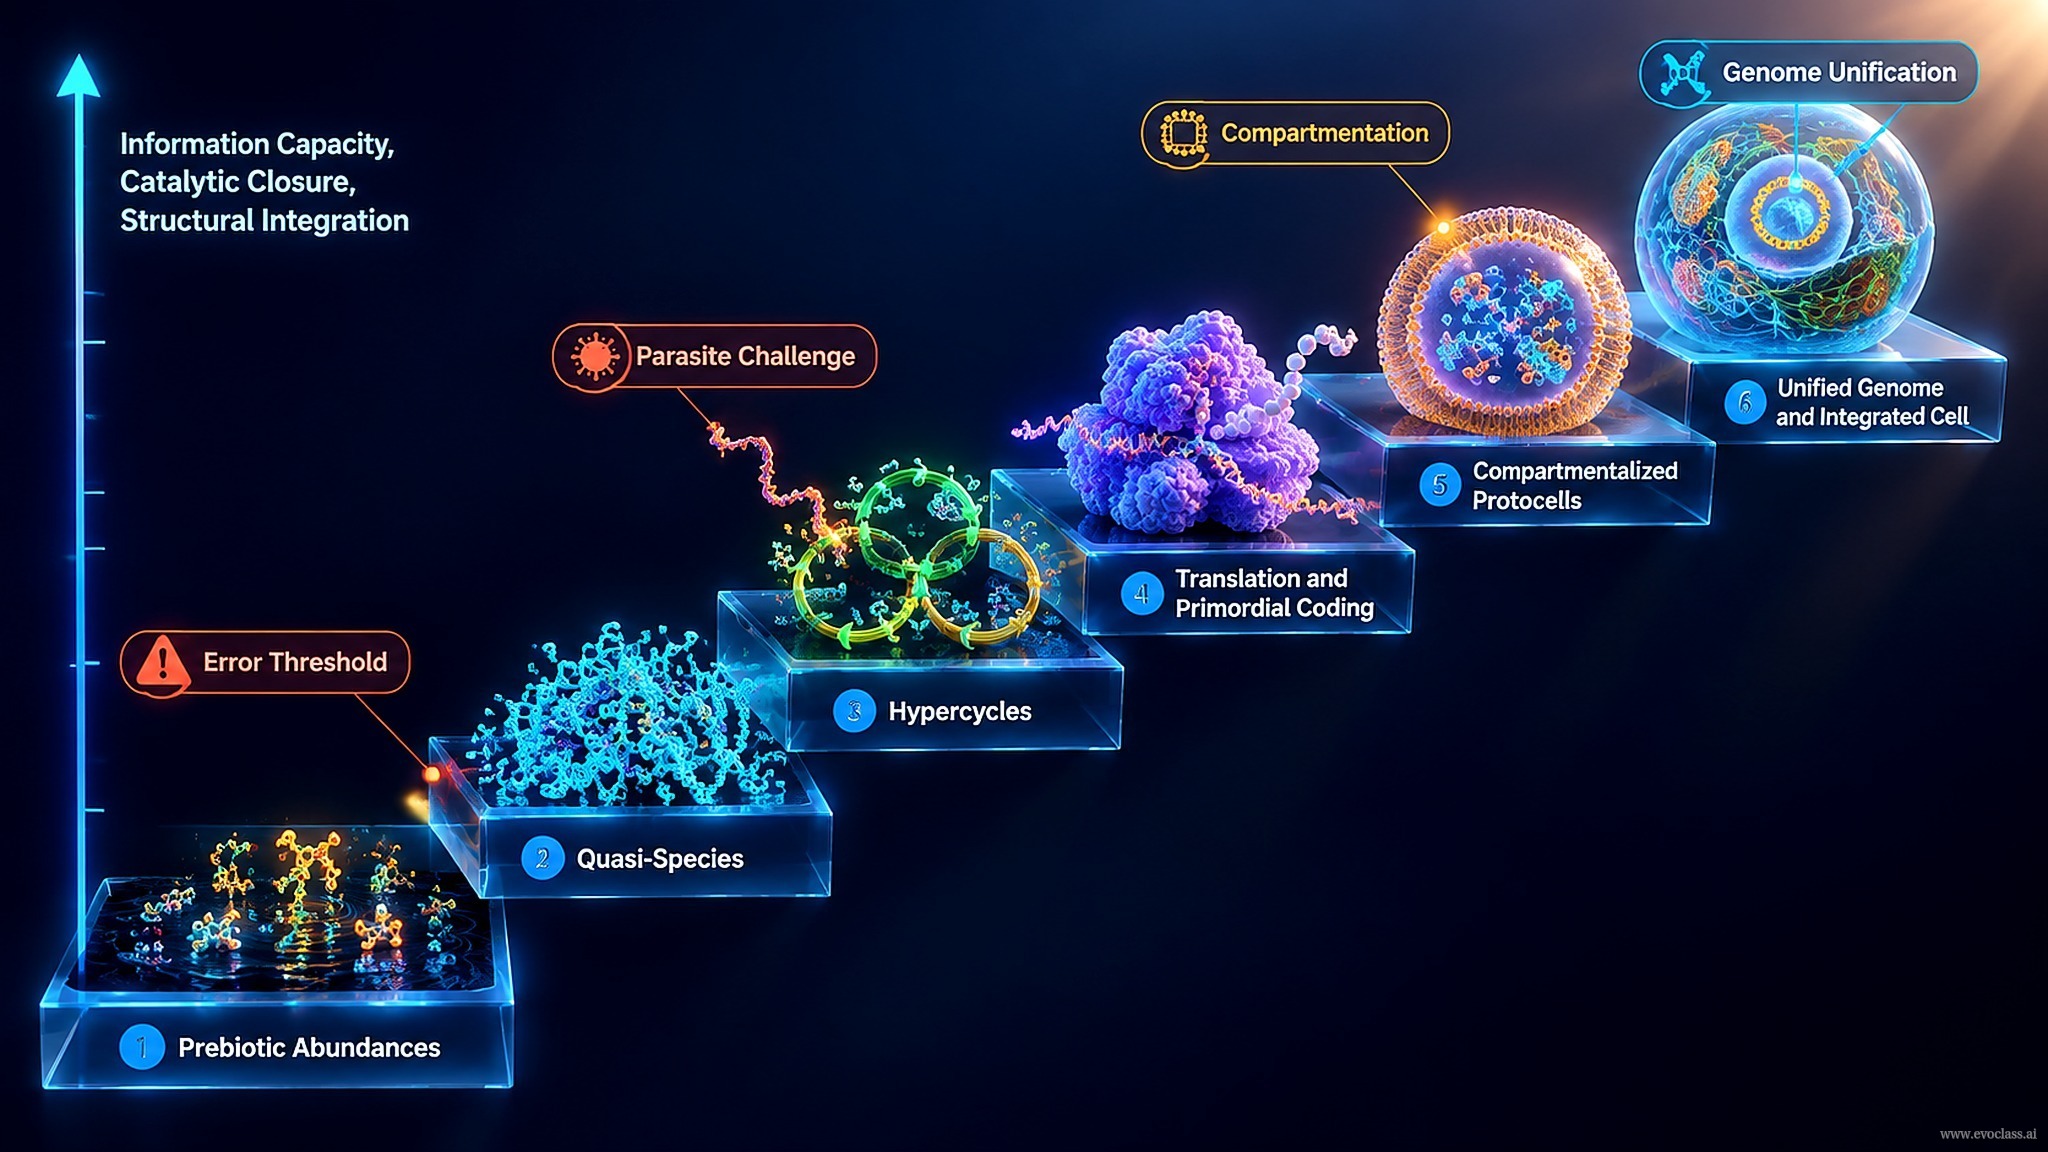
統合細胞は生命の独立した起源ではなく、分子的自己組織化が段階的に拡張され続けた末の到達点である。各段階は情報・触媒・寄生に関する特定の問題を解決し、その間もダーウィン的選択は分子レベルで働き続けている。
- 第1段階 — 前生物的な原材料: 前生物的合成により、非ランダムな存在量でアミノ酸とポリヌクレオチドが生じる。GCに富む複製のような組成バイアスが、最古の複製子を制約する。
- 第2段階 — 準種: 突然変異と選択によって準種集団が生じ、その安定した情報量は複製の忠実度と誤り閾値によって制限される。q̄m、σm、vm は情報の喪失か維持かを予測する。
- 第3段階 — ハイパーサイクル的統合: 触媒的・自己触媒的・ハイパーサイクル的なカップリングが複製子を協調的成長を伴う協力サイクルへと結びつける。寄生体、変異体負荷、核形成の失敗がハイパーサイクル組織の限界を定める。
- 第4段階 — 翻訳と原始コーディング: RNAアダプター/メッセンジャー、コンマフリー枠、初期のGGC/GCCコドン、リボソーム非依存のペプチド転移が、ハイパーサイクルをコード化された機能性ポリペプチドへと拡張する。
- 第5段階 — 区画化: 区画化されたハイパーサイクルとプロトセルは、カップリングした複製と翻訳を局在化させ、寄生体による搾取を抑制し、現実的な境界条件下で高次の選択単位を生み出す。
- 第6段階 — ゲノムの統一: 複数のハイパーサイクル複製子が統合ゲノムへと統合される。DNA校正、組換え、忠実度の向上が誤り閾値を移動させ、より大きな統合細胞を可能にする。
連続性の原理: これらの移行は別々の起源ではなく、触媒的閉鎖・情報容量・構造的統合の段階的な増大である。誤りカタストロフィ、寄生体による搾取、共同機能の失敗といった故障モードは境界を示し、後続の段階がそれを克服しなければならない。
選択理論による形式的統合: 固定点解析とヤコビアン解析、リミットサイクル、ホップ分岐、カップリングのレジームが、統合が安定するときと崩壊するときを記述する。Qβファージの変異誘発は変異体分布と誤り閾値を例示し、文進化ゲームは忠実度が情報をどのように制限するかを示す。DNA校正と組換えが後にこの制限を緩和し、初期のRNA/タンパク質ハイパーサイクルから統合ゲノムがいかに生じうるかを説明する助けとなる。
ポリヌクレオチドから統合細胞への連続性前生物的存在量から統合ゲノムへと至る6段階の階段。上向きの軸は情報容量、触媒的閉鎖、構造的統合の増大を示し、注釈は誤り閾値、寄生体の課題、区画化、ゲノムの統一を示す。
ポリヌクレオチドから統合細胞への連続性
前生物的存在量から統合ゲノムへと至る6段階の階段。上向きの軸は情報容量、触媒的閉鎖、構造的統合の増大を示し、注釈は誤り閾値、寄生体の課題、区画化、ゲノムの統一を示す。