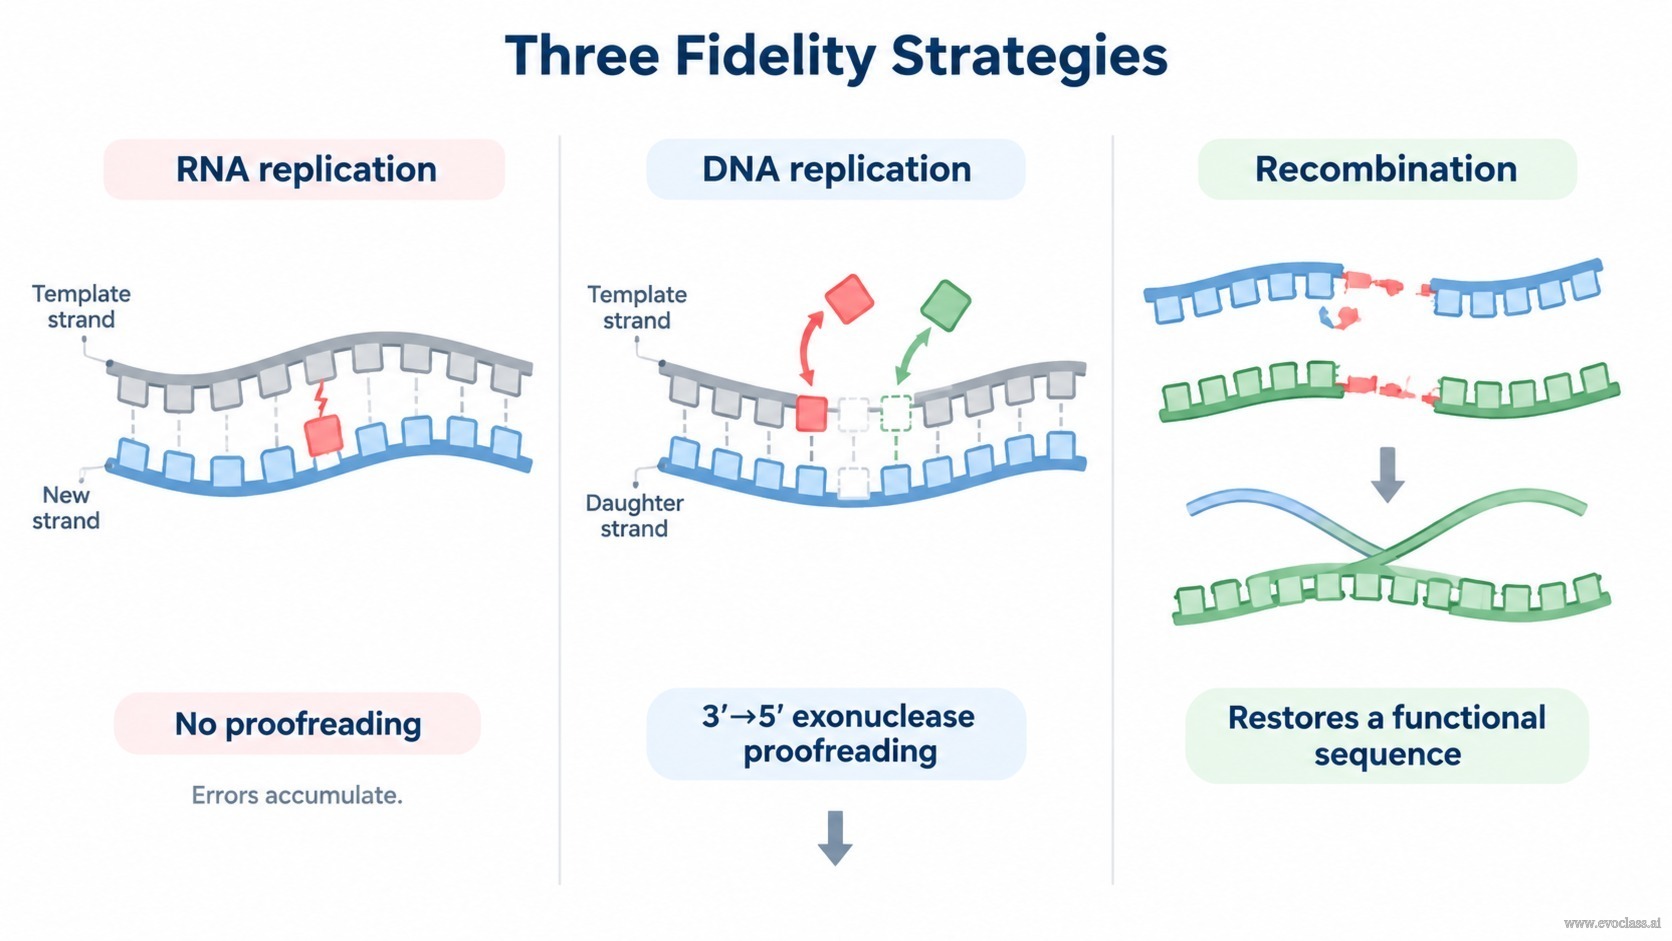
복제자가 얼마나 많은 정보를 유지할 수 있는지는 세 가지 서로 다른 전략에 의해 결정됩니다. RNA 복제의 내재적 충실도, DNA 복제가 추가하는 엑소뉴클레아제 교정, 그리고 단일 염기쌍이 아닌 주형과 개체군 수준에서 정보를 편집하는 재조합이 그것입니다. 이 세 가지가 함께 실효 돌연변이율을 결정하며, 따라서 오류 역치가 어디에 위치하는지와 준종(quasi-species)이 얼마나 안정적으로 유지될 수 있는지를 좌우합니다.
RNA 복제: 교정 없는 빠른 복사
RNA 복제효소는 일반적으로 3′→5′ 엑소뉴클레아제 도메인 없이 성장하는 가닥을 신장합니다. 따라서 오삽입된 뉴클레오타이드는 인식되지도 제거되지도 않습니다. 즉 복제는 편집 없는 단일 합성 단계이며, 오류는 딸 가닥으로 전달됩니다. 그 결과 복제된 10⁴ 염기당 약 1개의 오류 수준으로 높은 염기당 오류율이 나타납니다. 유전체 길이가 길어질수록 오류 없는 자손의 비율이 감소하기 때문에 긴 유전체는 유지될 수 없으며, RNA 유전체는 작게 유지되어 오류 역치에 가까이 위치합니다. Qβ 파지 돌연변이 유발 실험은 이러한 양상을 잘 보여줍니다. 즉, 단일하고 뚜렷한 야생형 서열 대신, 개체군은 마스터 서열을 중심으로 분포한 넓은 돌연변이 구름으로 나타납니다.
DNA 복제: 교정이 유전체 길이를 확보한다
DNA 중합효소는 일반적으로 새로 추가된 3′ 말단을 검사하는 3′→5′ 엑소뉴클레아제 활성을 지니고 있습니다. 불일치를 감지하면 효소는 방향을 되돌려 신장이 재개되기 전에 잘못된 뉴클레오타이드를 가수분해하므로, 오류가 제거되고 올바른 염기가 삽입됩니다. 염기쌍 선택성 위에 층을 이루는 교정은 오류율을 두세 자릿수만큼 낮춥니다. 오류 역치의 관점에서, 더 높은 염기당 정확도 q는 선택이 유지할 수 있는 최대 유전체 크기를 높입니다. 즉 νmax ≈ ln σm ⁄ (1 − q)에서 더 작은 오류율 (1 − q)은 제약을 완화하여 더 큰 유전체가 안정적으로 유전될 수 있게 합니다. 교정 능력을 잃은 DNA 중합효소 엑소뉴클레아제 돌연변이체는 예측된 대로 돌연변이율이 증가하고 실효 유전체 크기가 감소하는 모습을 보입니다.
재조합: 주형 수준에서의 수선과 재배열
재조합은 중합효소 활성 부위에서 염기쌍 형성을 개선하지 않습니다. 대신 주형과 개체군 수준에서 작용합니다. 상동 재조합은 서로 다르게 손상된 두 주형으로부터 온전한 서열을 재구성할 수 있고, 주형 전환은 정체되거나 오류가 쌓인 복사본을 구제할 수 있으며, 재배열은 유익한 변이체를 하나의 배경으로 결합하는 동시에 유해한 변이체를 제거할 수 있습니다. 그 이득은 동시 감염, 이용 가능한 상동성, 선택의 강도에 따라 달라지므로, 준종 관점에서 재조합은 염기당 오류율 자체가 아니라 실효 돌연변이 부하와 개체군 수준의 돌연변이–선택 평형을 변화시킵니다.
오류 역치와 준종의 결과
RNA의 높은 오류율은 νmax를 제약하고 개체군을 오류 역치 근처에 머무르게 합니다. DNA 교정은 오류율을 낮추어 그 제약을 완화합니다. 재조합은 실효 돌연변이 부하를 줄이거나 적합한 서열을 재생성하여, 선택이 작용하는 변이체 분포를 이동시킵니다. 비교 원리는 곧바로 따라옵니다. RNA 충실도는 빠른 변이와 작은 정보량에 유리하고, DNA 교정은 유전체 확장과 안정적 유전에 유리하며, 재조합은 개체군 수준의 수선과 모듈식 혁신에 유리합니다. 이들은 상호 배타적인 전략이 아니라 상호 보완적인 전략이며, 실제 복제자들은 이들을 다양한 정도로 결합합니다.
비교 원리. RNA 충실도: 빠른 변이, 작은 유전체, 높은 오류 부하. DNA 교정: 한 자릿수 이상 낮은 오류율, νmax 상승, 큰 유전체의 안정적 유전. 재조합: 염기쌍 형성 정확도의 변화는 없으나 개체군 수준의 수선, 재배열 및 유해 변이체 제거.
세 가지 충실도 전략왼쪽: RNA 복제는 불일치 염기를 삽입하고, 교정 기능이 없어 이를 딸 가닥에 그대로 남기므로 염기당 오류율이 높게 유지됩니다. 가운데: DNA 중합효소의 3′→5′ 엑소뉴클레아제가 불일치한 3′ 뉴클레오타이드를 절제하고 올바른 뉴클레오타이드를 삽입하여 오류율을 자릿수 단위로 낮춥니다. 오른쪽: 재조합은 서로 다르게 손상된 두 주형을 결합하여 기능적 서열을 복원함으로써, 단일 염기쌍이 아닌 개체군 수준에서 정보를 수선합니다.