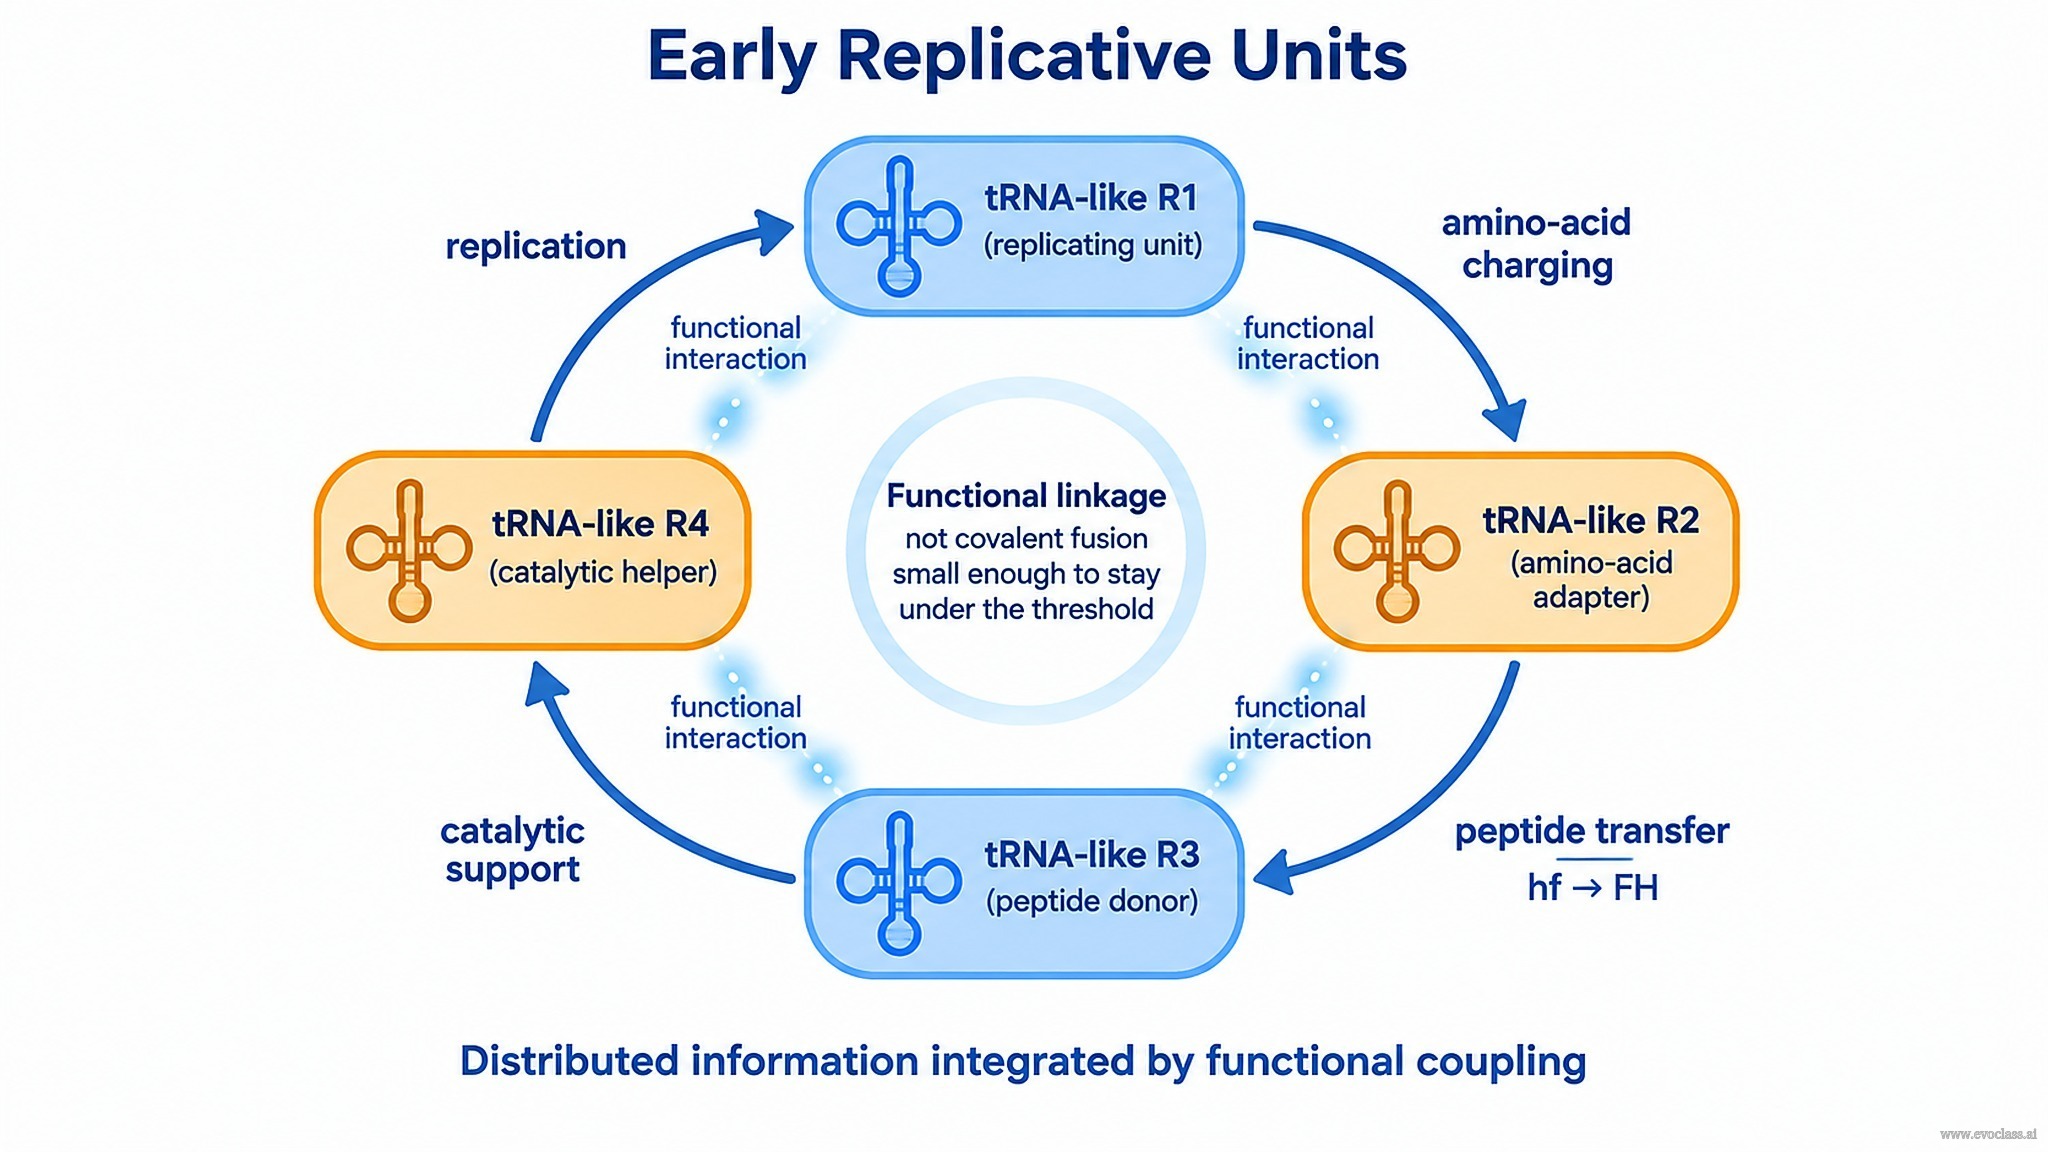
초기 자기복제 단위 는 강한 물리적 제약에 직면했습니다. 복제는 결코 완벽하지 않으며, 오류 임계값 은 복제자가 담을 수 있는 정보의 양을 복제 정확도에 묶습니다. 즉, 서열이 길수록 매 복제마다 오류 복사에 노출되는 위치가 많아지고, 암호화된 메시지는 더 빠르게 소실됩니다. 따라서 초기 복제자는 사용 가능한 충실도로 복사될 만큼 충분히 작으면서 동시에 중요한 기능을 수행할 만큼 충분히 구조화된 상태를 유지해야 했습니다. 두 요건을 동시에 충족하는 분자는 놀랄 만큼 크기가 작습니다. 즉 tRNA 정도의 크기로, 대략 70~90 뉴클레오티드에 불과합니다.
크기와 충실도의 트레이드오프
의미 있는 서열을 유지하기 위한 조건을 q̄m ·
tRNA 유사 분자가 이 창에 들어맞는 이유
tRNA 유사 RNA는 작지만 형태가 없는 것은 아닙니다. 이는 재현 가능하게 조밀한 클로버잎 구조로 접히고, 이어서 안정적인 L자형 구조로 더 응축되며, 3′ 말단에 아미노산을 부착할 수 있습니다. 폴딩의 재현성이 결정적 특성입니다. 동일한 서열은 항상 동일한 형태를 만들어내므로, 하나의 분자가 동시에 주형이자 기능적 객체가 될 수 있습니다. 작은 크기는 오류 임계값 아래에 머물게 하고, 안정적인 폴딩은 인식, 결합, 아미노산 처리, 촉매 지원과 같은 화학 작용을 가능하게 합니다.
연결 없이 통합하기
전체 정보를 여러 개의 작은 복제자로 나누면 크기 문제는 해결되지만 새로운 문제가 생깁니다. 독립적인 복제자들의 집합은 경쟁자들의 집합이며, 가장 짧거나 가장 빠른 것이 승리합니다. 이 슬라이드의 핵심 주장은 통합에 분자들을 하나의 거대한 게놈으로 결합할 필요가 없다는 것입니다. 통합은 기능적일 수 있습니다. 즉, 각 분자의 산물(RNA, 아미노산, 펩타이드, 촉매 표면)이 다른 분자의 자원이 됩니다. 이러한 의존 관계가 순환을 이루면, 그 집합은 하나의 협력적 단위로 작동하며, 이러한 순환적 상호 지원은 초순환적 조직의 가장 단순한 구현입니다. 분산된 정보를 온전하게 유지하는 것은 공유 결합 융합이 아니라 기능적 결합입니다.
원시 펩타이드 화학의 어댑터로서의 tRNA 유사 분자
이 동일한 분자들이 펩타이드 합성으로 가는 다리를 제공합니다. tRNA 유사 RNA는 어댑터 또는 전달자로 작용할 수 있습니다. 즉, 특정 아미노산을 운반하고, 정교한 장치 없이도 그 아미노산을 성장 중인 펩타이드 사슬로 넘겨줄 수 있습니다. 충분히 흔하게 존재하는 제한된 수의 아미노산만 다루면 되고, 특이성이 RNA 자체의 서열에 담길 수 있기 때문에, 이미 다른 이유로 존재하고 있던 복제자들을 이용해 원시적 번역 유사 화학이 가능해집니다.
hf → FH 구조 전환
특정 tRNA가 hf 구조에 있는지 FH 아니면 구조에 있는지는 무엇에 부착되어 있는지에 달려 있습니다. 즉, 아미노산인지 펩타이드 사슬인지에 따릅니다. 아미노산을 펩타이드 사슬로 전달하면 분자는 hf에서 FH로 전환됩니다. 이 모델은 정교한 번역 장치가 없는 상황에서 메시지가 어떻게 판독될 수 있는지를 잘 설명합니다. tRNA 자체의 상태가 전달 단계가 발생했는지를 기록하여, 단순한 화학 평형으로는 제공할 수 없는 방향성을 과정에 부여합니다.
핵심 정리: 큰 게놈이 아니라 작은 분자, 안정적인 폴딩, 순환적 기능 결합이 초기 정보가 오류 임계값을 넘어 살아남게 하는 것입니다.
초기 자기복제 단위네 개의 tRNA 유사 RNA 복제자가 순환 구조에 배치되어 오직 기능적 상호작용으로만 연결되어 있습니다. 즉, 아미노산 충전, 펩타이드 전달(이 과정에서 운반체가 hf에서 FH 구조로 전환됨), 촉매 지원, 복제입니다. 의존 관계가 다시 자기 자신으로 되돌아오기 때문에, 이 집합은 하나의 통합된 단위로 작동하며, 분산된 정보는 하나의 거대한 게놈으로 연결되지 않고도 살아남습니다.