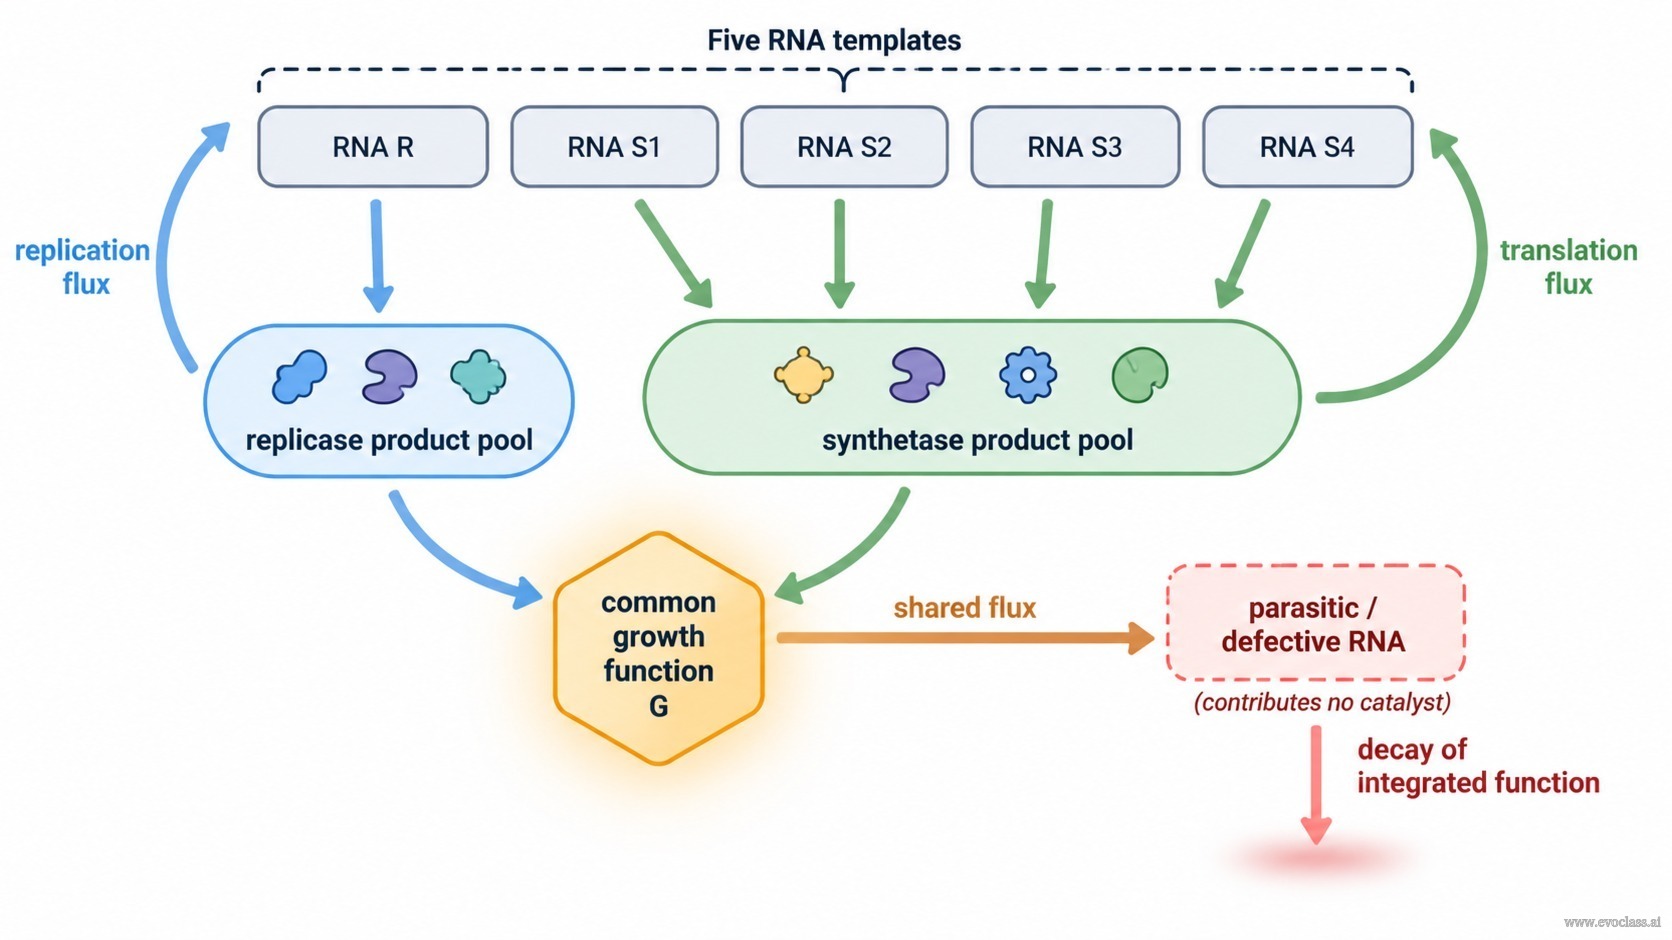
최소 복제효소-합성효소 체계 는 구체적인 분자적 제안으로 표현될 수 있는 가장 작은 번역 결합 초순환이다. 즉, 하나의 주형(R)이 복제효소를 암호화하고, 네 개의 주형(S1–S4)가 합성효소를 암호화하는 RNA 가닥들의 집합이다. 이는 의도적으로 단일 자기복제 RNA가 아니다. 대신 이 체계는 하나의 컨소시엄으로, 동일한 RNA 집단이 복제를 위한 주형과 번역을 위한 메시지를 모두 제공한다.
기능적 연계: 복제효소 산물은 다섯 개의 RNA 가닥을 모두 복제하며, 합성효소 산물은 동일한 다섯 개 가닥의 번역을 가능하게 한다. 동일한 집단이 주형이자 촉매 산물이기 때문에, 복제와 번역은 별개의 하위 시스템이 아니라 상호 결합되어 있다. 이러한 결합이 최소 초순환의 구조적 핵심이다.
공유 성장 환원: 촉매가 전체 집합에 작용할 때, 개별 복제와 번역 항은 촉매를 암호화하는 가닥에만 사적인 것이 아니다. 그것들은 공유 자원 항이 된다. 수학적으로 결합 시스템은 모든 가닥에 대한 단일 공통 성장 함수G 로 환원된다. 각 가닥의 순 성장은 집단적 기여와 상대적 조성 항의 합으로 표현될 수 있지만, 촉매 생산에 대한 선택적 보상은 모든 구성원이 동일한 성장 플럭스를 끌어다 쓰기 때문에 희석된다.
쇠퇴 메커니즘: 모든 구성원이 동일한 성장 플럭스를 끌어다 쓰기 때문에, 촉매 생산을 줄이거나 생략한 돌연변이도 공유 이익을 받는다. 그러한 변이체가 더 빨리 복제되면—예를 들어 RNA가 더 짧기 때문에—복제효소나 합성효소 활성을 기여하지 않고도 상대적 빈도를 높일 수 있다. 이는 기능적 촉매를 희석시키고 기생성 또는 퇴화된 가닥이 축적되도록 한다. 따라서 최소 체계만으로는 견고한 다윈적 통합에 충분하지 않다.
안정성 함의: 쇠퇴를 억제하려면 추가적인 조직화가 필요하다. 구획화, 공간 구조, 또는 초순환적 폐쇄는 촉매, 주형, 산물을 함께 국소화함으로써 가닥의 생존을 그 자체의 촉매적 기여에 의존하게 만들 수 있다. 그러한 조직화는 화학양론적 균형을 유지하고 공통 성장 플럭스가 비생산적 변이체에 의해 포획되는 것을 방지한다.
분석적 세부 사항: 원 출처의 논의(66–76쪽)에서 공유 성장 환원은 집단 변수의 아핀 변환을 통해 드러난다. 이 변환은 집단 성장 모드를 상대적 조성 모드로부터 분리한다. 공통 성장 모드는 전체 앙상블의 팽창을 설명하고, 나머지 모드는 조성이 어떻게 변하는지—기생성 또는 결함 가닥의 침입을 포함하여—를 설명한다. 이러한 좌표 변환은 공유 성장이 각 구성 요소의 촉매적 기여를 선택적으로 보상할 수 없는 이유를 명확히 한다.
최소 복제효소·합성효소 체계다섯 개의 RNA 주형—복제효소를 암호화하는 R과 합성효소를 암호화하는 S 1 –S 4 —이 복제효소와 합성효소 산물 풀에 공급된다. 두 풀 모두 공통 성장 함수 G로 수렴한다. 점선으로 표시된 기생성 RNA는 동일한 플럭스를 받지만 촉매를 기여하지 않아 통합 기능의 쇠퇴를 초래한다.