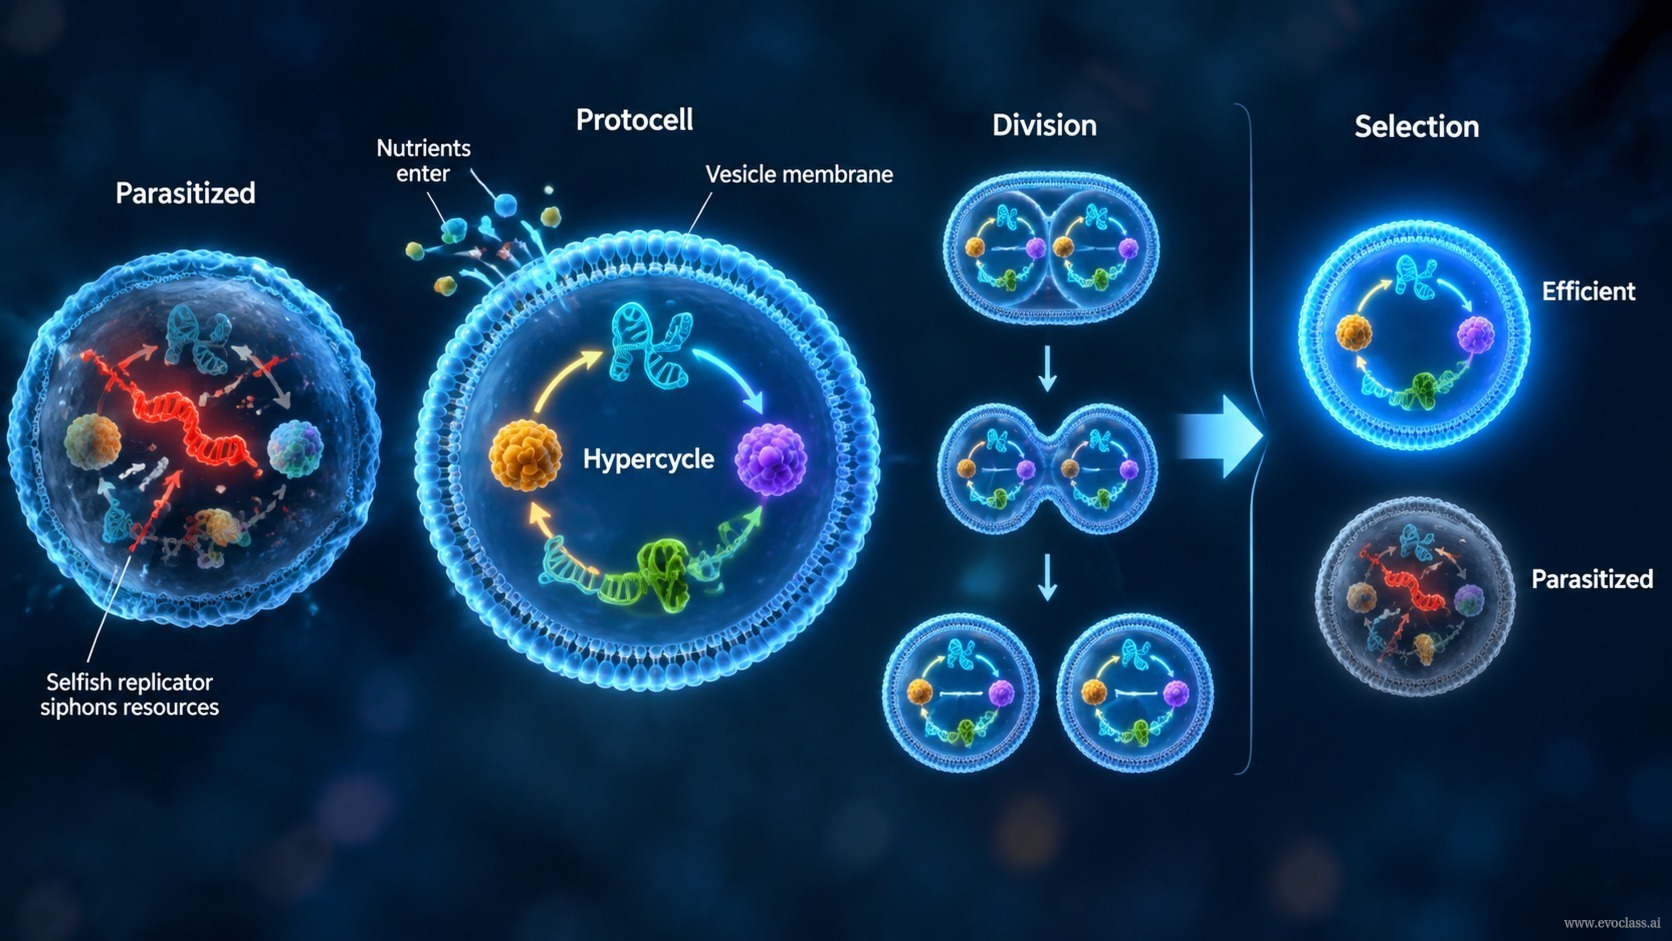
구획화는 초기 생명 진화의 결정적 전환점입니다. 구획화는 기능적으로 결합된 초순환, 즉 서로의 복제를 촉매하는 자기복제 분자들의 집합을 원시세포라는 막으로 둘러싸인 단위로 변화시킵니다. 이 단위는 전체로서 선택될 수 있습니다. 소포체 내부에서는 초순환 역학이 지속됩니다. 각 복제자는 다음 복제자의 복제를 촉매하여 상호 의존의 닫힌 순환을 형성합니다. 그러나 경계는 새로운 차원의 조직화를 도입합니다. 경계는 촉매와 그 산물을 가까이 유지하여 촉매적 이익이 그것을 생산하는 복제자와 계속 연관되도록 합니다. 이러한 공간적 구획은 유익한 분자가 그 근원으로부터 확산되는 것을 막고, 기생적 부분순환이 집단에 기여하지 않고 시스템을 이용할 기회를 줄입니다.
이제 선택은 구획 수준에서 작용합니다. 더 높은 집단적 복제 속도, 더 큰 내부 안정성, 더 효율적인 분열을 보이는 소포체는 덜 효율적이거나 기생적 요소를 품은 소포체를 압도합니다. 원시세포의 적합도는 창발적 형질에 달려 있습니다. 구성 요소 간 촉매적 결합의 강도, 기생적 부분순환에 대한 저항성, 분열 시 구성 요소가 분리되는 충실도, 그리고 성장 및 분열 속도가 그것입니다. 중요한 것은 구획의 성장과 분열이 그 분자 구성 요소의 내부 복제와 결합되어야 한다는 점입니다. 분열이 무작위로 일어나거나 복제와 결합되지 않으면, 유리한 초순환은 희석되거나 상실될 수 있습니다.
따라서 구획화는 초순환 조직의 근본적 한계를 해결합니다. 협력적 네트워크가 통합된 전체로서 경쟁할 수 있게 함으로써 복잡성의 진화를 위한 메커니즘을 제공하는 것입니다. 그러나 생존 가능성은 물리적 현실에 의해 제약됩니다. 막을 통한 영양분 흡수, 막 투과성, 온도, 복제 충실도가 모두 경계 조건을 부과합니다. 이러한 제약과 내부 역학 간의 상호작용이 어떤 원시세포가 생존하고 증식할지를 결정합니다.
예시: 소포체 간의 선택
각각 서로 다른 초순환 네트워크를 포함하는 두 소포체를 생각해 봅시다. 소포체 A는 효율적인 촉매 결합을 가지고 빠르게 분열하는 반면, 소포체 B는 자원을 고갈시키거나 필수 구성 요소를 제대로 분리하지 못하는 기생적 부분순환을 포함합니다. 연속적인 성장과 분열을 거치면서 소포체 A의 개체군은 소포체 B에 비해 증가합니다. 선택되는 형질은 어느 단일 분자가 아니라 원시세포의 집단적 내부 네트워크이며, 이는 선택이 통합된 구획에서 작용함을 보여줍니다.
소포체로 캡슐화된 초순환막 경계를 가진 원시세포가 복제자와 촉매로 이루어진 초순환 네트워크를 캡슐화합니다. 영양분이 막을 통해 유입되고, 구획이 성장하고 분열합니다. 개체군 패널은 효율적인 촉매 결합을 가진 소포체가 기생적 부분순환을 가진 소포체보다 선택에서 유리함을 보여줍니다.