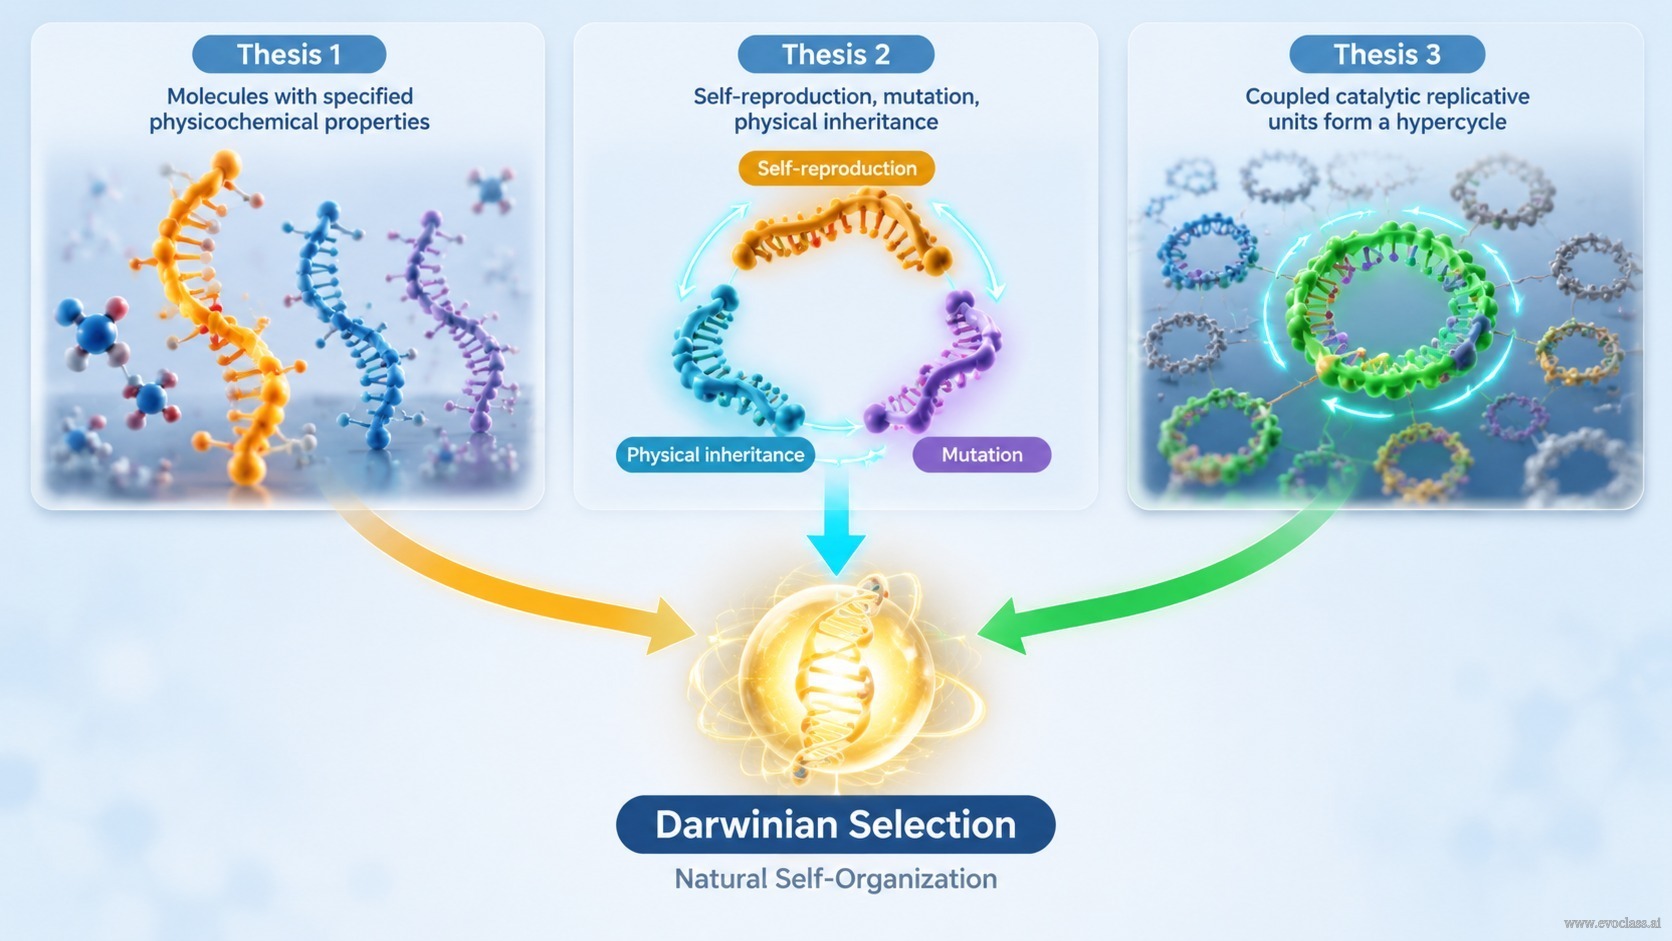
A teoria do hiperciclo apresenta três teses centrais que, em conjunto, especificam como a replicação molecular pode ser integrada à seleção darwiniana. As teses avançam das precondições moleculares da seleção para os requisitos da dinâmica darwiniana e, em seguida, para a organização de ordem superior que conecta as unidades autorreplicantes.
Tese 1 — Uma base molecular especificada
A seleção e a evolução não são atributos globais de qualquer forma arbitrária de matéria. São consequências de propriedades físico-químicas peculiares e especificáveis. Segundo esta tese, um sistema só pode ser considerado em processo de seleção quando suas moléculas constituintes possuem características cinéticas, termodinâmicas e estruturais concretas que permitem a replicação diferencial. Apelos à matéria ou à autoorganização em abstrato são insuficientes; o mecanismo deve ser identificado.
Tese 2 — Requisitos para a seleção darwiniana
A seleção darwiniana exige três capacidades molecularmente instanciadas: autorreprodução, mutação, e uma base física para a hereditariedade. A autorreprodução fornece continuidade da linhagem; a mutação fornece variação; e um mecanismo físico de hereditariedade garante que estruturas moleculares alteradas sejam transmitidas aos descendentes. Sem essas três capacidades, um processo pode mudar ao longo do tempo, mas não constitui seleção darwiniana.
Tese 3 — Organização hipercíclica
A teoria do hiperciclo propõe uma integração autoorganizadora, catalítica e funcional de unidades autorreplicativas. É essa organização de ordem superior que conecta a replicação molecular à seleção darwiniana e à autoorganização natural. Um replicador isolado está limitado por uma fidelidade de cópia finita e por um limiar de erro; a organização hipercíclica oferece uma forma de reter e acoplar várias entidades replicativas, de modo que o coletivo possa manter e evoluir mais informação do que uma única unidade.
Interdependência e restrições
As três teses são interdependentes. A Tese 2 especifica os requisitos moleculares para a seleção, enquanto a Tese 3 aborda como essas unidades podem ser organizadas além de replicadores isolados. A fidelidade de cópia e os limiares de erro atuam como restrições que conectam as teses: eles determinam quanta informação uma única unidade replicativa pode manter e, portanto, motivam a integração. Cada tese deve receber um mecanismo molecular ou físico-químico concreto; a mera invocação da autoorganização ou à matéria não satisfaz a teoria.
Três Teses Centrais da Teoria do HipercicloO visual resume as três teses centrais: uma base molecular especificada para a seleção, os requisitos moleculares da seleção darwiniana (autorreprodução, mutação, hereditariedade física) e a organização hipercíclica das unidades autorreplicativas. As setas mostram que todas as três convergem para a seleção darwiniana e a autoorganização natural.