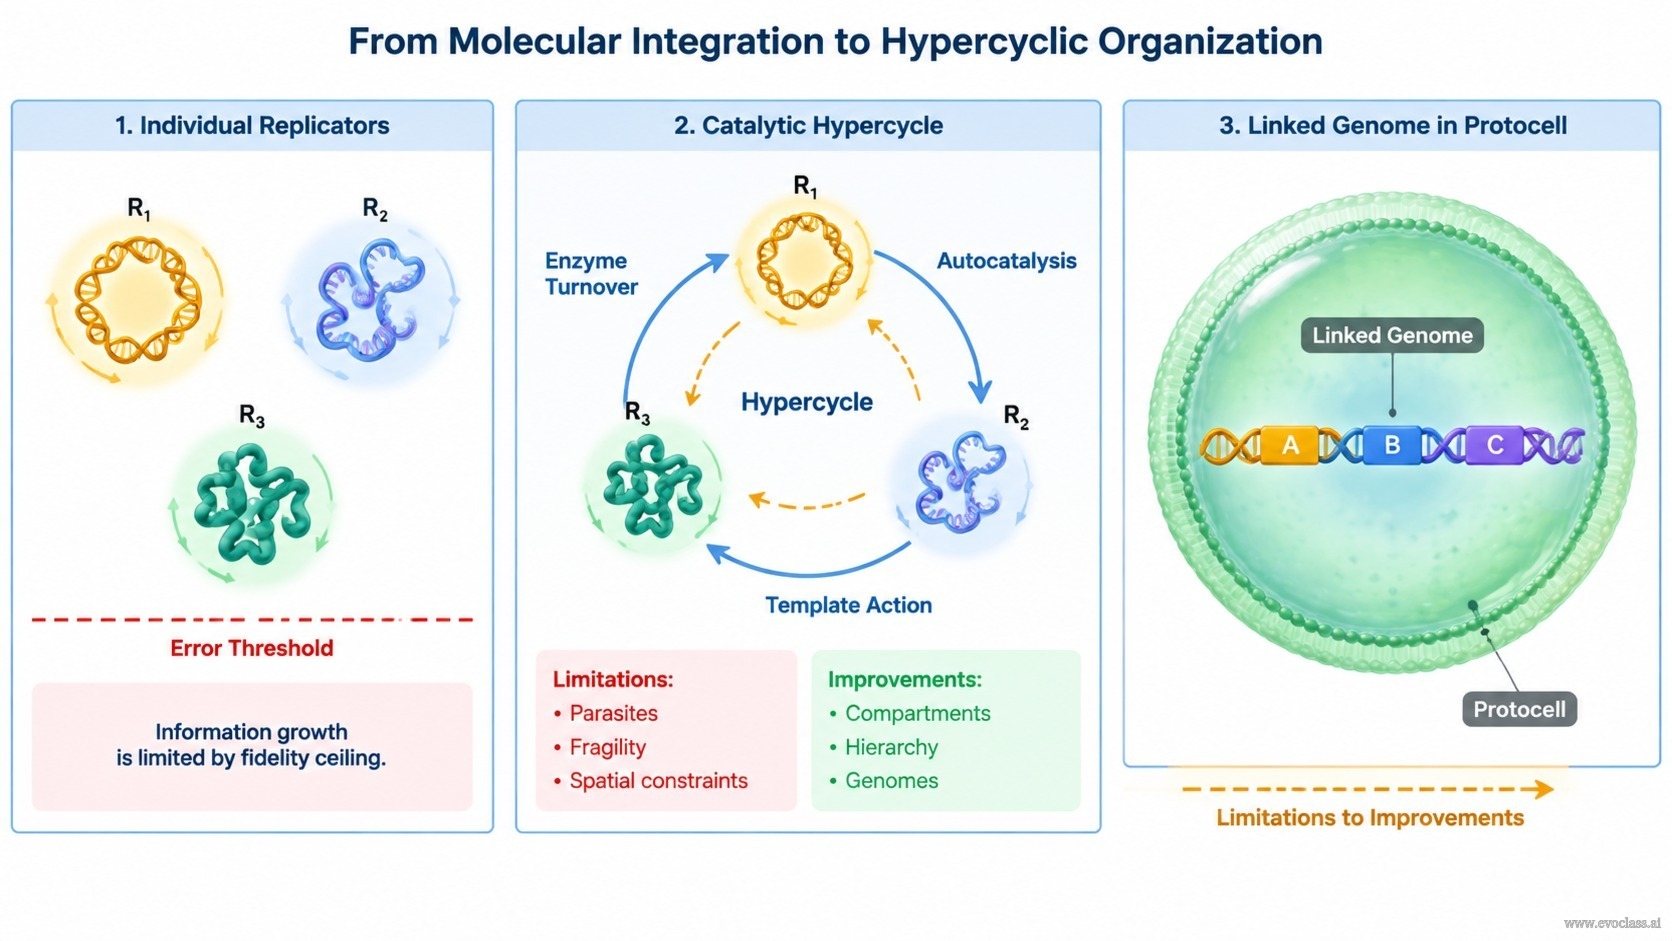
O slide capta uma transição decisiva na evolução molecular inicial: quando uma única unidade autorreplicativa já não consegue carregar informação suficiente, a seleção pode favorecer a integração de várias entidades autorreplicativas. A razão é o limiar de erro. A fidelidade de cópia de um replicador estabelece um limite superior para o comprimento de uma sequência que pode ser mantida contra a degradação mutacional. Além desse limite, produzir mais informação numa única unidade torna-se contraproducente, porque a maioria das cópias é errónea e a sequência mestra perde-se.
A organização hipercíclica resolve esta restrição ao acoplar múltiplas unidades autorreplicativas numa rede catalítica fechada e cooperativa. Nesta rede, cada unidade apoia a replicação das outras através de ciclos catalíticos, autocatálise, ação de molde e renovação enzimática. O coletivo, e não qualquer molécula isolada, torna-se a unidade de seleção. A integração funcional não exige, portanto, que os genes estejam fisicamente ligados desde o início; requer apenas que os seus produtos catalíticos retroalimentem a replicação dos membros da rede.
Porque o Acoplamento Funcional Vem Primeiro
Antes de os genomas existirem como estruturas ligadas, a seleção pode atuar sobre um conjunto de replicadores que cooperam cataliticamente. Um hiperciclo converte competidores independentes numa rede cooperativa capaz de manter mais informação coletiva do que qualquer membro isolado. Isto pode também proporcionar um caminho para funções iniciais relacionadas com a tradução, porque várias unidades semelhantes a RNA podem contribuir com diferentes papéis catalíticos ou de codificação sem que nenhuma unidade exceda o seu limite de fidelidade.
Da Integração Funcional à Integração Estrutural
À medida que os genomas evoluem, o acoplamento funcional pode ser substituído pela integração estrutural completa dos genes. Mesmo as células conhecidas mais primitivas têm genomas que são unidades estruturais. A ligação estrutural transforma o conjunto cooperativo numa única entidade hereditária, reduz a dependência do acoplamento catalítico difusível e pode proteger os genes cooperantes de serem perdidos ou explorados separadamente.
A Justificação do Espetro de Mutantes
Uma questão central é porque usar a organização hipercíclica de muitos genes mutantes isolados em vez de um genoma em crescimento contínuo. Para um conjunto de 100 genes, o número de mutantes com k erros é
Limitações e Melhorias
A organização hipercíclica não é uma solução final. Pode ser indireta, dinamicamente frágil, vulnerável a replicadores parasitas ou egoístas e dependente de restrições espaciais ou compartimentais. As melhorias incluem a compartimentação, os hiperciclos hierárquicos e a eventual formação de genomas estruturais. Estas mudanças estabilizam a cooperação e reduzem a dependência do acoplamento catalítico difusível.
Conclusão: O hiperciclo é um princípio intermédio de auto-organização natural: liga unidades autorreplicativas através da cooperação catalítica, de modo que um coletivo possa manter informação para além do limite de qualquer replicador isolado, e prepara o caminho para genomas estruturalmente integrados.
Da Integração Molecular à Organização HipercíclicaA Etapa 1 mostra unidades autorreplicativas individuais limitadas por um teto de fidelidade; a Etapa 2 mostra ciclos catalíticos, autocatálise, ação de molde e renovação enzimática a formar uma rede hipercíclica fechada; a Etapa 3 mostra o acoplamento funcional substituído por um genoma estruturalmente ligado numa protocélula, com uma seta âmbar tracejada a marcar limitações e melhorias estabilizadoras.