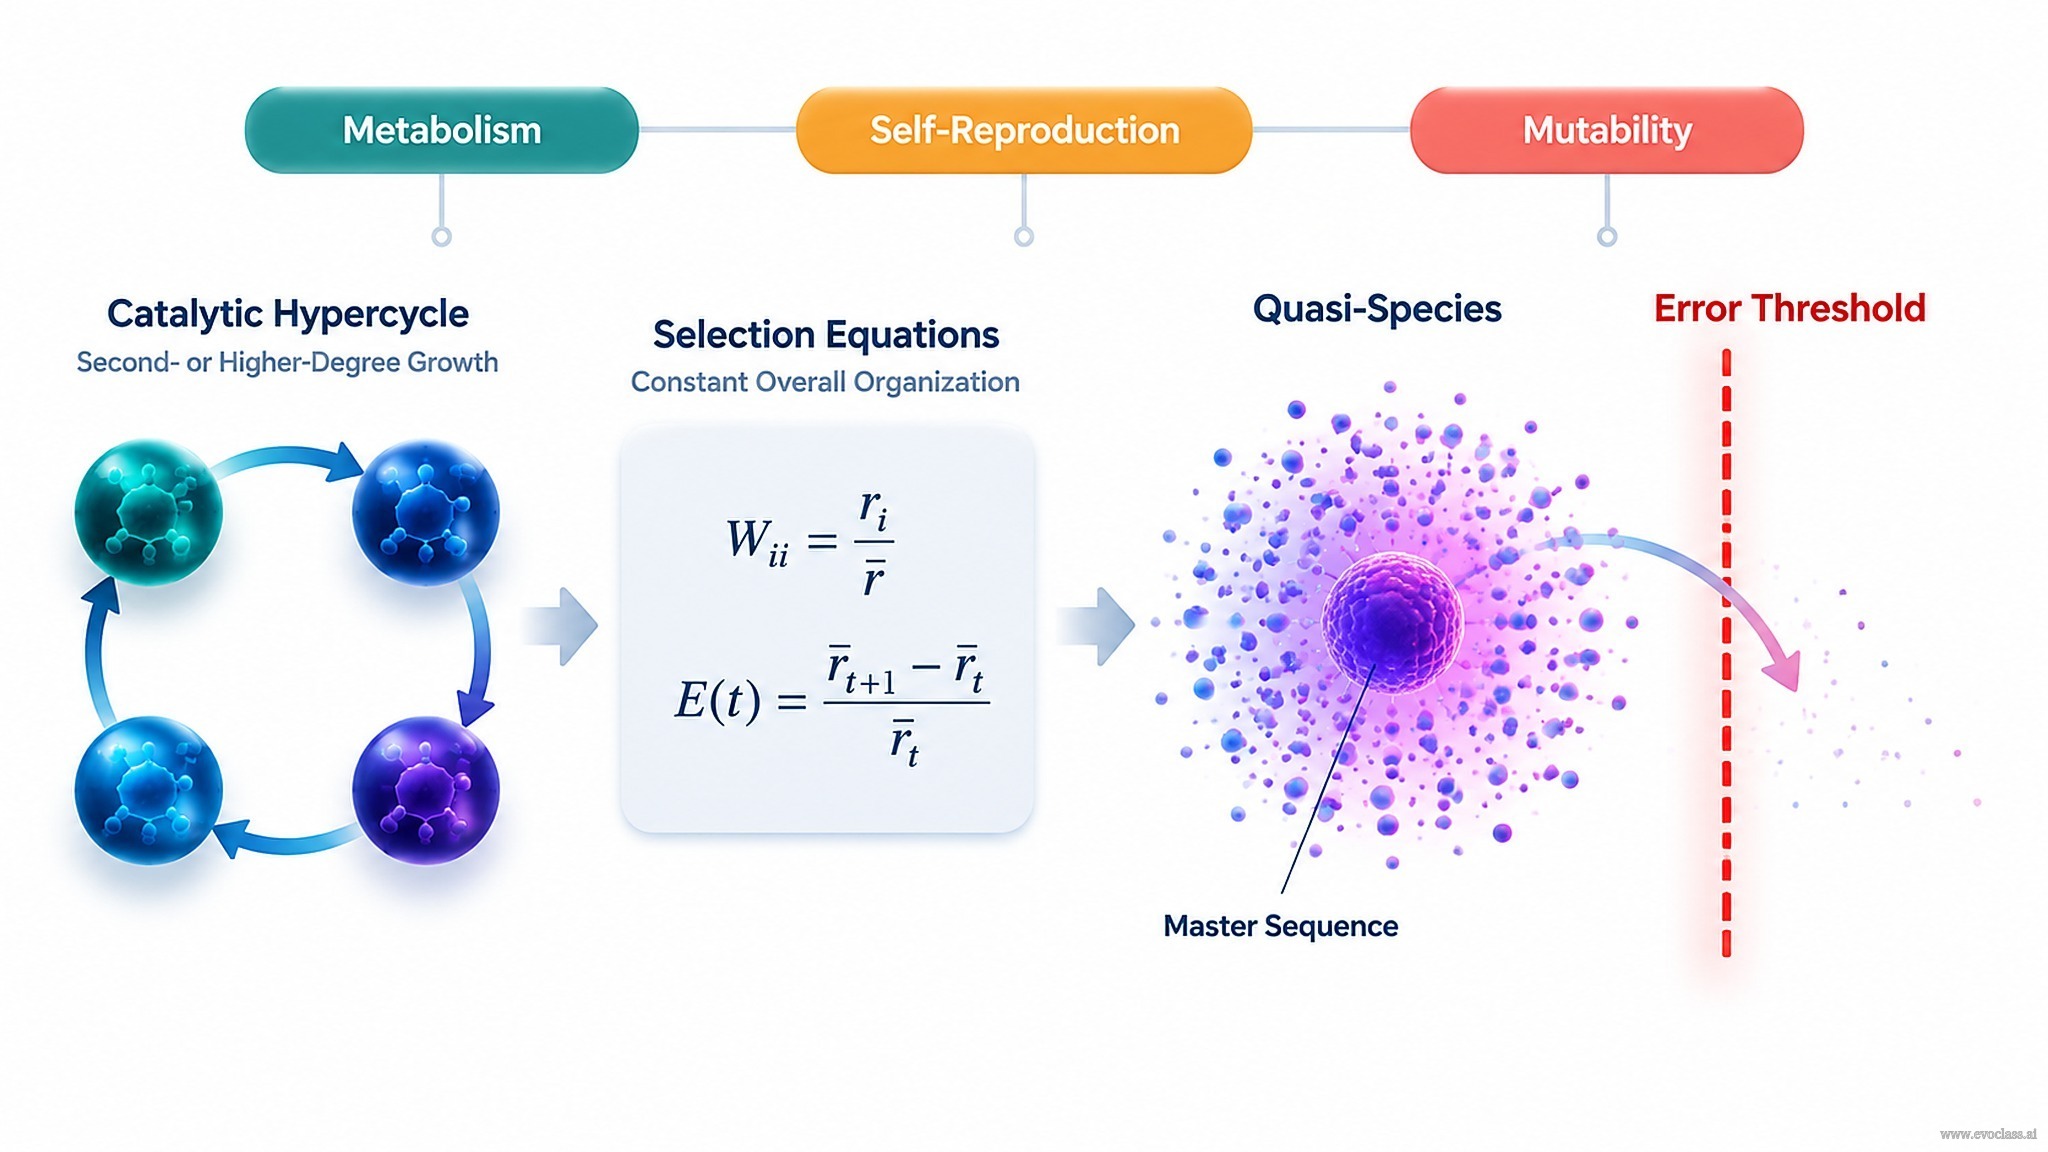
Esta lição começa com uma pergunta central para a teoria da origem da vida: como um conjunto de moléculas autorreplicantes pode gerar seleção molecular sem maquinário celular preexistente? A resposta desenvolvida aqui é o hiperciclo catalítico: uma ligação cíclica de unidades autorreplicantes em que a replicação de cada unidade é cataliticamente sustentada por outro membro do ciclo. O resultado é a auto-organização coletiva, e não uma coleção de replicadores independentes.
Três organizações de crescimento
- Crescimento catalítico simples: um catalisador externo promove a replicação de um molde, mas o próprio catalisador não é produzido pelo mesmo ciclo. A lei de crescimento não é autoamplificadora.
- Crescimento autocatalítico: uma molécula catalisa a sua própria replicação ou a de moléculas do mesmo tipo. A taxa de crescimento contém um termo proporcional à primeira potência da concentração do replicador — autoamplificação de primeiro grau.
- Crescimento hipercíclico: a replicação é organizada como um ciclo fechado A → B → C → ... → A. Como cada membro é produzido sob catálise de outro membro, o crescimento global depende de produtos de pelo menos duas concentrações. É por isso que os hiperciclos catalíticos são sistemas de segundo grau ou superior.
A distinção é importante porque apenas a organização hipercíclica acopla a autorreplicação a uma dinâmica coletiva e não linear capaz de sustentar a seleção no nível molecular.
Pré-requisitos darwinianos
Para que ocorra a seleção molecular, três condições devem ser satisfeitas:
- Metabolismo: uma fonte de energia livre e material para manter o estado organizado longe do equilíbrio.
- Autorreprodução: a capacidade das unidades de se multiplicarem, para que variantes vantajosas possam aumentar em número.
- Mutabilidade: variação hereditária, sem a qual não há substrato para a seleção.
Esses três pré-requisitos são condições de contorno: por si só, não especificam a dinâmica quantitativa, mas definem o domínio em que uma descrição darwiniana faz sentido.
Equações de seleção sob organização global constante
Quando a concentração total de replicadores é mantida constante, as frequências
Aqui Wii é o valor seletivo do tipo de replicador i, incorporando as suas taxas de replicação e degradação. E(t) é o produtividade excedente média, a média ponderada pela população dos valores seletivos. Um tipo aumenta em frequência quando o seu W_ii excede E(t) e diminui quando fica abaixo de E(t). A condição de organização constante torna a seleção uma comparação relativa, e não uma corrida de crescimento absoluto.
Equilíbrio mutação-seleção e as quase-espécies
A replicação real é propensa a erros. O equilíbrio mutação-seleção não produz uma única sequência de tipo selvagem dominante; em vez disso, produz uma quase-espécie, uma distribuição organizada de sequências mutantes centrada numa sequência mestra. O tipo selvagem é, portanto, o membro mais provável de uma nuvem de sequências relacionadas, e não o alvo único da seleção. A distribuição é estável quando a vantagem seletiva da sequência mestra equilibra o fluxo mutacional que dela se afasta.
O limiar de erro
A quase-espécie só pode persistir se a taxa de mutação por replicação for suficientemente baixa. Além do limiar de erro, a sequência mestra não consegue transmitir a sua informação de forma confiável, a nuvem de mutantes se deslocaliza e a distribuição organizada colapsa num estado mutacionalmente aleatorizado. Isso limita quanta informação um hiperciclo ou uma quase-espécie pode manter de forma reprodutível. O roteiro inicial — ciclo catalítico → equações de seleção → quase-espécies → limiar de erro — conecta assim a auto-organização molecular ao teto fundamental de informação da evolução darwiniana no nível molecular.
Roteiro do hiperciclo catalíticoUm hiperciclo catalítico fechado conduz às equações de seleção com valor seletivo Wᵢᵢ e produtividade excedente média E(t), depois à nuvem de quase-espécies e à barreira do limiar de erro. Os três pré-requisitos darwinianos — metabolismo, autorreprodução e mutabilidade — enquadram a transição da auto-organização molecular para a seleção molecular.