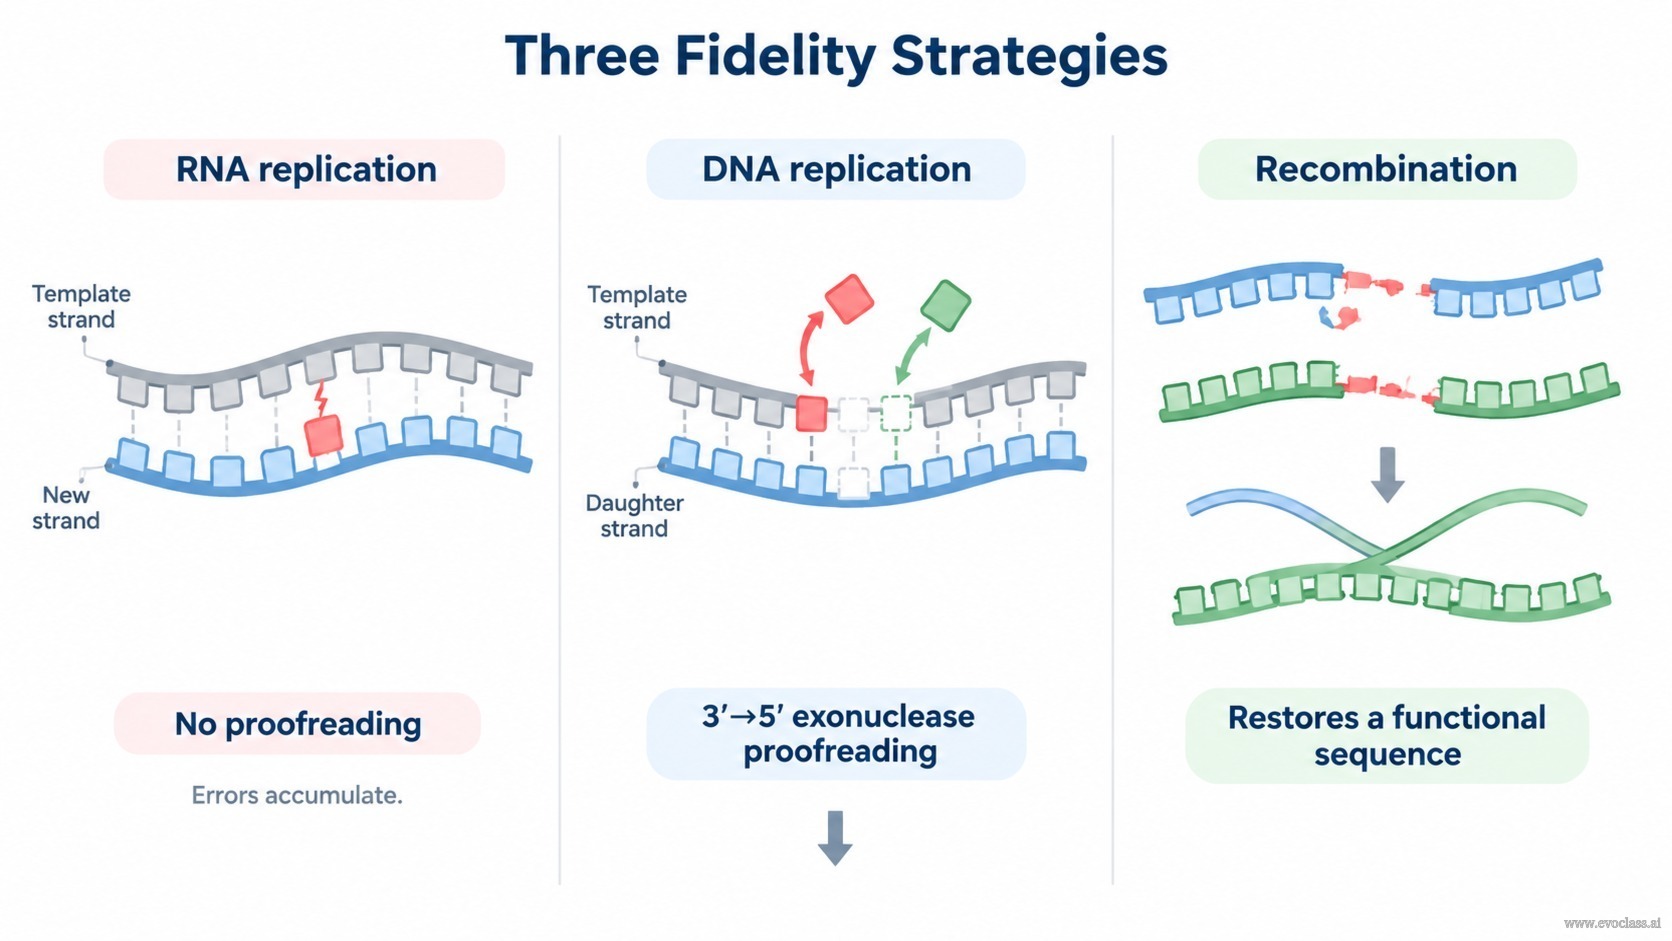
Três estratégias distintas determinam quanta informação um replicador consegue conservar: a fidelidade intrínseca da replicação do RNA, a correção de erros por exonuclease adicionada pela replicação do DNA e a recombinação, que edita a informação ao nível dos moldes e das populações, e não de pares de bases individuais. Em conjunto, elas definem a taxa de mutação efetiva — e, portanto, onde se situa o limiar de erro e quão estável uma quase-espécie pode permanecer.
Replicação do RNA: cópia rápida sem correção de erros
As replicases de RNA geralmente estendem uma cadeia em crescimento sem um domínio de exonuclease 3′→5′. Assim, um nucleótido incorporado incorretamente não é reconhecido nem removido: a replicação é um único passo de síntese sem edição, e o erro é transportado para a cadeia filha. O resultado é uma elevada taxa de erro por base, na ordem de um erro por cada 10⁴ bases copiadas. Como a fração de descendentes sem erros decai à medida que o comprimento do genoma aumenta, genomas longos não conseguem ser mantidos, pelo que os genomas de RNA permanecem compactos e próximos do limiar de erro. As experiências de mutagénese do fago Qβ ilustram este regime: em vez de uma única sequência selvagem bem definida, a população apresenta-se como uma ampla nuvem de mutantes distribuída em torno de uma sequência mestra.
Replicação do DNA: a correção de erros compra comprimento de genoma
As DNA polimerases transportam habitualmente uma atividade de exonuclease 3′→5′ que inspeciona a extremidade 3′ recém-adicionada. Ao detetar um emparelhamento incorreto, a enzima inverte a direção e hidrolisa o nucleótido incorreto antes de a extensão prosseguir, pelo que o erro é removido e a base correta é inserida. A correção de erros sobreposta à seletividade do emparelhamento de bases reduz a taxa de erro em duas a três ordens de magnitude. Em termos de limiar de erro, uma maior precisão por base q eleva o maior genoma que a seleção consegue manter: com νmax ≈ ln σm ⁄ (1 − q), uma taxa de erro mais baixa (1 − q) relaxa a restrição e permite genomas maiores com herança estável. Os mutantes de exonuclease da DNA polimerase, que perdem a correção de erros, mostram exatamente o aumento previsto na taxa de mutação e um tamanho efetivo de genoma reduzido.
Recombinação: reparação e rearranjo ao nível do molde
A recombinação não melhora o emparelhamento de bases no centro ativo da polimerase. Atua, em vez disso, sobre os moldes e as populações. A recombinação homóloga pode reconstruir uma sequência intacta a partir de dois moldes danificados de forma diferente; a troca de molde pode resgatar uma cópia bloqueada ou carregada de erros; e o rearranjo pode combinar variantes benéficas num mesmo fundo genético, eliminando as deletérias. O seu benefício depende da co-infeção, da homologia disponível e da intensidade da seleção, pelo que, do ponto de vista das quase-espécies, a recombinação modifica a carga mutacional efetiva e o equilíbrio mutação–seleção ao nível da população, e não a própria taxa de erro por base.
Limiar de erro e consequências para as quase-espécies
A elevada taxa de erro do RNA restringe νmax e mantém as populações próximas do limiar de erro; a correção de erros do DNA baixa a taxa de erro e relaxa essa restrição; a recombinação pode reduzir a carga mutacional efetiva ou regenerar sequências aptas, deslocando a distribuição de variantes sobre as quais a seleção atua. O princípio comparativo decorre diretamente: a fidelidade do RNA favorece a variação rápida e a informação compacta, a correção de erros do DNA favorece a expansão do genoma e a herança estável, e a recombinação favorece a reparação ao nível da população e a inovação modular. São estratégias complementares, e não mutuamente exclusivas, e os replicadores reais combinam-nas em graus diferentes.
Princípio comparativo. Fidelidade do RNA: variação rápida, genomas compactos, elevada carga de erros. Correção de erros do DNA: taxa de erro ordens de magnitude inferior, νmax aumentado, genomas grandes herdados de forma estável. Recombinação: sem alteração na precisão do emparelhamento de bases, mas com reparação ao nível da população, rearranjo e eliminação de variantes deletérias.
Três Estratégias de FidelidadeEsquerda: a replicação do RNA insere uma base mal emparelhada e, sem correção de erros, deixa-a na cadeia filha, pelo que a taxa de erro por base permanece elevada. Centro: a exonuclease 3′→5′ de uma DNA polimerase excisa o nucleótido 3′ mal emparelhado e insere o correto, baixando a taxa de erro em ordens de magnitude. Direita: a recombinação une dois moldes danificados de forma diferente para restaurar uma sequência funcional, reparando a informação ao nível da população e não de um único par de bases.