Uma unidade replicativa primitiva enfrentava uma restrição física severa. A cópia nunca é perfeita, e o limiar de erro vincula a quantidade de informação que um replicador pode carregar à precisão da sua replicação: quanto mais longa a sequência, mais posições ficam expostas a erros de cópia em cada ciclo, e mais rapidamente a mensagem codificada se degrada. Os replicadores primitivos tinham, portanto, de permanecer pequenos o suficiente para serem copiados com fidelidade utilizável, mas suficientemente estruturados para carregar uma função relevante. As moléculas que satisfazem ambos os requisitos simultaneamente têm um tamanho surpreendentemente modesto — da ordem do tRNA, cerca de 70 a 90 nucleótidos.
O compromisso entre tamanho e fidelidade
Escreva a condição para manter uma sequência significativa como q̄m ·
Porque é que as moléculas semelhantes a tRNA se enquadram na janela
Um RNA semelhante a tRNA é pequeno, mas não é amorfo. Dobre-se de forma reprodutível numa estrutura compacta em trevo que se condensa ainda mais numa estrutura estável em forma de L, e pode ser carregado com um aminoácido na sua extremidade 3′. A reprodutibilidade da estrutura é a propriedade decisiva: a mesma sequência produz sempre a mesma forma, pelo que uma única molécula pode ser simultaneamente um molde e um objeto funcional. O tamanho reduzido mantém-na abaixo do limiar de erro; uma estrutura estável permite-lhe fazer química — reconhecimento, ligação, processamento de aminoácidos e assistência catalítica.
Integração sem ligação
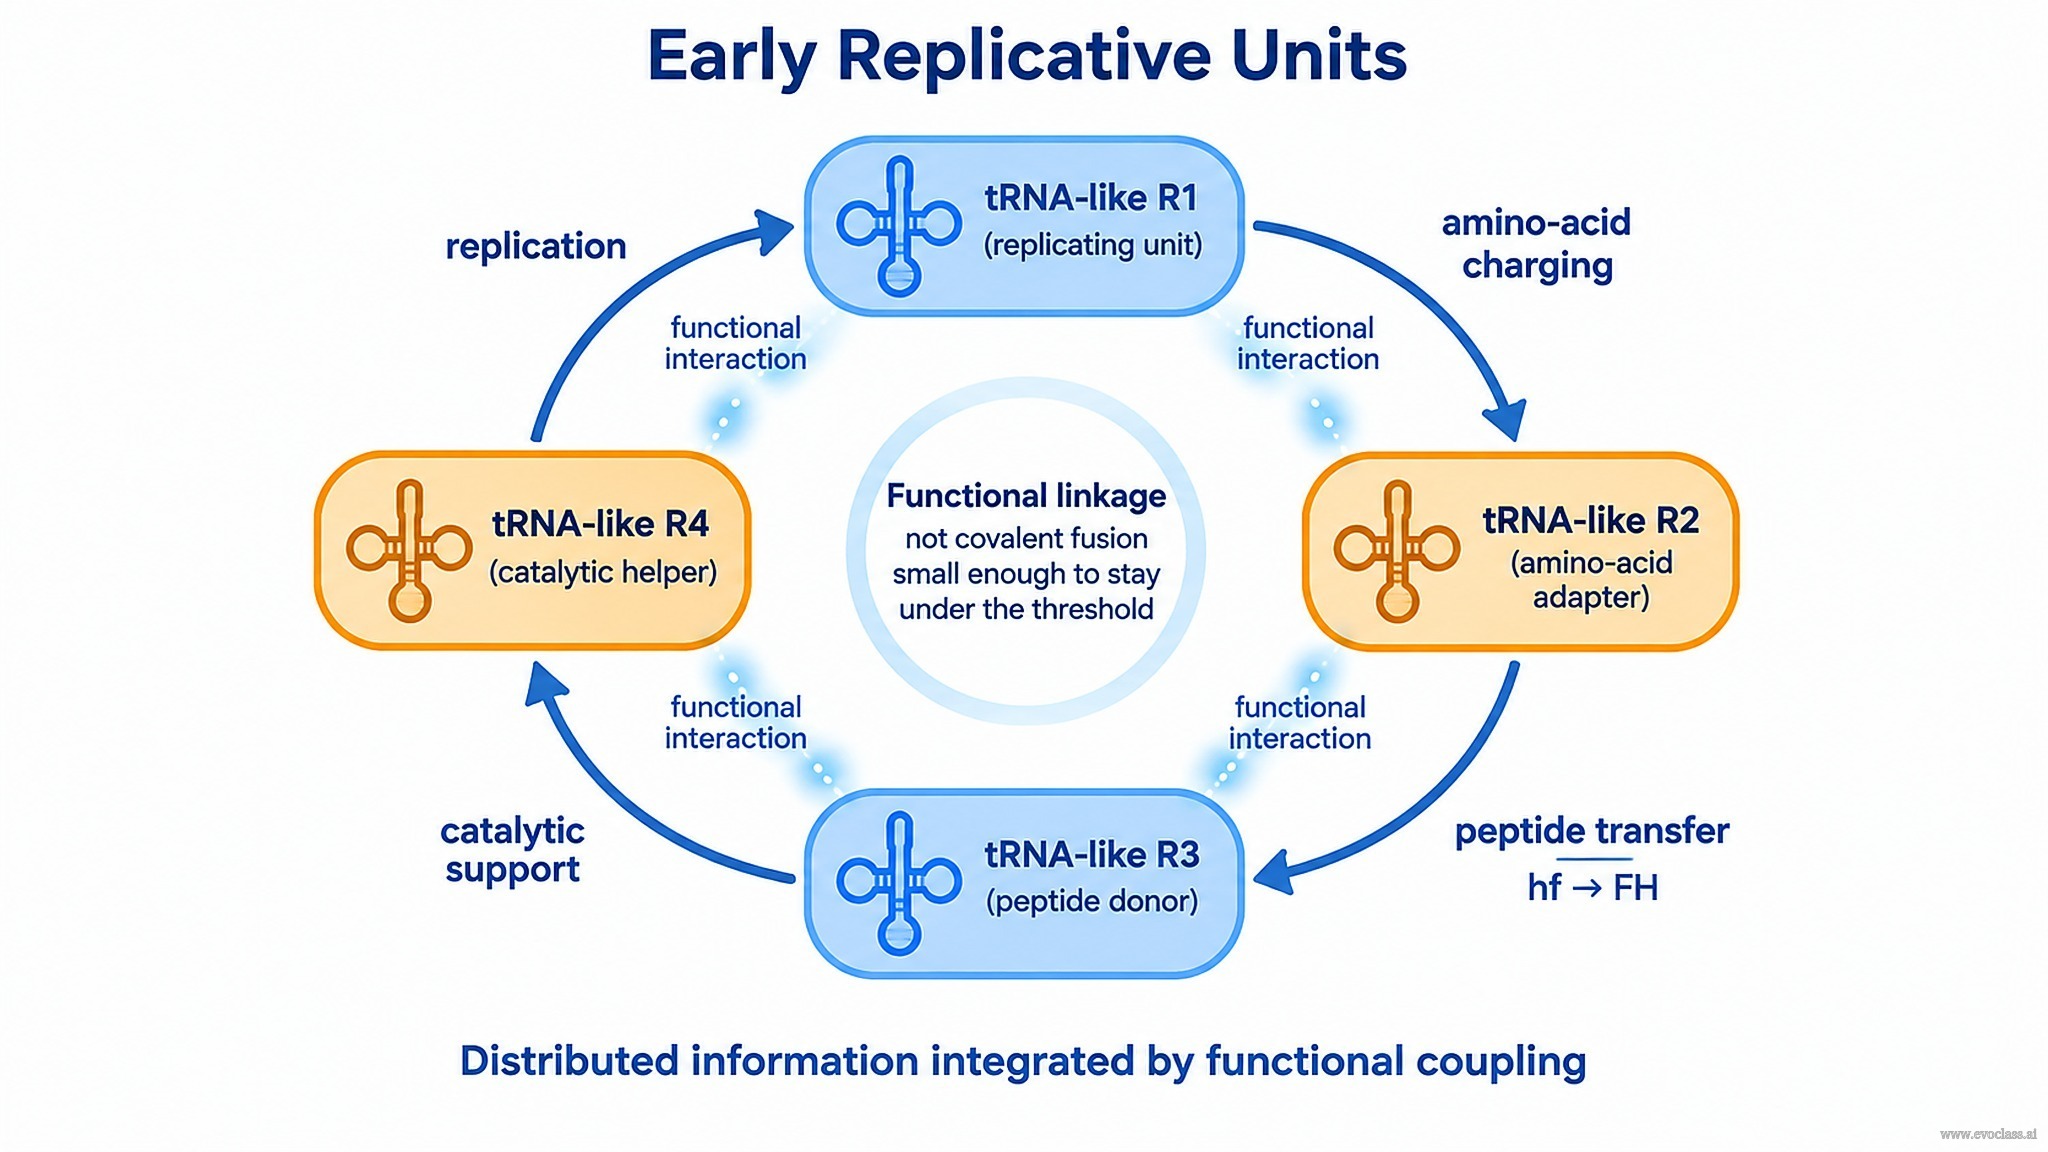
Dividir a informação total por vários replicadores pequenos resolve o problema do tamanho, mas cria um novo: um conjunto de replicadores independentes é um conjunto de competidores, e o mais curto ou o mais rápido vence. O argumento central deste diapositivo é que a integração não exige unir as moléculas num único grande genoma. A integração pode ser funcional: o produto de cada molécula — um RNA, um aminoácido, um péptido, uma superfície catalítica — torna-se um recurso para outra molécula. Quando essas dependências se fecham num ciclo, o conjunto comporta-se como uma unidade cooperativa, e este apoio mútuo cíclico é a realização mais simples da organização hipercíclica. É o acoplamento funcional, e não a fusão covalente, que mantém intacta a informação distribuída.
As moléculas semelhantes a tRNA como adaptadores para a química peptídica primitiva
As mesmas moléculas fornecem a ponte para a síntese de péptidos. Um RNA semelhante a tRNA pode atuar como adaptador ou mensageiro: transporta um aminoácido específico e pode entregá-lo a uma cadeia peptídica em crescimento sem qualquer aparato sofisticado. Como só é necessário processar um número limitado de aminoácidos suficientemente comuns, e porque a especificidade pode residir na própria sequência do RNA, torna-se concebível uma química primitiva semelhante à tradução, utilizando replicadores que já estavam presentes por outras razões.
A alternância de configuração hf → FH
Se um determinado tRNA se encontra na hf ou na FH configuração depende daquilo a que está ligado: um aminoácido ou uma cadeia peptídica. A transferência do aminoácido para a cadeia peptídica faz a molécula passar de hf para FH. O modelo explica bem como, na ausência de um aparato de tradução sofisticado, uma mensagem pode ser lida — o próprio estado do tRNA regista se o passo de transferência ocorreu, conferindo ao processo uma direção que um simples equilíbrio químico não proporcionaria.
Conclusão: moléculas pequenas, estruturas estáveis e acoplamento funcional cíclico — e não um grande genoma — são o que permite à informação primitiva sobreviver ao limiar de erro.
Unidades Replicativas PrimitivasQuatro replicadores de RNA semelhantes a tRNA estão dispostos num ciclo e ligados apenas por interações funcionais — carregamento de aminoácidos, transferência de péptidos (durante a qual o transportador passa da configuração hf para FH), suporte catalítico e replicação. Como as dependências se fecham sobre si mesmas, o conjunto comporta-se como uma unidade integrada, pelo que a informação distribuída sobrevive sem ser ligada num único grande genoma.