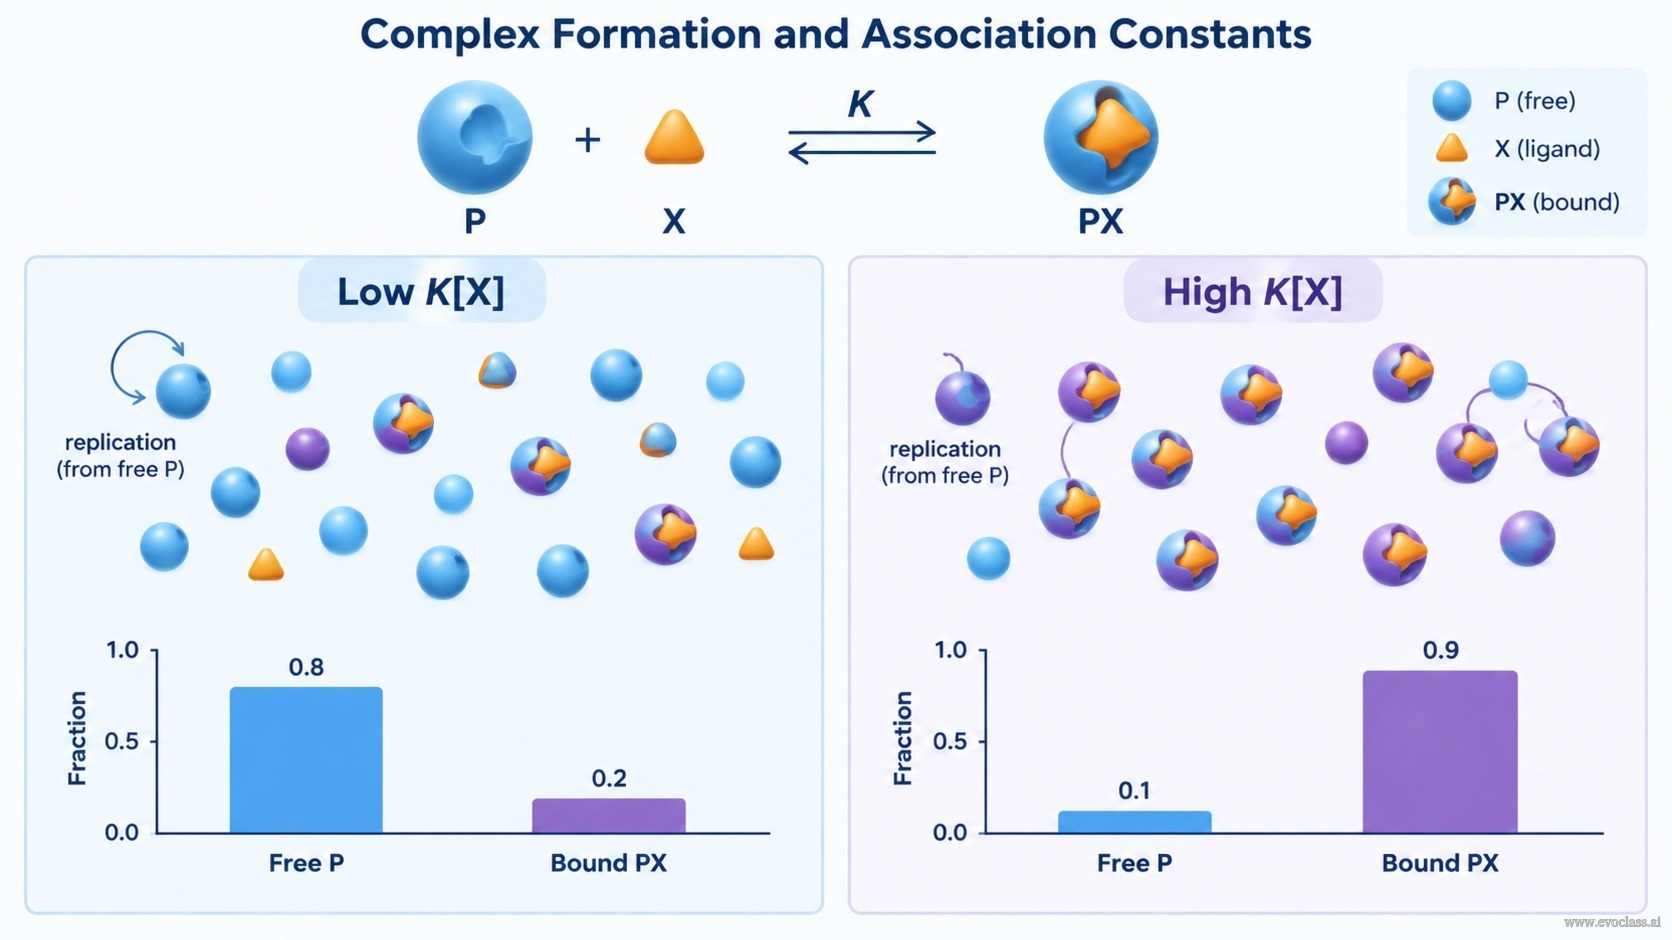
Nos hiperciclos acoplados à tradução, o molde de polinucleotídeo P não é apenas replicado, mas também traduzido num produto polipeptídico X. Estas duas espécies podem ligar-se reversivelmente para formar um complexo PX. A constante de associação K fixa a partição de equilíbrio entre espécies complexadas e livres e, portanto, controla quanto molde livre permanece disponível para a replicação.
A reação de ligação é reversível: P + X ⇌ PX. Por convenção, a constante de associação de equilíbrio é K = [PX] / ([P][X]). Um K maior favorece o complexo ligado PX, enquanto um K menor favorece os componentes livres. No equilíbrio, [PX]/[P] = K[X] e [PX]/[X] = K[P], pelo que K e as concentrações do parceiro livre determinam conjuntamente a razão entre complexo e forma livre.
Conservação de massa e molde livre
A conservação de massa exige que as concentrações totais se repartam em formas livres e ligadas: [P]tot = [P]livre + [PX] e [X]tot = [X]livre + [PX]. O passo de replicação depende da concentração de molde livre [P]livre, e não da concentração total de molde. A complexação reduz, portanto, o molde livre e pode diminuir o fluxo efetivo de replicação.
- A fração ligada aumenta com K e com X livre. Um K[X] baixo deixa a maior parte do molde livre, enquanto um K[X] elevado satura a formação de complexos.
- Como o X é produzido pela tradução, a formação de complexos acopla a síntese de polipeptídeos à disponibilidade de molde e, assim, à dinâmica de replicação hipercíclica.
No panorama mais amplo do hiperciclo, esta sequestração reversível desloca o sistema entre regimes. Quando K[X] é pequeno, a maior parte do molde está livre e o hiperciclo acoplado à tradução pode comportar-se como um hiperciclo elementar ou um ciclo catalítico simples. Quando K[X] é elevado, a complexação remove o molde livre da replicação e pode amortecer as oscilações, alterar as amplitudes do ciclo-limite ou empurrar o sistema para um regime de baixa concentração. Perto de uma bifurcação de Hopf, tais alterações no feedback efetivo podem também modificar a desaceleração crítica e a estabilidade do estado oscilatório.
Formação de Complexos e Constantes de AssociaçãoA reação P + X ⇌ PX com constante de associação K reparte o molde total em P livre e PX ligado. O gráfico de barras mostra que o aumento de K[X] desloca a fração ligada de um valor baixo para perto da saturação, deixando menos P livre para a replicação.