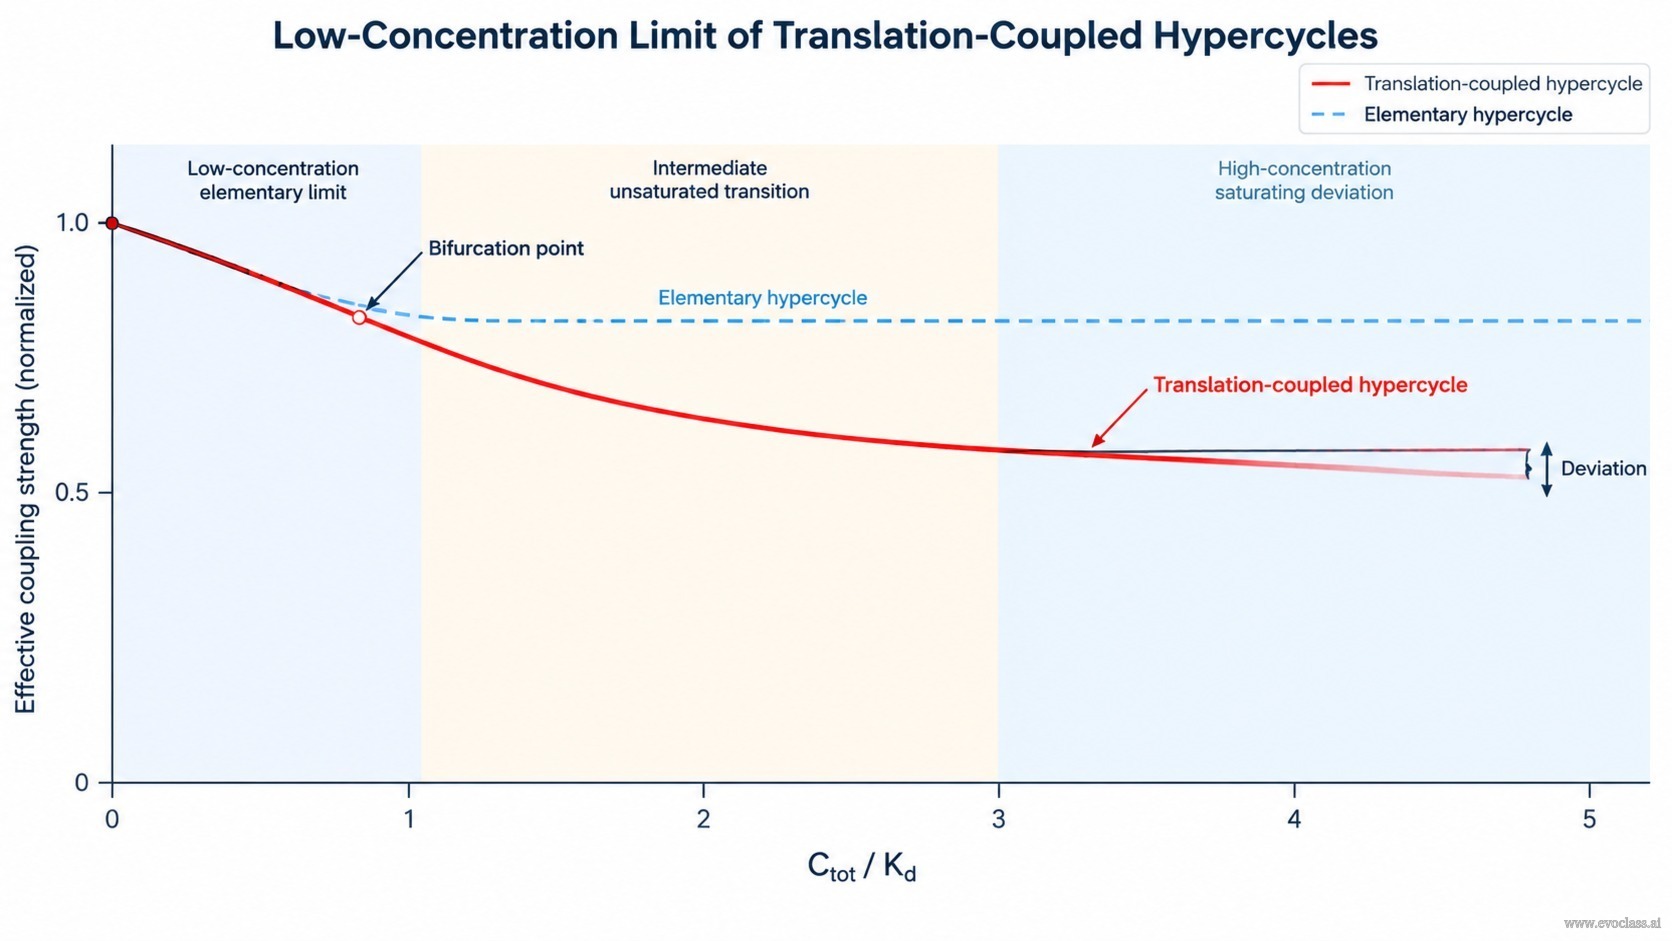
Em um hiperciclo acoplado à tradução, cada molde de RNA não é apenas replicado, mas também traduzido em um polipeptídeo que se liga de volta ao RNA por meio de formação reversível de complexo. Essa etapa de ligação, caracterizada por uma constante de dissociação
Por que a baixa concentração total simplifica a cinética
Quando a concentração total de RNA e polipeptídeo é muito menor que
- As espécies livres dominam. [complexo] é muito menor que [RNA] e [polipeptídeo], de modo que a dinâmica é conduzida pelas espécies livres, e não pelo material ligado.
- Concentração de complexo bilinear. [complexo] ≈ [RNA][polipeptídeo]/Kd, ou seja, proporcional ao produto das duas concentrações livres, em vez de a qualquer uma delas isoladamente.
- Fluxo catalítico de segunda ordem. Como o complexo é o catalisador, o fluxo mediado kcat[RNA][polipeptídeo]/Kd ≈ (kcat/Kd)[RNA][polipeptídeo] é um termo de ação de massa de segunda ordem — exatamente a forma de acoplamento usada por um hiperciclo elementar.
Constantes de velocidade efetivas e topologia preservada
A constante de associação e a constante catalítica entram apenas por meio de sua combinação, de modo que podem ser absorvidas em uma única constante de velocidade efetiva keff = kcat/Kd. O resultado é um hiperciclo elementar com coeficientes renormalizados. Crucialmente, a topologia de acoplamento cíclico é preservada: cada membro ainda catalisa a replicação do próximo membro ao longo do ciclo, e a tradução não introduz nenhum acoplamento dinâmico independente nesse limite — ela apenas reescala as velocidades. É por isso que as análises de ponto fixo, estabilidade, ciclo-limite e limiar de erro desenvolvidas para hiperciclos elementares se aplicam diretamente aos hiperciclos acoplados à tradução sempre que a condição de diluição é válida, o que é precisamente o que torna a redução tão útil para o raciocínio sobre seleção e limiar de erro.
Onde a redução deixa de ser válida
A redução é assintótica, não uma identidade. Ela permanece válida apenas enquanto a formação de complexo é não saturada. À medida que a concentração total sobe em direção a
Limite de Baixa Concentração de Hiperciclos Acoplados à TraduçãoForça de acoplamento efetiva de um hiperciclo acoplado à tradução em função da concentração total adimensional C_tot/K_d. Em valores baixos, a curva sólida do sistema acoplado à tradução se funde com a referência tracejada do hiperciclo elementar, pois complexos RNA-polipeptídeo escassos e não saturados fornecem um fluxo catalítico bilinear com constante efetiva k_cat/K_d; à medida que a concentração cresce, os complexos saturam e as duas curvas se separam.