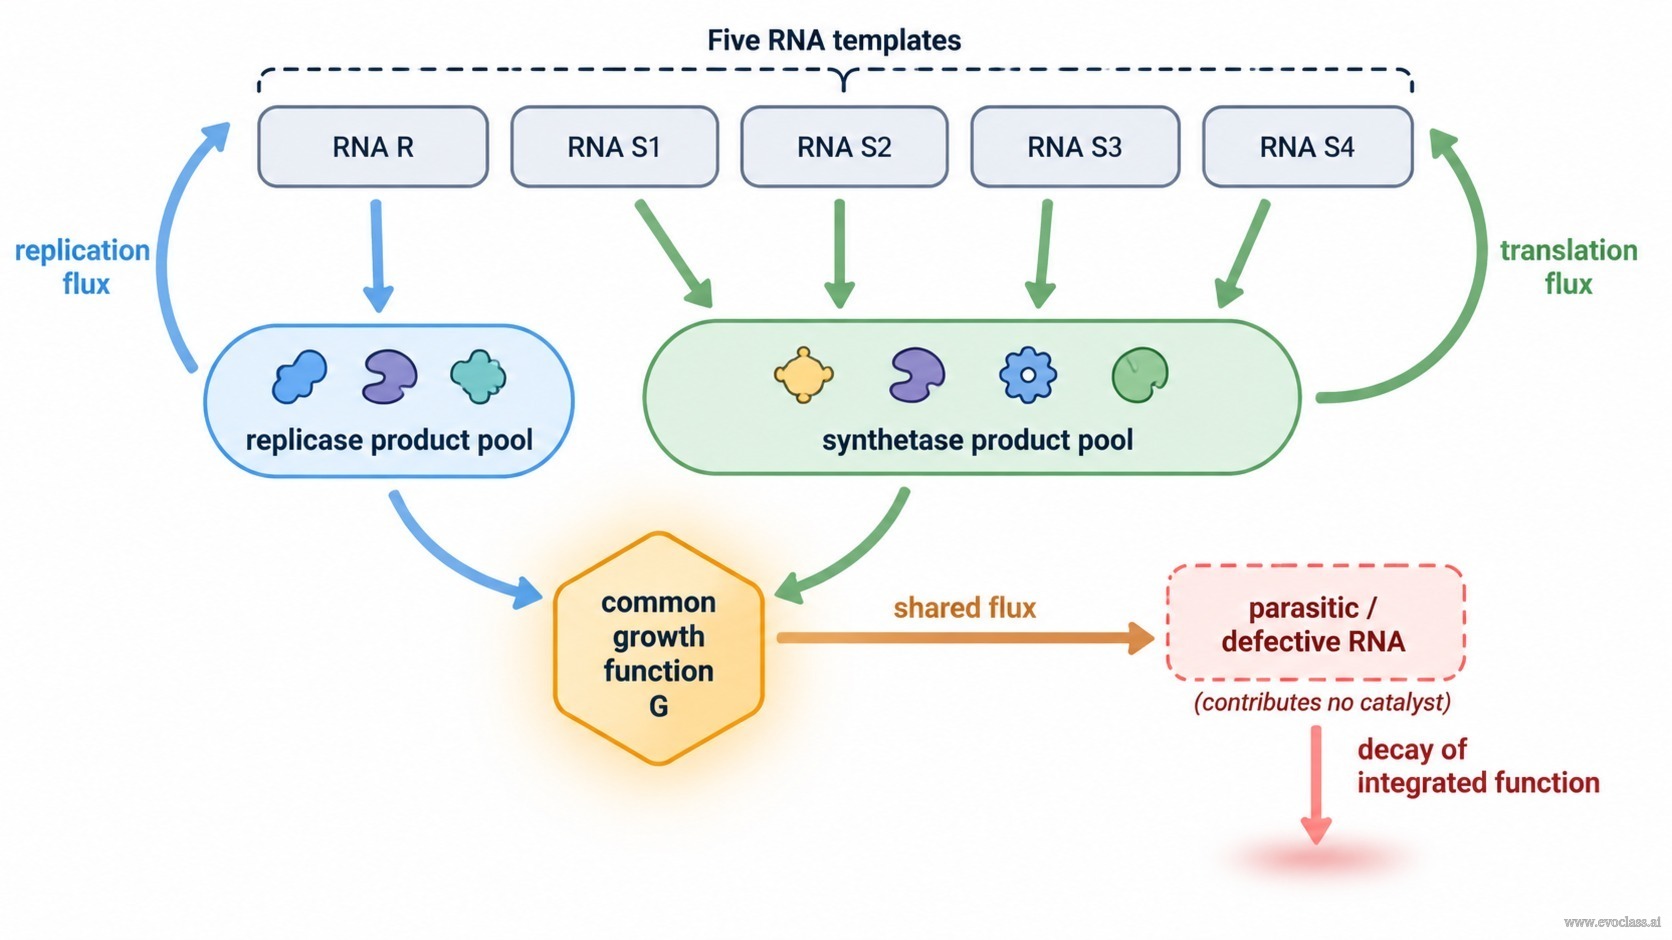
O esquema mínimo de replicase–sintetase é o menor hiperciclo acoplado à tradução que pode ser descrito como uma proposta molecular concreta: um conjunto de fitas de RNA no qual um molde (R) codifica uma replicase e quatro moldes (S1–S4) codificam sintetases. Deliberadamente, não se trata de um único RNA autorreplicante. Em vez disso, o esquema é um consórcio: a mesma população de RNA fornece tanto os moldes para a replicação quanto as mensagens para a tradução.
Ligação funcional: os produtos da replicase copiam todas as cinco fitas de RNA, enquanto os produtos das sintetases possibilitam a tradução dessas mesmas cinco fitas. Como a mesma população é simultaneamente molde e produto catalítico, a replicação e a tradução estão mutuamente acopladas, em vez de serem subsistemas separados. Esse acoplamento é o núcleo arquitetônico do hiperciclo mínimo.
Redução do crescimento compartilhado: quando os catalisadores atuam sobre todo o conjunto, os termos individuais de replicação e tradução não são privados da fita que codifica o catalisador. Eles se tornam termos de pool comum. Matematicamente, o sistema acoplado reduz-se a uma única função de crescimento comumG para todas as fitas. O crescimento líquido de cada fita pode ser escrito como uma contribuição coletiva mais um termo de composição relativa, mas a recompensa seletiva por produzir um catalisador é diluída, pois todos os membros usufruem do mesmo fluxo de crescimento.
Mecanismo de decaimento: como todos os membros usufruem do mesmo fluxo de crescimento, um mutante que reduz ou omite a produção catalítica ainda recebe o benefício compartilhado. Se essa variante se replica mais rapidamente — por exemplo, porque seu RNA é mais curto —, ela pode aumentar em frequência relativa sem contribuir com atividade de replicase ou sintetase. Isso dilui os catalisadores funcionais e permite que fitas parasitas ou degeneradas se acumulem. Portanto, o esquema mínimo por si só não é suficiente para uma integração darwiniana robusta.
Implicação de estabilidade: para suprimir o decaimento, é necessária organização adicional. A compartimentalização, a estrutura espacial ou o fechamento hipercíclico podem fazer a sobrevivência de uma fita depender de sua própria contribuição catalítica, por meio da co-localização de catalisadores, moldes e produtos. Essa organização mantém o equilíbrio estequiométrico e impede que o fluxo de crescimento comum seja capturado por variantes não produtivas.
Nuance analítica: no tratamento original (páginas 66–76), a redução do crescimento compartilhado é revelada por meio de uma transformação afim das variáveis populacionais. A transformação separa o modo de crescimento coletivo dos modos de composição relativa. O modo de crescimento comum descreve a expansão de todo o conjunto, enquanto os demais modos descrevem como a composição muda — incluindo a invasão de fitas parasitas ou defeituosas. Essa mudança de coordenadas esclarece por que o crescimento compartilhado não pode recompensar seletivamente a contribuição catalítica de cada componente.
Esquema Mínimo de Replicase e SintetaseCinco moldes de RNA — R codificando uma replicase e S 1 –S 4 codificando sintetases — alimentam os pools de produtos de replicase e sintetase. Ambos os pools convergem para uma função de crescimento comum G. Um RNA parasita tracejado recebe o mesmo fluxo, mas não contribui com catalisador, causando o decaimento da função integrada.