Um hiperciclo é um conjunto fechado de replicadores que catalisam a replicação uns dos outros. Como o ciclo é definido pela mútua catálise entre várias sequências distintas, ele não pode nuclear a partir de uma única cópia-molde: uma molécula não contém toda a função cíclica, e sua primeira cópia não tem parceiros catalíticos com os quais fechar um ciclo. A organização hipercíclica, portanto, não pode surgir abruptamente; ela precisa ser montada gradualmente no nível de uma população, e o berço mais plausível para essa montagem é uma quase-espécie rica em GC.
Por que um único molde não pode iniciar um ciclo
Um replicador autocatalítico é autossuficiente: uma única fita que serve de molde para sua própria cópia cresce exponencialmente a partir de uma molécula, porque a molécula e seu produto exercem a mesma função. Um hiperciclo não é desse tipo. Sua propriedade definidora é um ciclo fechado de suporte catalítico no qual o membro i potencializa a replicação do membro j, que potencializa k, e assim por diante, até que o ciclo retorne a i. Remova qualquer membro isolado e os membros restantes deixam de regenerá-lo. Consequentemente, a primeira cópia de qualquer membro isolado é um beco sem saída: ela não tem parceiros complementares, e não existe um ciclo catalítico fechado para amplificá-la preferencialmente.
Uma quase-espécie rica em GC fornece a matéria-prima
Uma quase-espécie não é uma única sequência, mas uma nuvem de sequências relacionadas, conectadas mutacionalmente e distribuídas em torno de uma sequência dominante, semelhante a uma sequência-mestre. Em um conjunto rico em GC, essa nuvem é excepcionalmente bem abastecida. Cada par G–C adicional contribui com uma terceira ligação de hidrogênio, de modo que hastes ricas em GC se desnaturam a temperaturas mais altas, dobram-se de forma mais confiável e toleram mais mutações pontuais antes que sua estrutura secundária colapse. O reservatório, portanto, combina de uma só vez duas coisas que o problema de nucleação exige: uma alta diversidade local de variantes com alças, hastes e geometria de superfície alteradas, e estabilidade estrutural suficiente para que as variantes individuais permaneçam funcionais por tempo suficiente para serem testadas pela seleção.
A mutação explora o acoplamento, a seleção o mantém
A exploração mutacional é o que de fato percorre o espaço das interações. Uma substituição pontual pode remodelar um grampo, expor uma nova superfície de ligação ou recrutar um centro catalítico dependente de íons metálicos, alterando o coeficiente de acoplamento fraco
Da organização em quase-espécie à organização hipercíclica
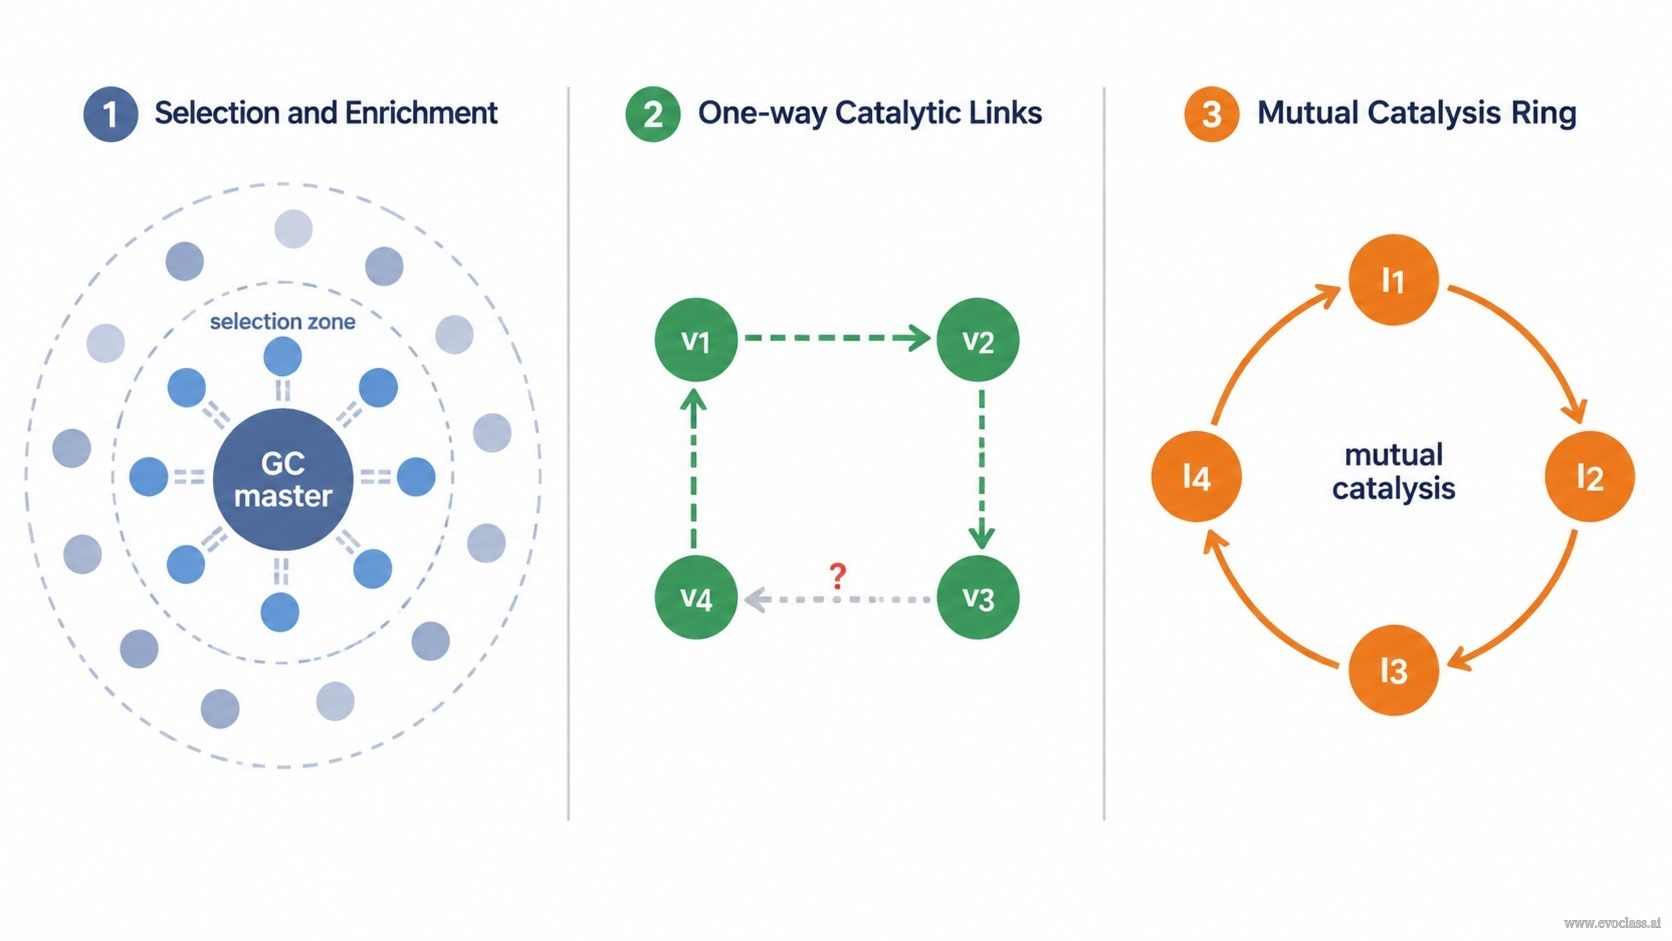
À medida que as ligações se acumulam, a distribuição dos mutantes muda de forma. A diversidade deixa de se espalhar em torno de uma única sequência-mestre; ela se condensa em direção a um pequeno subconjunto de moldes mutuamente catalíticos, e o fechamento do anel só ocorre quando existem ligações suficientes para que a rede seja fechada, e não meramente aberta ou ramificada. Antes do fechamento, o conjunto comporta-se como uma quase-espécie com algumas variantes correlacionadas. Após o fechamento, o crescimento é cooperativo e superaditivo: o ciclo se multiplica como uma unidade e, como cada membro alimenta o seguinte, o conjunto acoplado pode superar em crescimento uma quase-espécie isolada competindo pelos mesmos monômeros e pela mesma replicase. É assim que um hiperciclo poderia surgir sem nenhum genoma multi-gênico pré-formado — por recrutamento e integração de genes mutantes já presentes no reservatório rico em GC. A análise de ponto fixo subjacente ao caso de dois membros expressa a mesma ideia na forma de coeficientes de taxa: se o par termina em exclusão competitiva, na seleção de um dos membros ou em coexistência hipercíclica estável depende apenas das magnitudes relativas de autoaprimoramento e aprimoramento mútuo, e o critério se generaliza para ciclos de três ou de n membros.
Quando a rota falha
- Fidelidade de replicação deve permanecer acima do limiar de erro. Se a taxa de mutação for alta demais, o reservatório se dissolve em uma nuvem difusa na qual nenhuma variante persiste por tempo suficiente para estabelecer uma ligação.
- Compatibilidade funcional é importante: os membros não devem interferir destrutivamente no dobramento ou na catálise uns dos outros; caso contrário, as ligações que se acumulam se anulam em vez de se reforçarem.
- Carga de parasitas deve permanecer baixa. Um molde egoísta que é replicado com eficiência graças ao ciclo emergente, mas não catalisa nada em troca, drena os recursos compartilhados e pode desestabilizar a rede antes que ela se feche.
Esboço resolvido. Em um conjunto de RNA rico em GC, uma sequência dominante do tipo GGC/GCC e seus mutantes formam uma quase-espécie. Um mutante pode auxiliar fracamente a replicação de uma sequência vizinha, e a seleção preserva ambos os parceiros porque seu rendimento conjunto supera o que qualquer um deles alcança isoladamente. Mutações adicionais geram auxílio recíproco, o ramo que faltava é preenchido, e um ciclo de dois membros ou maior se fecha. Uma vez fechado, o crescimento hipercíclico supera em competição a quase-espécie isolada que lhe deu origem.
Surgimento a partir de uma Quase-Espécie Rica em GCTrês estágios são lidos da esquerda para a direita. Primeiro, uma sequência-mestre rica em GC ocupa o centro de uma nuvem mutacional, com uma zona interna de seleção marcando as variantes que são progressivamente enriquecidas, enquanto pares GC estáveis protegem suas estruturas dobradas. Segundo, as variantes sobreviventes são unidas por ligações catalíticas fracas e unidirecionais, e uma conexão ainda está pontilhada porque a rede ainda não está fechada. Terceiro, essas ligações se tornam recíprocas e a rede se fecha em um anel hipercíclico no qual cada membro catalisa o seguinte, de modo que o conjunto como um todo pode superar em crescimento uma quase-espécie isolada.