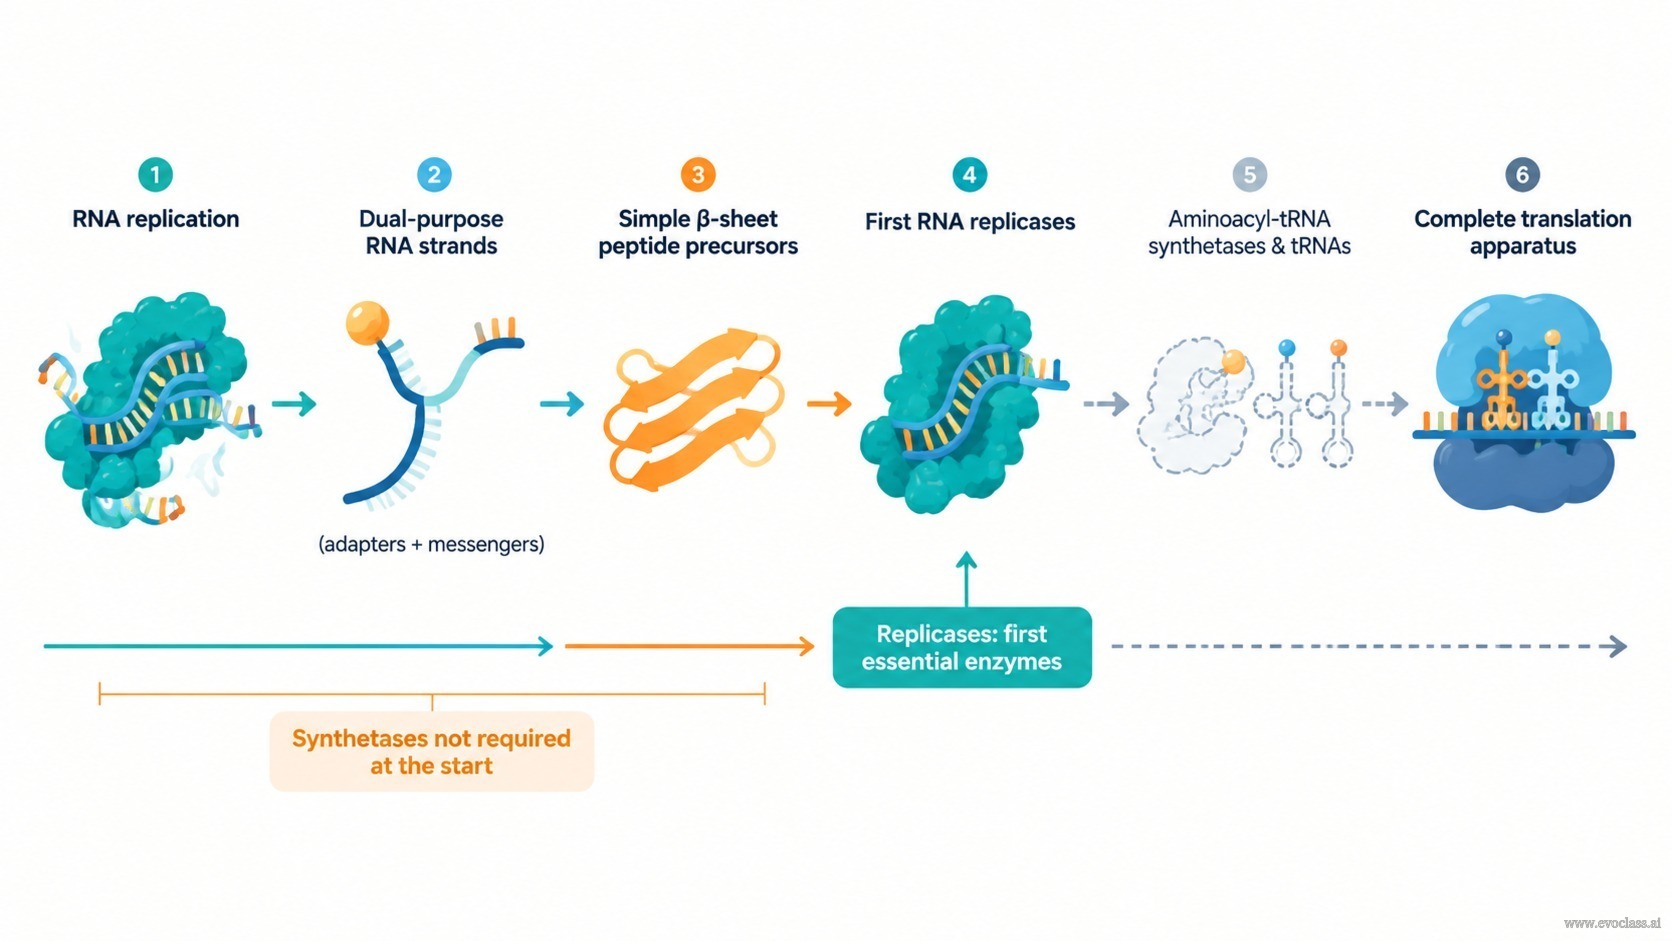
A etapa final desta lição faz uma pergunta deliberadamente incisiva: o que já precisa existir para que a síntese de peptídeos e o armazenamento de informação estejam acoplados? Lendo com atenção, o material de origem não responde com "um aparato de tradução simplificado". A resposta é, antes, que o sistema mais antigo era um sistema catalítico hereditário mínimo, no qual fitas de RNA atuavam simultaneamente como mensageiras e como adaptadoras, e no qual os primeiros catalisadores genuinamente indispensáveis eram replicases — não as aminoacil-tRNA sintetases.
Acoplamento funcional antes de um aparato completo
O acoplamento funcional significa que um adaptador carregando um aminoácido e um mensageiro carregando o molde são reconhecidos pela mesma maquinaria primitiva. Se uma mesma fita de RNA puder se dobrar em uma conformação semelhante à de adaptador e também atuar como molde, o número de componentes independentes necessários para a síntese de peptídeos semelhante à tradução cai drasticamente. Em tal esquema, a formação da ligação peptídica torna-se possível antes de um ribossomo, antes de um conjunto completo de tRNAs e antes de qualquer sintetase existir.
- Fitas de dupla função. Um único RNA pode combinar o papel de mensageiro (molde) e o papel de adaptador, que é exatamente o que um sistema de tradução mínimo inicial precisa.
- Carregamento direto. A afinidade RNA–aminoácido e a transferência de peptídeos livre de ribossomo podem fornecer a etapa de ativação inicial que as sintetases realizam nas células modernas.
- Flexibilidade conformacional. A flexibilidade revelada pelos alinhamentos de sequências de tRNA é precisamente o que permite que uma única fita ocupe dois papéis funcionais ao mesmo tempo.
- Catalisadores simples. Os primeiros peptídeos funcionalmente ativos eram, muito provavelmente, folhas β curtas ou pequenos peptídeos catalíticos, e não enzimas globulares modernas com bolsões profundos de sítio ativo.
Sintetases e tRNAs separados como refinamentos posteriores
Se o carregamento inicial e a função de adaptador puderem ambos ser cumpridos sem enzimas dedicadas, então as aminoacil-tRNA sintetases e as moléculas de tRNA independentes tornam-se controle de qualidade componentes, e não pré-requisitos. Elas estreitam a correspondência entre códon e aminoácido e aumentam a fidelidade traducional. Portanto, são melhor compreendidas como refinamentos que surgem quando um sistema acoplado já está se replicando e já está sob seleção — e não como as condições que tornam o acoplamento possível em primeiro lugar.
Replicases: as primeiras enzimas essenciais
O acoplamento por si só não é suficiente. Por mais elegante que seja um ciclo semelhante à tradução, ele desaparece com a morte de suas moléculas, a menos que a informação que o codifica possa ser copiada. Este é o argumento decisivo do slide: a replicação é o que converte um acoplamento químico pontual em uma função hereditária e selecionável. As replicases de RNA — tendo a síntese de novo do midivariante Qβ como o análogo experimental de tal sistema mínimo de RNA centrado em replicase — fornecem exatamente essa capacidade. Uma vez que a replicação e a catálise peptídica estejam funcionalmente ligadas, as primeiras proteínas genuinamente enzimáticas podem emergir e ser retidas.
Os limites de fidelidade reforçam a mesma conclusão. Um aparato de tradução completo exige muitos componentes que interagem com precisão; às taxas de erro esperadas de uma replicase inicial, um aparato tão grande não poderia ser mantido contra o limiar de erro, enquanto uma quasi-espécie curta de RNA copiada por uma replicase consegue. O esquema mínimo que prioriza a replicase não é, portanto, uma simplificação por conveniência, mas uma consequência direta dos limites de fidelidade da era. Sintetases, tRNAs separados e a tradução completa aparecem depois como refinamentos que aumentam a fidelidade, sobrepostos a um núcleo já hereditário.
Linha do Tempo da Célula MínimaUm percurso da esquerda para a direita mostrando a replicação do RNA, fitas de RNA de dupla função que atuam tanto como adaptadores quanto como mensageiros, precursores peptídicos simples em folha β e as primeiras replicases destacadas como essenciais, seguidas pelas sintetases posteriores e tRNAs separados e, por fim, o aparato de tradução completo. A conclusão causal é uma questão de ordenação: o acoplamento funcional pode preceder um aparato completo, mas nada no sistema é herdado sem uma replicase.