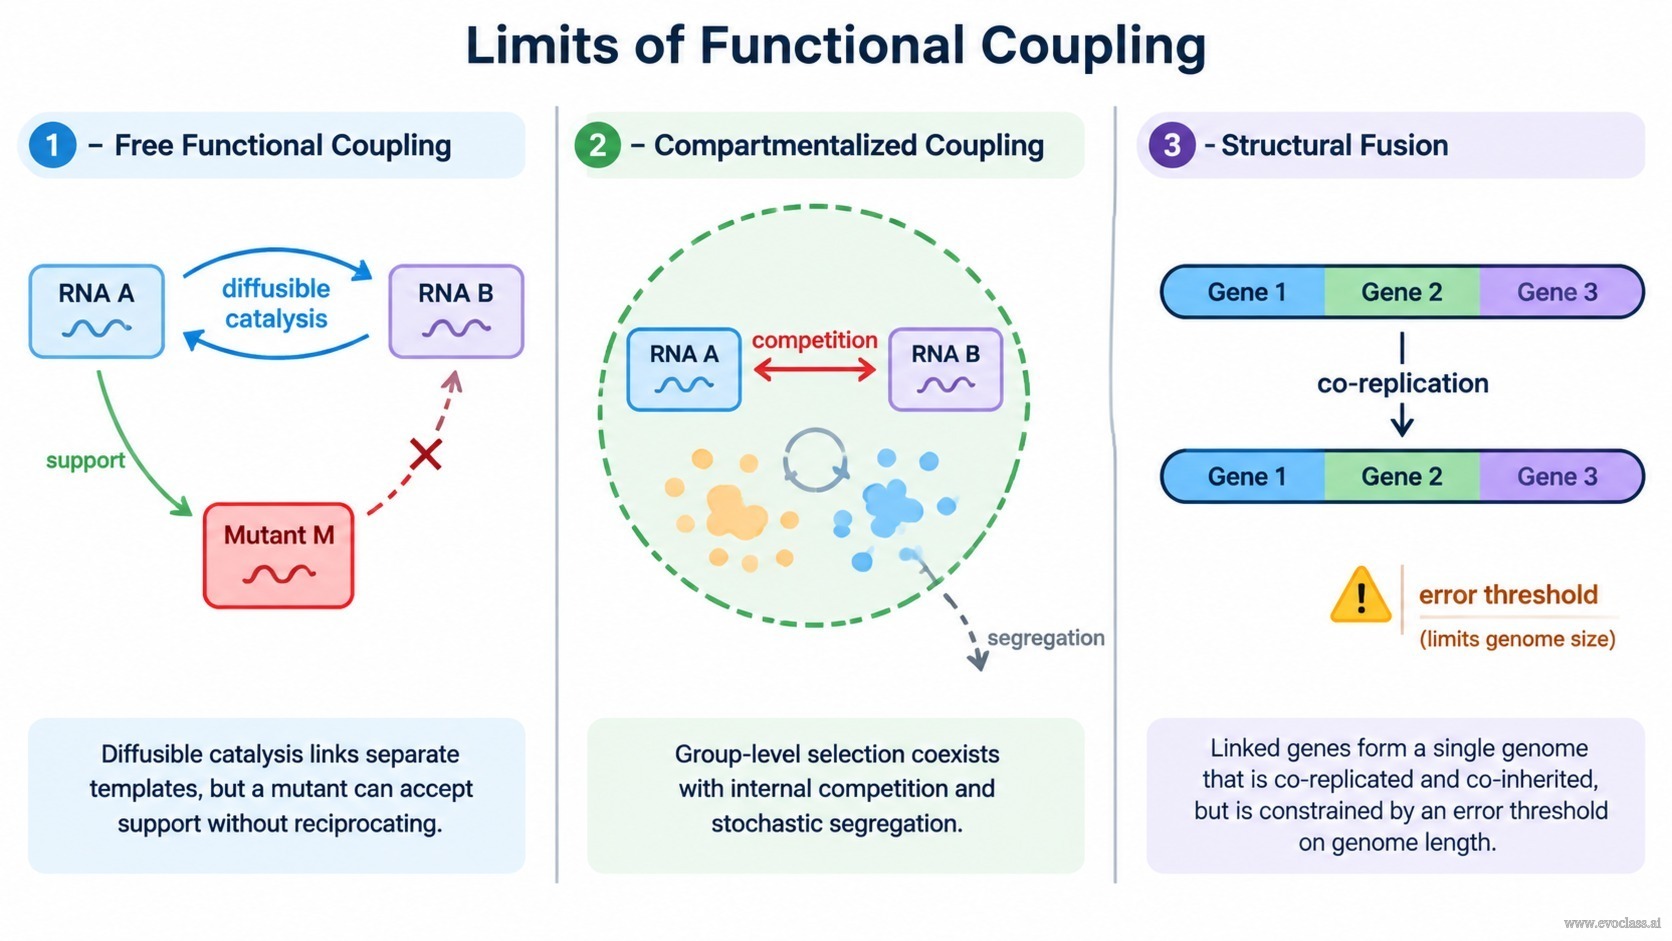
O hiperciclo inicial obtém sua vantagem por meio do acoplamento funcional: cada replicador catalisa a replicação de um parceiro, e o parceiro retribui o favor, de modo que os membros se apoiam mutuamente sem estarem fisicamente unidos. É difícil imaginar a própria tradução começando de outra forma — um conjunto de moléculas cooperando por meio de produtos difusíveis, e não por meio de um genoma compartilhado.
Cooperação Não É Integração
Um sistema mensageiro estável exigiria que os parceiros cooperantes fossem herdados juntos como uma unidade. O acoplamento funcional não oferece isso. As moléculas acopladas permanecem moldes independentes, cada um sujeito à sua própria replicação, mutação, difusão e diluição, de modo que os benefícios da cooperação não são transmitidos de forma confiável. Quatro limitações decorrem diretamente disso.
- Unidades competitivas separadas. Cada membro tem sua própria taxa de replicação e taxa de mutação. Uma variante que se copia mais rápido, ou que sofre mutação para uma forma mais enxuta, se espalha por seus próprios méritos, independentemente do grupo ao qual pertence.
- Difusão e diluição. Os produtos catalíticos precisam se difundir para alcançar seus parceiros; essa mesma difusão, e a renovação do meio circundante, também remove membros do conjunto. A associação é estatística, nunca garantida.
- Bens públicos exploráveis. A catálise é um benefício compartilhado. Um mutante que aceita o apoio, mas não retribui, obtém a vantagem do grupo sem pagar seu custo, e pode invadir o sistema acoplado.
- Ausência de co-herança. A replicação de um molde não diz nada sobre se seus parceiros se replicam. Os parceiros podem ser perdidos estocasticamente, de modo que a função conjunta não é hereditária como um conjunto.
Dois Caminhos Rumo à Estabilidade
Compartimentação. Enclausurar o conjunto acoplado em uma vesícula ou protocélula mantém as moléculas espacialmente associadas. Como o conteúdo viaja junto, a seleção pode atuar sobre o grupo como um pacote, em vez de sobre moléculas isoladas, e a concentração local de produtos catalíticos aumenta. A compartimentação é um avanço genuíno, mas não é uma cura: a competição interna por recursos compartilhados e a segregação estocástica de moldes ainda ocorrem dentro do compartimento.
Integração estrutural. Fundir os genes em um único polinucleotídeo ou cromossomo liga fisicamente sua replicação e herança. A replicação agora copia todo o conjunto de uma só vez, o genoma passa a ser a unidade de seleção, e os problemas de difusão e de trapaça são amplamente eliminados, porque os parceiros não podem mais ser herdados separadamente.
O Trade-off e a Etapa Não Resolvida
A integração estrutural não é gratuita. Combinar muitos genes em uma única molécula amplia o genoma, e um genoma mais longo acumula erros de replicação com mais facilidade, de modo que esbarra no limite do limiar de erro sobre quanta informação estável ele pode carregar. A compartimentação e a integração, portanto, resolvem os problemas de trapaça e segregação, ao mesmo tempo que introduzem novas restrições próprias.
Isso deixa a etapa central não resolvida: o acoplamento funcional é um requisito plausível para o início da tradução, mas acabou sendo substituído pela integração estrutural completa, já que até mesmo os genomas celulares conhecidos mais primitivos são unidades estruturais. Explicar exatamente como a transição do acoplamento para a integração foi alcançada — e quais organizações intermediárias a tornaram possível — permanece um problema em aberto.
Limites do Acoplamento FuncionalTrês regimes de cooperação molecular comparados lado a lado: acoplamento funcional livre, no qual a catálise difusível liga moldes separados, mas um mutante pode aceitar apoio sem retribuir; acoplamento compartimentado dentro de uma vesícula, onde a seleção em nível de grupo coexiste com a competição interna e a segregação estocástica; e fusão estrutural completa, na qual genes ligados formam um único genoma que é co-replicado e co-herdado, mas limitado por um limiar de erro quanto ao comprimento do genoma.