A integração de replicadores moleculares competitivos enfrenta uma restrição fundamental: o limiar de erro. Uma única unidade replicativa longa — produzida, por exemplo, pela ligação de vários genes num só genoma — acumula demasiadas mutações por ciclo de replicação. Assim que a taxa de mutação excede o limiar, a sequência mestra perde-se e a informação específica codificada nessa unidade degrada-se. Por isso, a integração não pode ser alcançada apenas criando uma molécula mais longa; a unidade integrada tem de permanecer selecionável face à sua própria distribuição de mutantes.
Foram propostas três vias alternativas para integrar moléculas competitivas sem violar a relação de limiar para
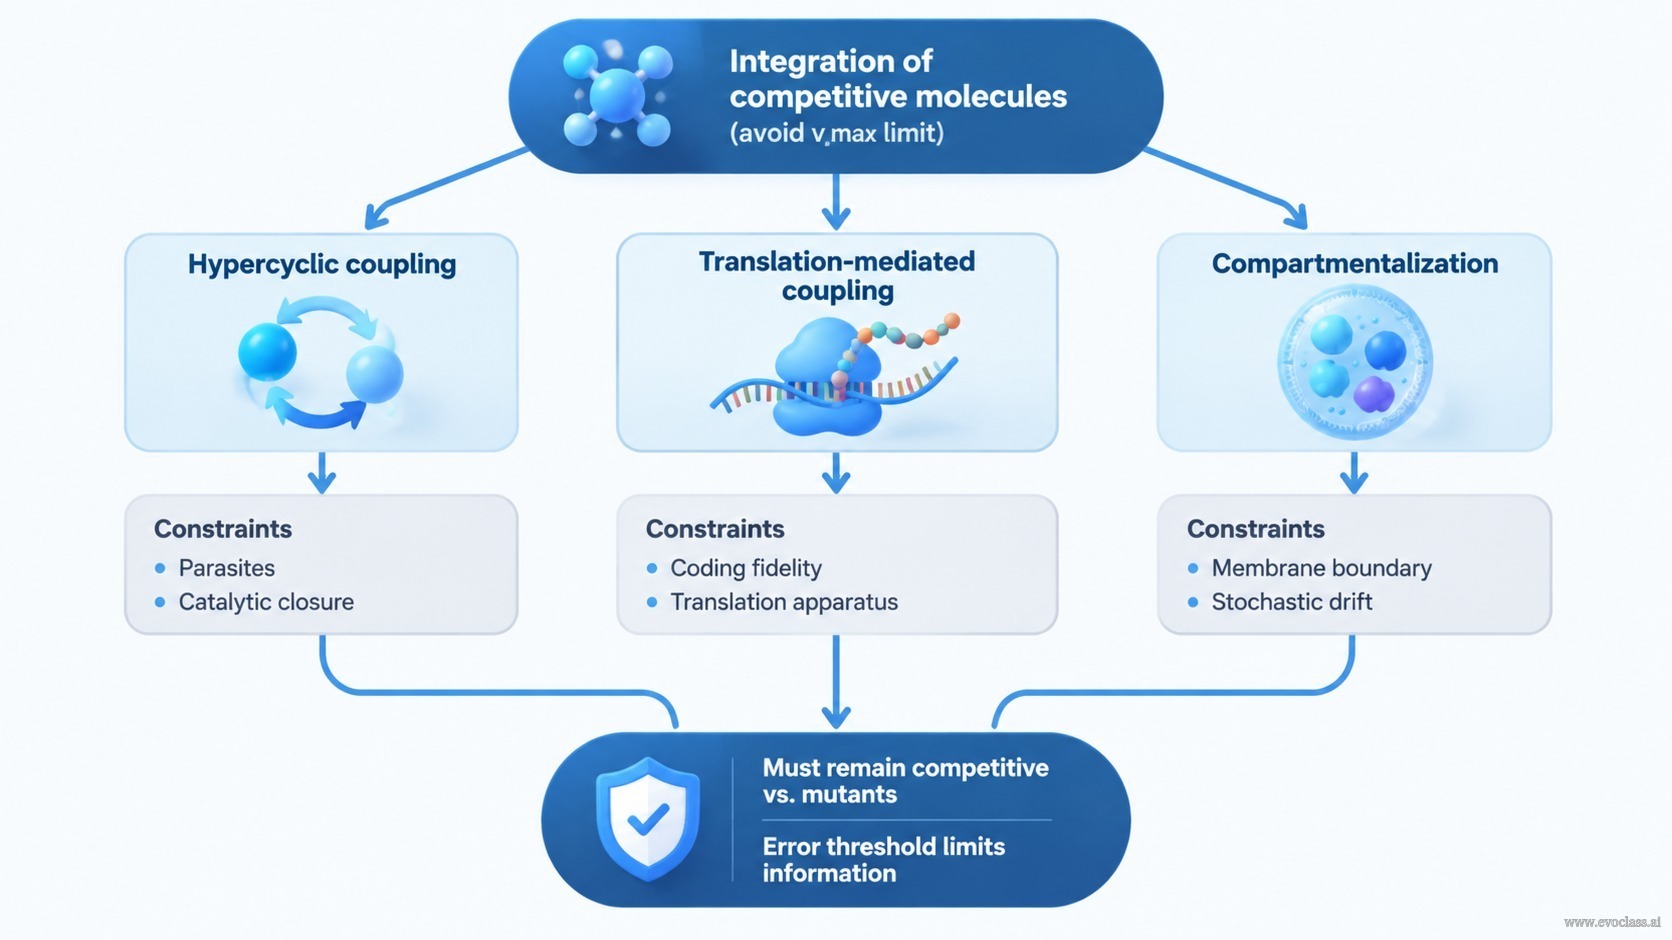
- Acoplamento hipercíclico: os genes são ligados através de um ciclo catalítico fechado, pelo que a replicação de cada gene depende dos produtos dos restantes. Isto cria uma unidade de seleção ao nível do hiperciclo, mas permanece vulnerável a mutantes parasitas e exige fecho catalítico.
- Acoplamento mediado pela tradução: os genes codificam proteínas funcionalmente ativas (por exemplo, replicases ou sintetases) que catalisam a replicação ou a tradução. Isto permite a divisão do trabalho e pode integrar mais informação do que um único genoma de RNA, mas requer um aparato de codificação e enfrenta restrições de fidelidade.
- Compartimentação: os genes cooperativos são encerrados num compartimento comum (uma protocélula), pelo que a seleção atua sobre o compartimento como um todo. Isto pode estabilizar a integração e limitar a exploração por parasitas, mas introduz manutenção da fronteira, efeitos estocásticos e restrições de replicação coordenada.
Estas vias não são mutuamente exclusivas. A evolução inicial pode ter combinado organização hipercíclica, tradução e compartimentação para alcançar genomas integrados. A restrição comum é que cada via tem de permanecer dentro do limiar de erro e gerir a carga de mutantes: a integração é um problema seletivo, não apenas uma associação física.
Três Vias para a IntegraçãoO diagrama mostra um problema central de integração que se ramifica em acoplamento hipercíclico, acoplamento mediado pela tradução e compartimentação. As setas de cada via conduzem a restrições partilhadas: permanecer competitivo face aos mutantes e manter-se dentro do limiar de erro.