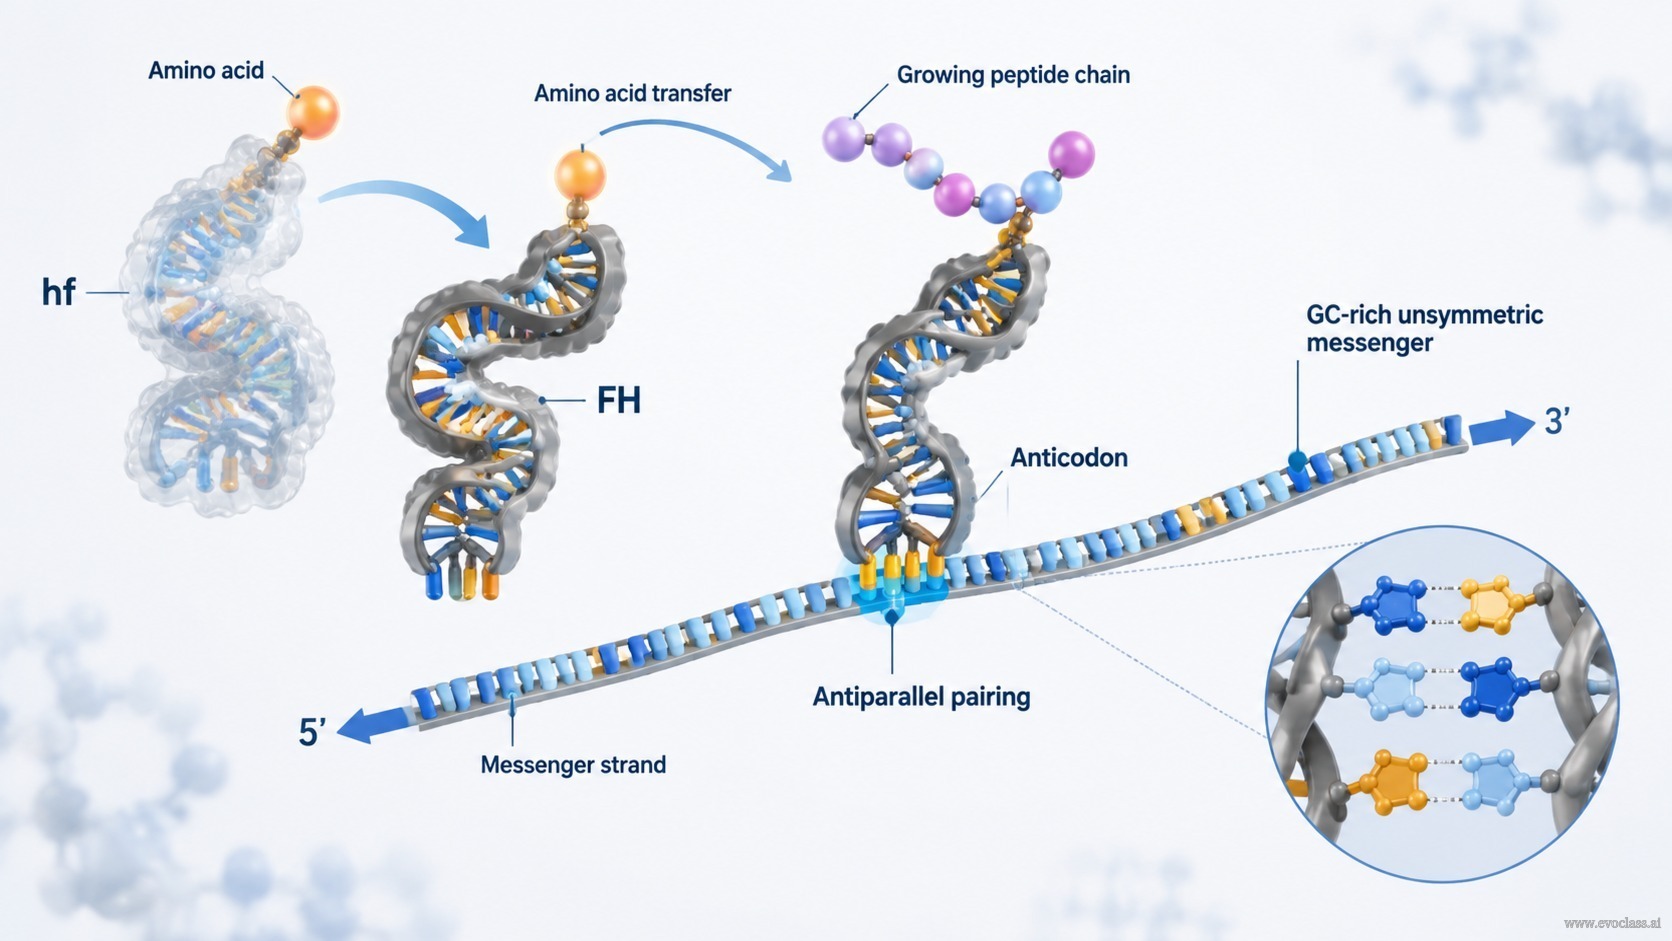
A tradução nos primórdios da vida não precisou ter começado com um ribossomo completamente formado. O modelo propõe que adaptadores simples semelhantes a tRNA poderiam ler um mensageiro por pareamento complementar e antiparalelo, desde que houvesse suporte catalítico para a formação de ligações peptídicas. A configuração do adaptador depende de sua carga: ele adota a configuração hf quando carrega um aminoácido e a configuração FH quando carrega uma cadeia peptídica. A transferência do aminoácido para a cadeia peptídica em crescimento faz o adaptador passar de hf para FH (cf. Fig. 49).
Como o alinhamento adaptador–mensageiro é antiparalelo, uma mensagem pode ser lida sem um aparato de tradução sofisticado. A escolha de padrões iniciais ricos em GC é ditada por quatro argumentos, incluindo a estabilidade da interação adaptador–mensageiro e a fidelidade da replicação, ambos favorecendo combinações de GC para começar, e a leitura sem vírgulas na tradução, que exige um padrão de GC assimétrico. Assim, padrões de mensageiro sem vírgulas surgem de um padrão de GC assimétrico que permite a leitura sem separadores ou uma maquinaria de tradução complexa.
Pontos mecanísticos principais
- Suporte catalítico ainda é necessário para as funções de tradução, mas a tradução inicial pode usar adaptadores simples em vez de um ribossomo completo.
- Conformação dependente da carga: a configuração do tRNA depende de ele carregar um aminoácido ou uma cadeia peptídica. A transferência faz hf passar para FH.
- Pareamento antiparalelo: o alinhamento complementar adaptador–mensageiro é antiparalelo, permitindo a leitura sem um aparato sofisticado.
- Padrões ricos em GC e assimétricos: a estabilidade e a fidelidade da replicação favorecem o GC; a leitura sem vírgulas exige GC assimétrico para evitar a ambiguidade de quadros sobrepostos.
Leitura Adaptador–MensageiroEste diagrama mostra adaptadores semelhantes a tRNA nas configurações hf e FH, o pareamento complementar antiparalelo com um mensageiro assimétrico rico em GC, e a transferência do aminoácido que faz hf passar para FH, permitindo a leitura sem vírgulas sem um ribossomo sofisticado.