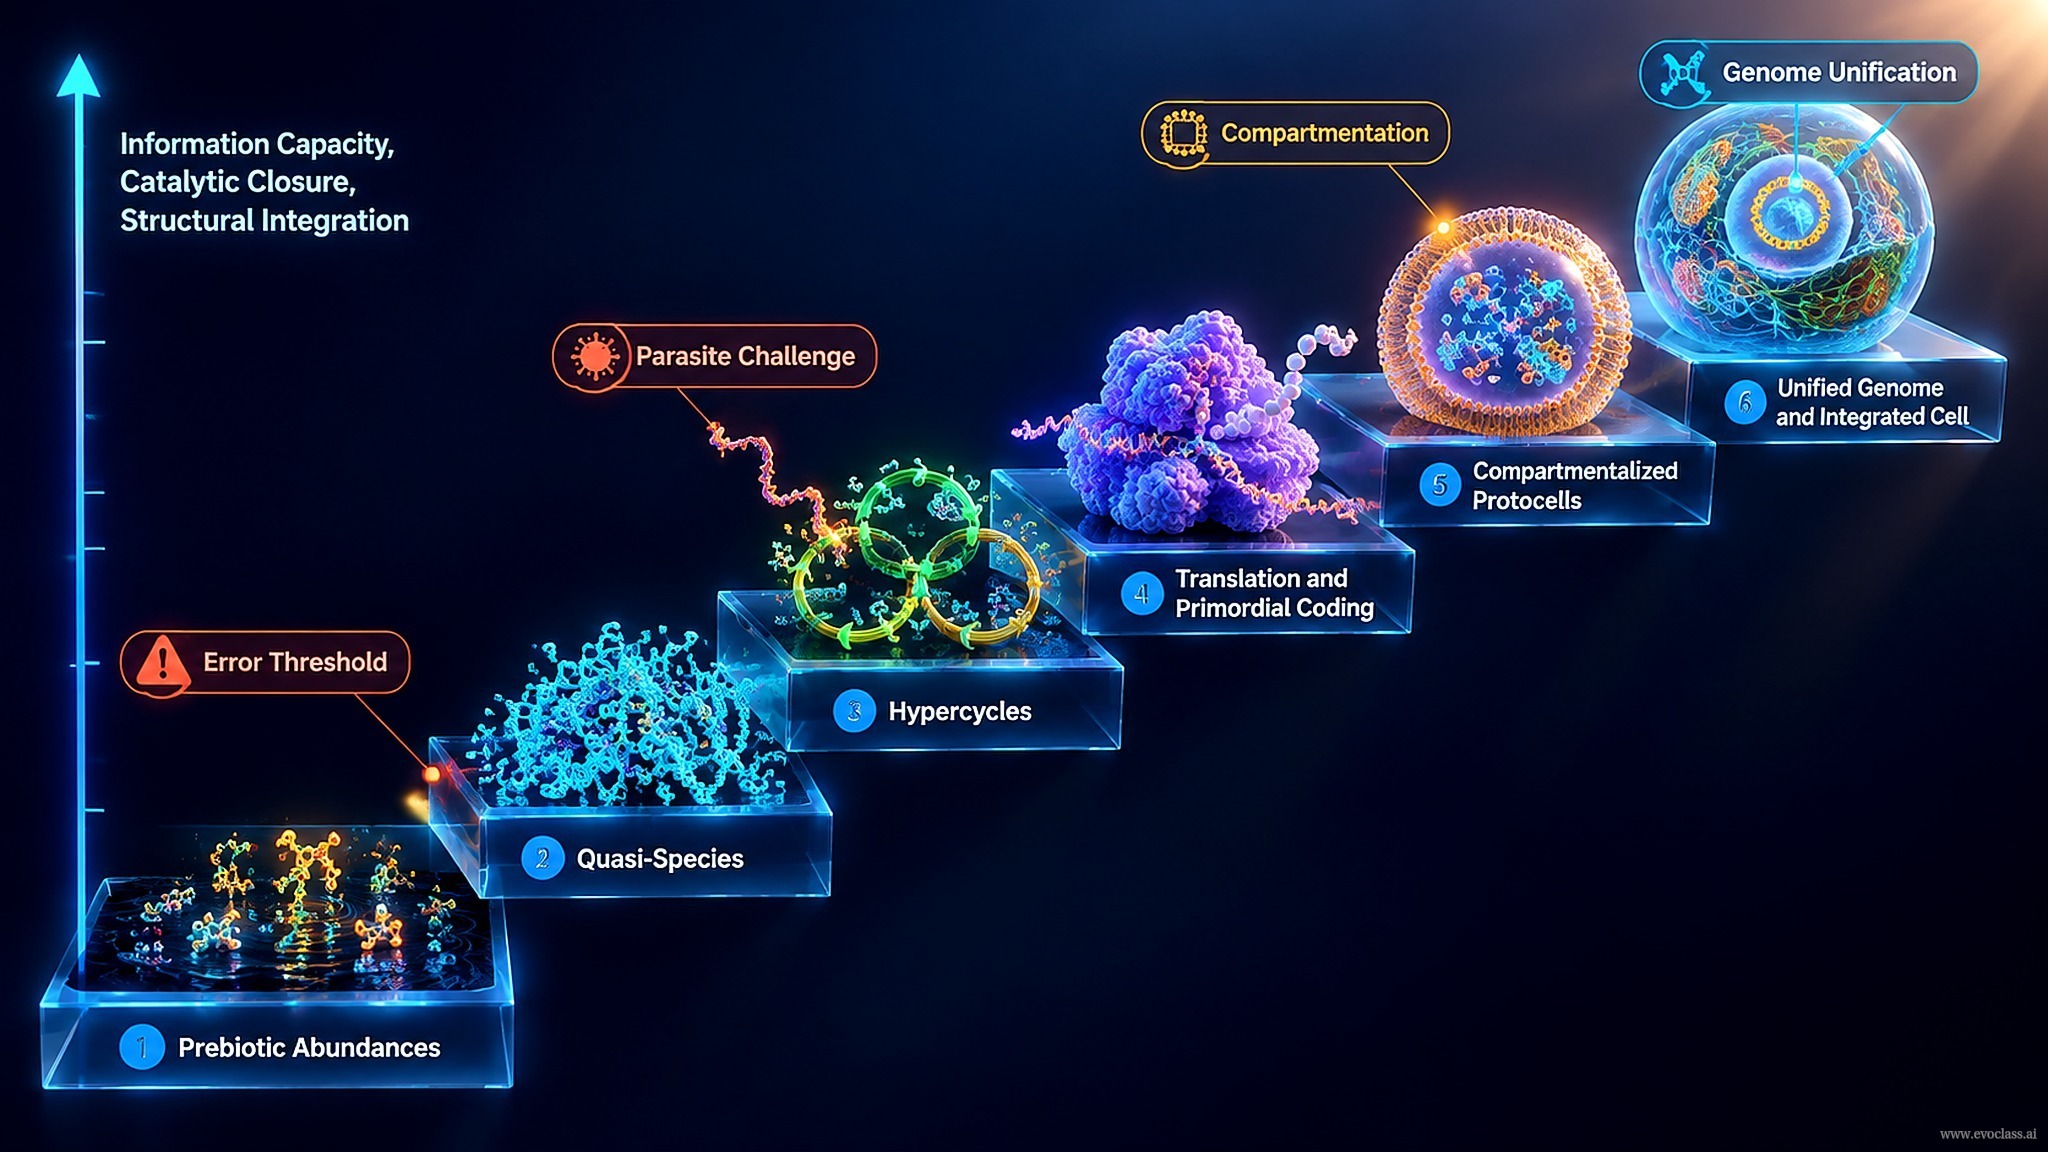
A célula integrada não é uma origem separada da vida, mas o ponto final de uma extensão contínua e faseada da auto-organização molecular. Cada etapa resolve um problema específico de informação, catálise ou parasitismo, enquanto a seleção darwiniana continua a atuar ao nível molecular.
- Etapa 1 — Matéria-prima pré-biótica: a síntese pré-biótica produz aminoácidos e polinucleotídeos com abundâncias não aleatórias; enviesamentos de composição, como a replicação rica em GC, restringem os primeiros replicadores.
- Etapa 2 — Quase-espécies: a mutação e a seleção geram populações de quase-espécies cujo conteúdo informacional estável é limitado pela fidelidade de replicação e pelo limiar de erro; q̄m, σm e vm preveem a perda ou a manutenção da informação.
- Etapa 3 — Integração hipercíclica: acoplamentos catalíticos, autocatalíticos e hipercíclicos ligam os replicadores em ciclos cooperativos com crescimento coerente; parasitas, carga mutante e falha de nucleação definem os limites da organização hipercíclica.
- Etapa 4 — Tradução e codificação primordial: adaptadores/mensageiros de RNA, quadros sem vírgulas, codões iniciais GGC/GCC e transferência de péptidos sem ribossomas estendem os hiperciclos a polipéptidos funcionais codificados.
- Etapa 5 — Compartimentação: os hiperciclos compartimentados e as protocélulas localizam a replicação e a tradução acopladas, suprimem a exploração parasita e criam unidades de seleção de nível superior em condições-limite realistas.
- Etapa 6 — Unificação do genoma: vários replicadores hipercíclicos são consolidados num genoma integrado; a revisão do DNA, a recombinação e uma maior fidelidade deslocam o limiar de erro e permitem células integradas maiores.
Princípio de continuidade: as transições não são origens separadas, mas aumentos sucessivos de fecho catalítico, capacidade de informação e integração estrutural; modos de falha como a catástrofe de erro, a exploração parasita e a falha de função conjunta marcam fronteiras que as etapas posteriores têm de ultrapassar.
Síntese formal com a teoria da seleção: a análise de pontos fixos e jacobianos, os ciclos-limite, a bifurcação de Hopf e os regimes de acoplamento descrevem quando a integração é estável e quando colapsa. A mutagénese do fago Qβ ilustra as distribuições de mutantes e o limiar de erro, e o jogo da evolução de frases mostra como a fidelidade limita a informação; a revisão do DNA e a recombinação relaxam posteriormente este limite, ajudando a explicar como genomas unificados puderam emergir de hiperciclos anteriores de RNA/proteínas.
Continuidade dos Polinucleotídeos à Célula IntegradaUma escada de seis etapas, das abundâncias pré-bióticas ao genoma unificado, com o eixo ascendente a marcar o crescimento da capacidade de informação, do fecho catalítico e da integração estrutural; as chamadas destacam o limiar de erro, o desafio dos parasitas, a compartimentação e a unificação do genoma.