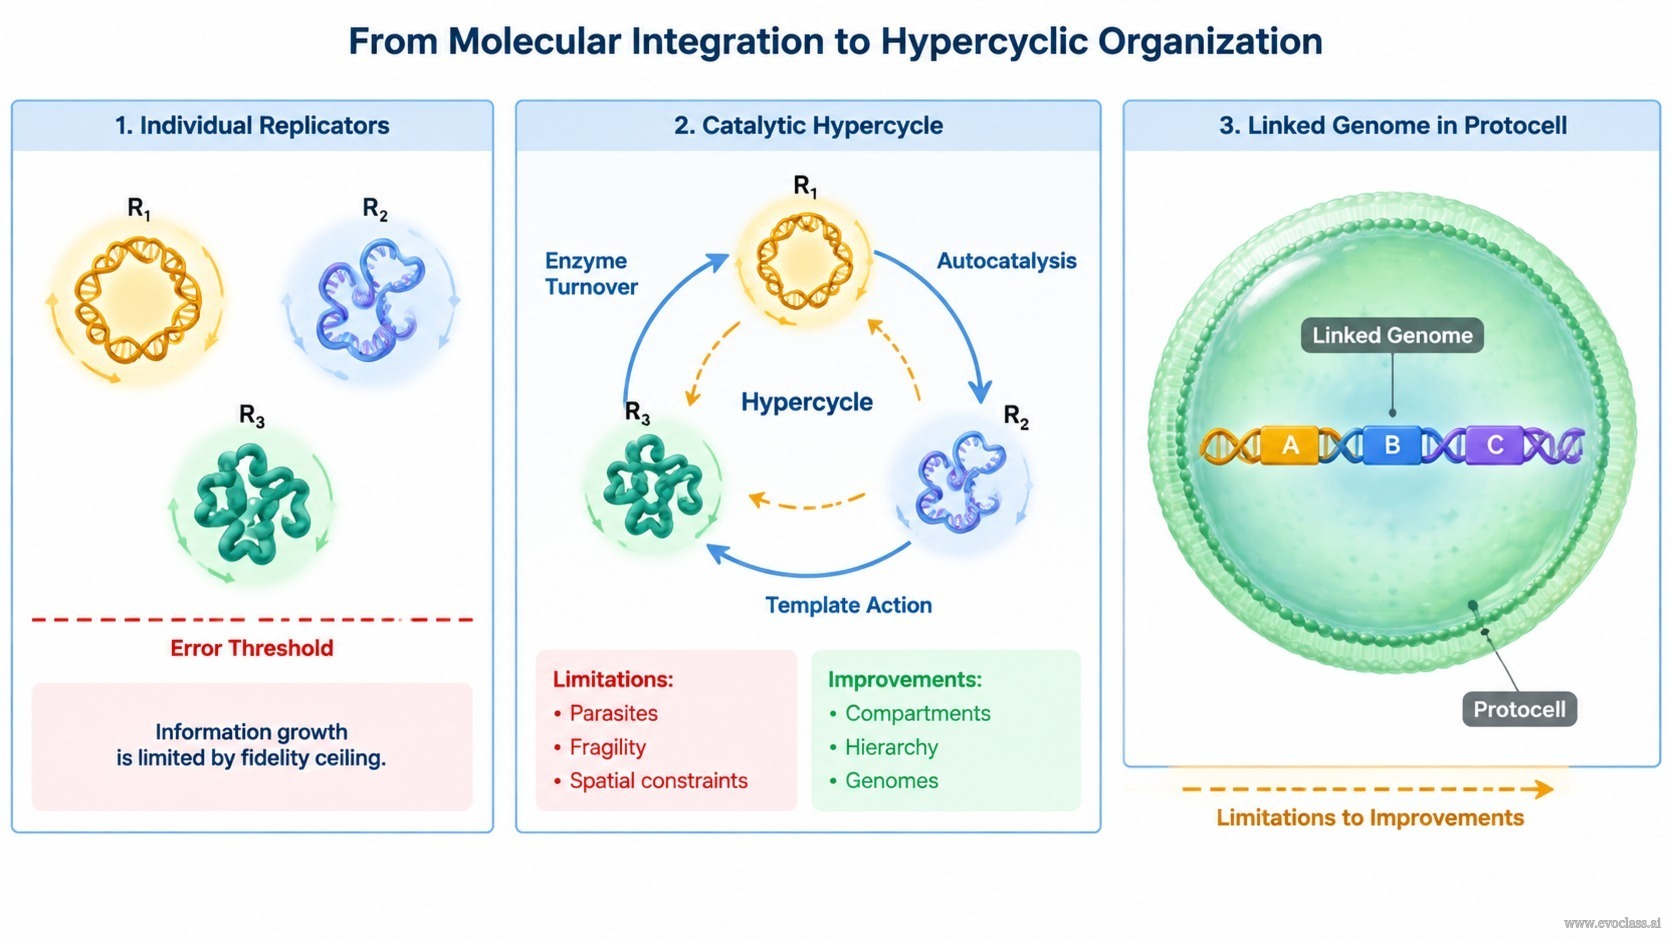
Слайд отражает решающий переход в ранней молекулярной эволюции: когда одна самореплицирующаяся единица уже не может нести достаточно информации, отбор может благоприятствовать интеграции нескольких самореплицирующихся сущностей. Причина — порог ошибок. Точность копирования репликатора задаёт верхний предел длины последовательности, которая может поддерживаться вопреки мутационному распаду. За этим пределом производство большего объёма информации в одной единице становится саморазрушительным, поскольку большинство копий ошибочны и мастер-последовательность утрачивается.
Гиперциклическая организация решает это ограничение, связывая множество самореплицирующихся единиц в замкнутую кооперативную каталитическую сеть. В этой сети каждая единица поддерживает репликацию других через каталитические циклы, автокатализ, матричное действие и оборот ферментов. Единицей отбора становится коллектив, а не какая-либо отдельная молекула — единица отбора. Таким образом, функциональная интеграция поначалу не требует физического сшивания генов; необходимо лишь, чтобы их каталитические продукты возвращались в репликацию членов сети.
Почему функциональное сопряжение первично
До появления геномов как связанных структур отбор может действовать на набор репликаторов, которые кооперируются каталитически. Гиперцикл превращает независимых конкурентов в кооперативную сеть, способную поддерживать больше коллективной информации, чем любой отдельный член. Это также может открывать путь к ранним функциям, связанным с трансляцией, поскольку несколько РНК-подобных единиц могут вносить различные каталитические или кодирующие роли, не превышая при этом предела точности ни одной из них.
От функциональной к структурной интеграции
По мере эволюции геномов функциональное сопряжение может смениться полной структурной интеграцией генов. Даже у самых примитивных известных клеток геномы представляют собой структурные единицы. Структурная связь делает кооперативный набор единой наследуемой сущностью, снижает зависимость от диффузионного каталитического сопряжения и может защищать кооперирующиеся гены от утраты или раздельной эксплуатации.
Обоснование через спектр мутантов
Центральный вопрос: почему использовать гиперциклическую организацию множества одиночных мутантных генов, а не один постоянно растущий геном. Для набора из 100 генов число k-ошибочных мутантов равно
Ограничения и улучшения
Гиперциклическая организация — не окончательное решение. Она может быть косвенной, динамически хрупкой, уязвимой для паразитических или эгоистичных репликаторов и зависящей от пространственных или компартментных ограничений. Улучшения включают компартментализацию, иерархические гиперциклы и в конечном счёте формирование структурного генома. Эти изменения стабилизируют кооперацию и снижают зависимость от диффузионного каталитического сопряжения.
Вывод: Гиперцикл — это промежуточный принцип естественной самоорганизации: он связывает самореплицирующиеся единицы через каталитическую кооперацию, так что коллектив может поддерживать информацию за пределами возможностей любого отдельного репликатора, и он прокладывает путь к структурно интегрированным геномам.
От молекулярной интеграции к гиперциклической организацииЭтап 1 показывает отдельные самореплицирующиеся единицы, ограниченные потолком точности; этап 2 показывает каталитические циклы, автокатализ, матричное действие и оборот ферментов, образующие замкнутую гиперциклическую сеть; этап 3 показывает функциональное сопряжение, заменённое структурно связанным геномом в протоклетке, при этом пунктирная янтарная стрелка обозначает ограничения и стабилизирующие улучшения.