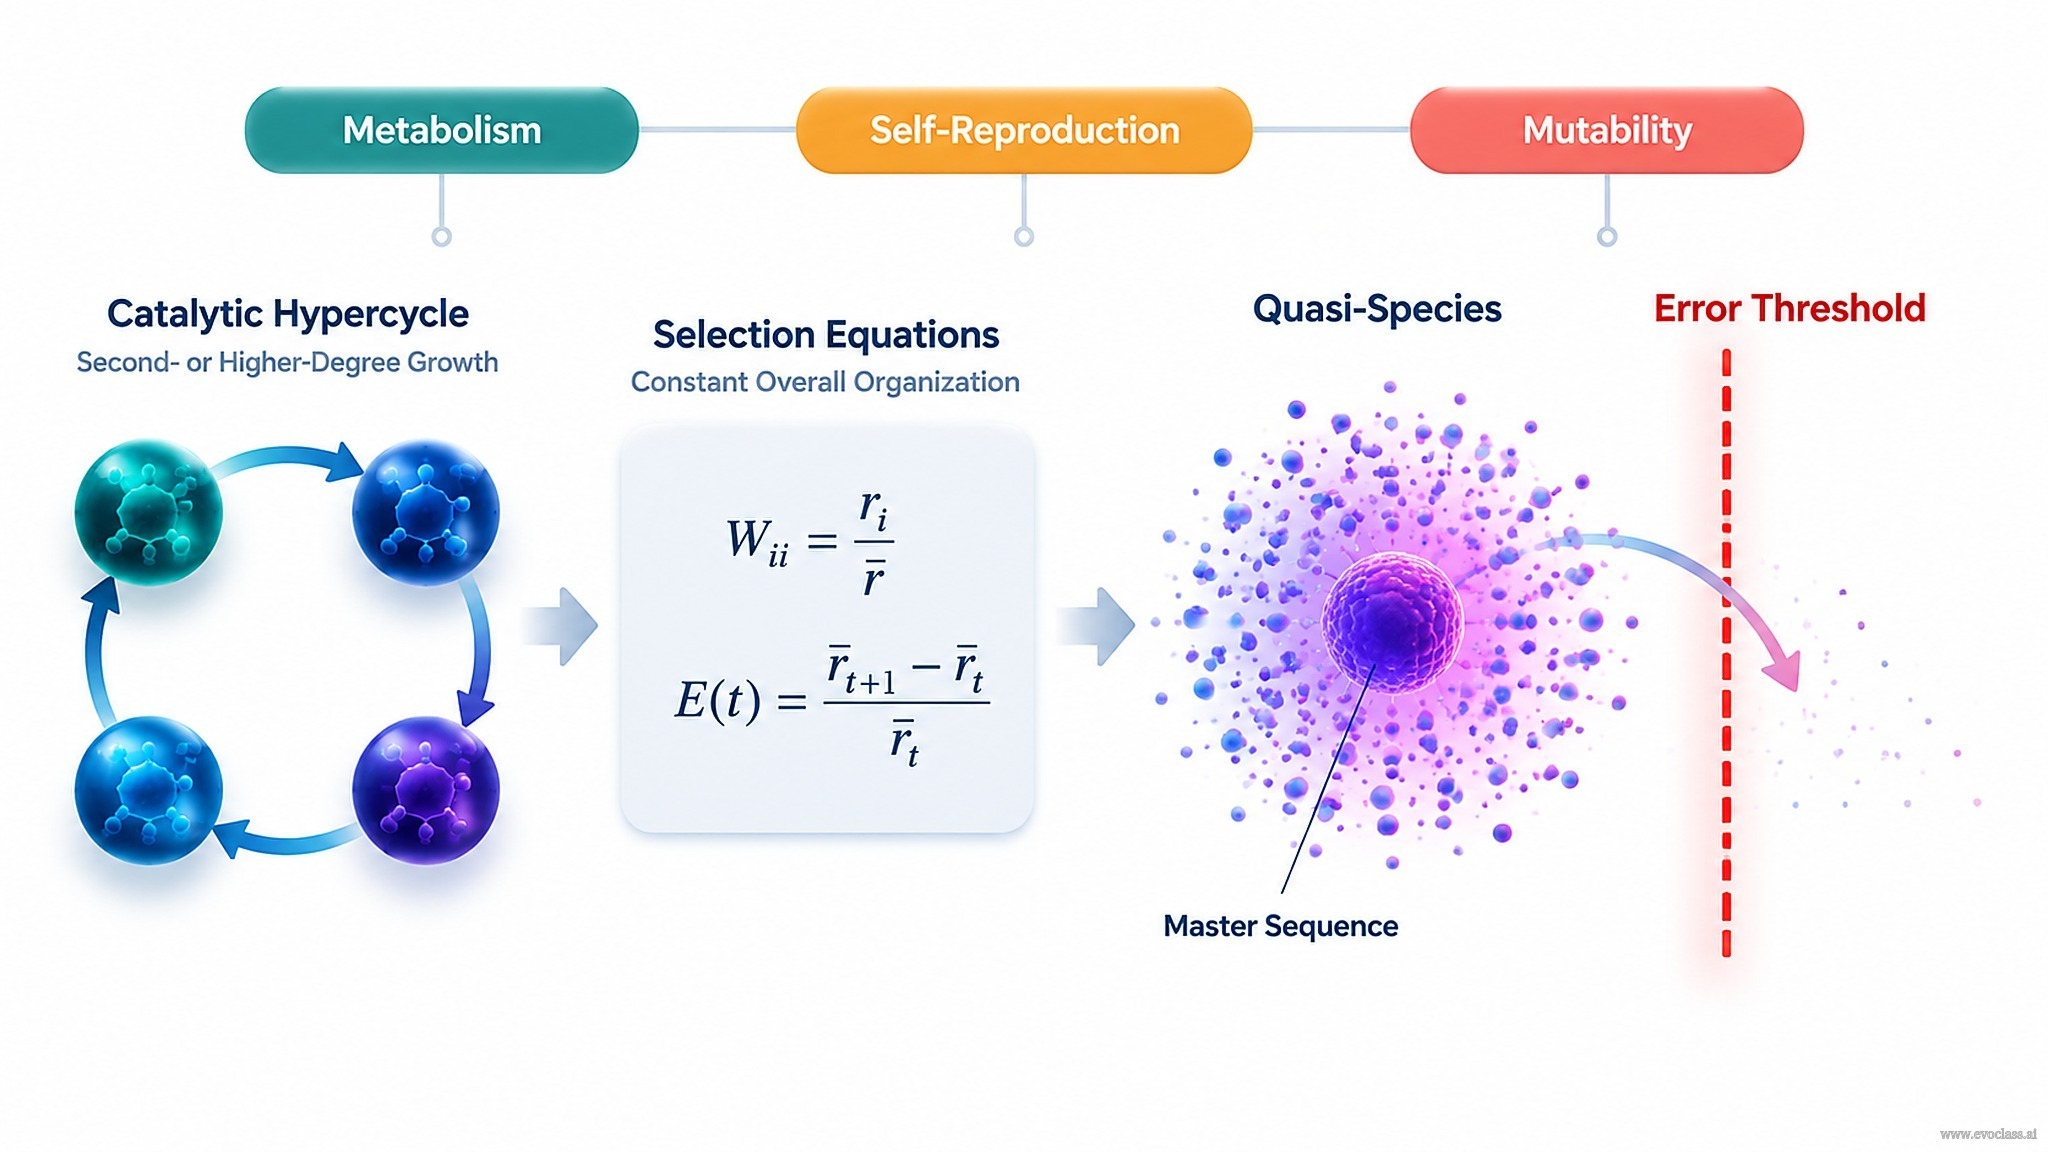
Этот урок начинается с вопроса, центрального для теории происхождения жизни: как набор самовоспроизводящихся молекул может порождать молекулярный отбор без уже существующего клеточного аппарата? Ответ, развиваемый здесь, — это каталитический гиперцикл: циклическая связь самовоспроизводящихся единиц, в которой репликация каждой единицы каталитически поддерживается другим членом цикла. Результат — коллективная самоорганизация, а не совокупность независимых репликаторов.
Три организации роста
- Простой каталитический рост: внешний катализатор способствует репликации матрицы, но сам катализатор не производится тем же циклом. Закон роста не является самоусиливающимся.
- Автокаталитический рост: молекула катализирует собственную репликацию или репликацию себе подобных. Скорость роста содержит член, пропорциональный первой степени концентрации репликатора, — самоусиление первой степени.
- Гиперциклический рост: репликация организована как замкнутый цикл A → B → C → ... → A. Поскольку каждый член производится под катализом другого члена, общий рост зависит от произведений как минимум двух концентраций. Вот почему каталитические гиперциклы — это системы второй или высшей степени.
Это различие важно, поскольку только гиперциклическая организация связывает самовоспроизведение с коллективной нелинейной динамикой, способной поддерживать отбор на молекулярном уровне.
Дарвиновские предпосылки
Для возникновения молекулярного отбора должны выполняться три условия:
- Метаболизм: источник свободной энергии и материала для поддержания организованного состояния вдали от равновесия.
- Самовоспроизведение: способность единиц размножаться, чтобы преимущественные варианты могли увеличивать свою численность.
- Мутабельность: наследуемая изменчивость, без которой нет субстрата для отбора.
Эти три предпосылки — граничные условия: сами по себе они не определяют количественную динамику, но задают область, в которой дарвиновское описание имеет смысл.
Уравнения отбора при постоянной общей организации
Когда общая концентрация репликаторов поддерживается постоянной, частоты
Здесь Wii — это селективная ценность репликатора типа i, учитывающая скорости его репликации и деградации. E(t) — это средняя избыточная продуктивность— средневзвешенное по популяции значение селективных ценностей. Частота типа растёт, когда его W_ii превышает E(t), и падает, когда опускается ниже E(t). Условие постоянной организации делает отбор относительным сравнением, а не абсолютной гонкой роста.
Баланс мутаций и отбора и квазивид
Реальная репликация подвержена ошибкам. Баланс мутаций и отбора не даёт единственной доминирующей последовательности дикого типа; вместо этого он порождает квазивид— организованное распределение мутантных последовательностей с центром на мастер-последовательности. Таким образом, дикий тип — наиболее вероятный член облака родственных последовательностей, а не единственная мишень отбора. Распределение устойчиво, когда селективное преимущество мастер-последовательности уравновешивает мутационный поток от неё.
Порог ошибок
Квазивид может сохраняться лишь при достаточно низкой частоте мутаций на одну репликацию. За порогом ошибокмастер-последовательность не может надёжно передавать свою информацию, облако мутантов делокализуется, а организованное распределение коллапсирует в мутационно рандомизированное состояние. Это ограничивает объём информации, который гиперцикл или квазивид способен воспроизводимо поддерживать. Открывающая дорожная карта — каталитический цикл → уравнения отбора → квазивид → порог ошибок — таким образом связывает молекулярную самоорганизацию с фундаментальным информационным потолком дарвиновской эволюции на молекулярном уровне.
Дорожная карта каталитического гиперциклаЗамкнутый каталитический гиперцикл ведёт к уравнениям отбора с селективной ценностью Wᵢᵢ и средней избыточной продуктивностью E(t), затем — к облаку квазивида и барьеру порога ошибок. Три дарвиновские предпосылки — метаболизм, самовоспроизведение и мутабельность — обрамляют переход от молекулярной самоорганизации к молекулярному отбору.