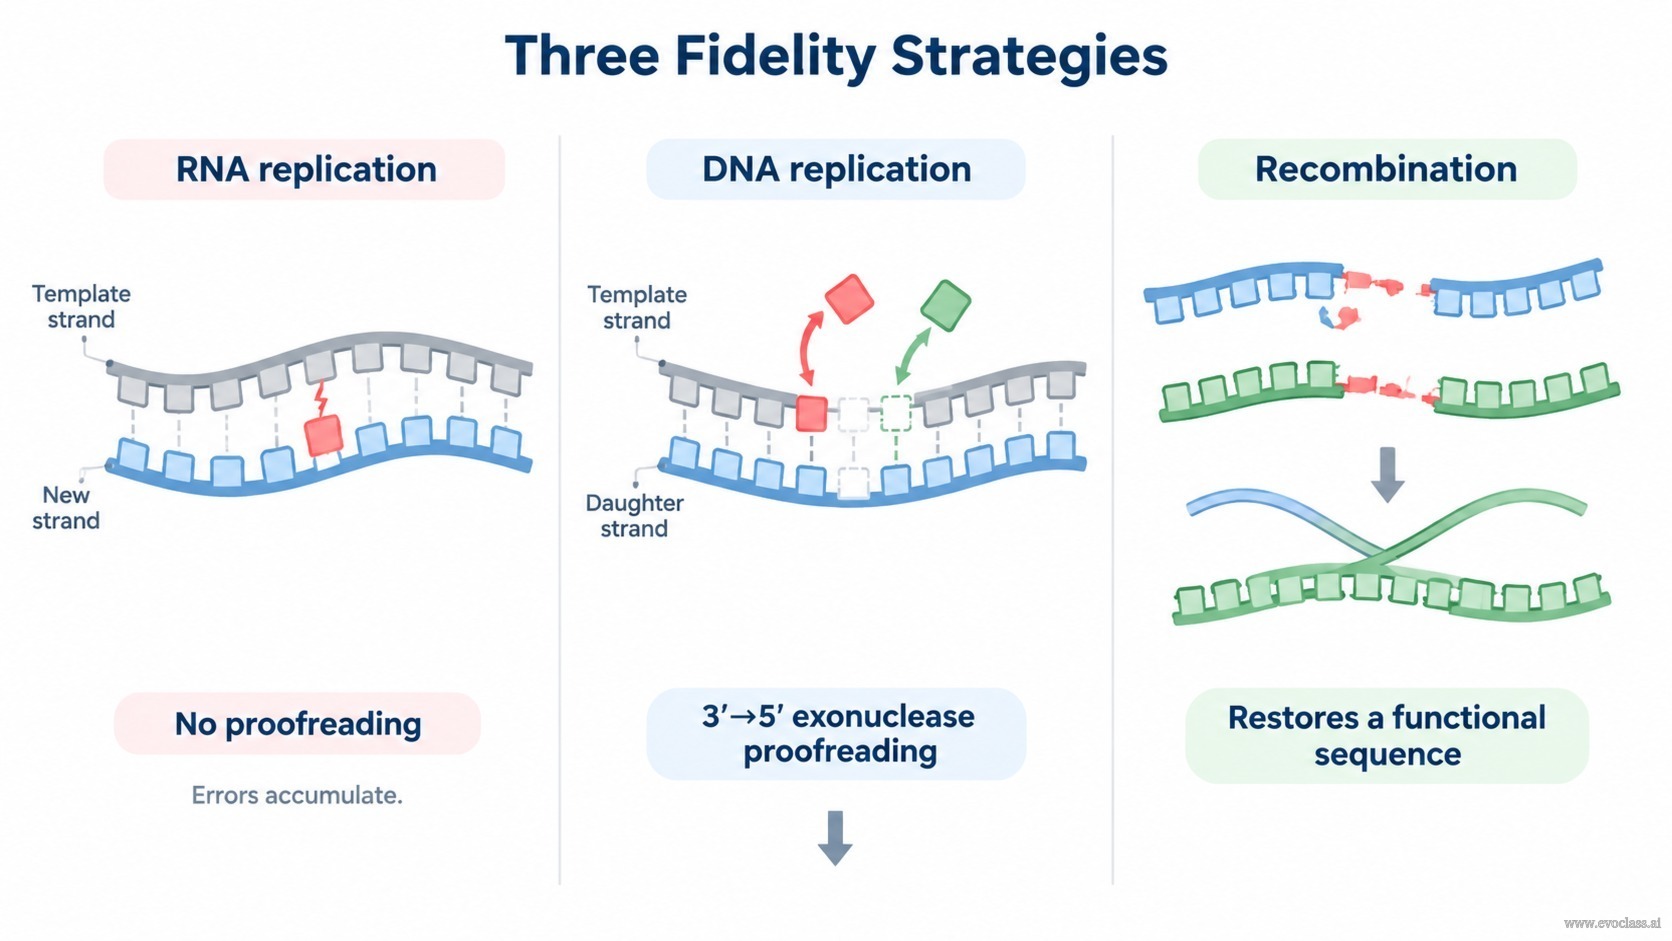
Три различные стратегии определяют, сколько информации способен сохранить репликатор: собственная точность репликации РНК, экзонуклеазная корректура, добавляемая репликацией ДНК, и рекомбинация, которая редактирует информацию на уровне матриц и популяций, а не отдельных пар оснований. Вместе они задают эффективную скорость мутирования — а значит, и положение порога ошибок, и то, насколько стабильным может оставаться квазивид.
Репликация РНК: быстрое копирование без корректуры
РНК-репликазы обычно наращивают растущую цепь без 3′→5′-экзонуклеазного домена. Поэтому ошибочно встроенный нуклеотид не распознаётся и не удаляется: репликация представляет собой единичный акт синтеза без редактирования, и ошибка переходит в дочернюю цепь. Результат — высокая частота ошибок на основание, порядка одной ошибки на 10⁴ скопированных оснований. Поскольку доля безошибочного потомства снижается с ростом длины генома, длинные геномы не могут поддерживаться, поэтому РНК-геномы остаются компактными и находятся вблизи порога ошибок. Эксперименты по мутагенезу фага Qβ иллюстрируют этот режим: вместо единственной чёткой последовательности дикого типа популяция предстаёт широким облаком мутантов, распределённым вокруг мастер-последовательности.
Репликация ДНК: корректура покупает длину генома
ДНК-полимеразы обычно несут 3′→5′-экзонуклеазную активность, которая проверяет только что добавленный 3′-конец. Обнаружив неспаренное основание, фермент меняет направление и гидролизует неправильный нуклеотид, прежде чем элонгация возобновится, так что ошибка устраняется и встраивается правильное основание. Корректура, надстроенная над избирательностью спаривания оснований, снижает частоту ошибок на два–три порядка величины. В терминах порога ошибок более высокая точность на основание q увеличивает самый крупный геном, который может поддерживаться отбором: при νmax ≈ ln σm ⁄ (1 − q) меньшая частота ошибок (1 − q) ослабляет ограничение и допускает более крупные геномы со стабильным наследованием. Мутанты ДНК-полимеразы с утраченной экзонуклеазной активностью, теряющие корректуру, демонстрируют в точности предсказанное повышение скорости мутирования и уменьшение эффективного размера генома.
Рекомбинация: восстановление и пересортировка на уровне матриц
Рекомбинация не улучшает спаривание оснований в активном центре полимеразы. Она действует на матрицы и популяции. Гомологичная рекомбинация может восстановить интактную последовательность из двух по-разному повреждённых матриц; переключение матриц может спасти остановившуюся или нагруженную ошибками копию; а пересортировка может объединить полезные варианты в одном фоне, одновременно элиминируя вредные. Её отдача зависит от соинфекции, доступной гомологии и силы отбора, поэтому с точки зрения квазивида рекомбинация изменяет эффективную мутационную нагрузку и популяционный баланс мутирования–отбора, а не саму частоту ошибок на основание.
Порог ошибок и следствия для квазивида
Высокая частота ошибок РНК ограничивает νmax и удерживает популяции вблизи порога ошибок; корректура ДНК снижает частоту ошибок и ослабляет это ограничение; рекомбинация может уменьшить эффективную мутационную нагрузку или воссоздать приспособленные последовательности, смещая распределение вариантов, на которое действует отбор. Сравнительный принцип следует напрямую: точность РНК благоприятствует быстрой изменчивости и компактной информации, корректура ДНК — расширению генома и стабильному наследованию, а рекомбинация — популяционному восстановлению и модульным инновациям. Это взаимодополняющие, а не взаимоисключающие стратегии, и реальные репликаторы сочетают их в разной степени.
Сравнительный принцип. Точность РНК: быстрая изменчивость, компактные геномы, высокая мутационная нагрузка. Корректура ДНК: частота ошибок на порядки ниже, νmax повышена, крупные геномы наследуются стабильно. Рекомбинация: точность спаривания оснований не меняется, но происходит популяционное восстановление, пересортировка и элиминация вредных вариантов.
Три стратегии точностиСлева: репликация РНК встраивает неспаренное основание и, не имея корректуры, оставляет его в дочерней цепи, поэтому частота ошибок на основание остаётся высокой. В центре: 3′→5′-экзонуклеаза ДНК-полимеразы вырезает неспаренный 3′-нуклеотид и встраивает правильный, снижая частоту ошибок на порядки величины. Справа: рекомбинация соединяет две по-разному повреждённые матрицы, восстанавливая функциональную последовательность и исправляя информацию на популяционном уровне, а не на уровне отдельной пары оснований.