8
Пределы гиперциклической организации и динамика паразитов
HYC-1979Lesson 3: Error Threshold and Early Replicative Units
00:00

Гиперциклическая организация способна объединить несколько каталитических единиц в единую самовоспроизводящуюся сеть, однако эта интеграция имеет пределы. В условиях динамики действующих масс при постоянной организациигиперцикл одновременно испытывает два различных давления: самовоспроизводящиеся паразиты которые получают катализ, не возвращая его, и комбинаторная мутантная нагрузка которая стремительно растёт по мере удлинения генома. Вместе они определяют центральный предел гиперциклической организации.

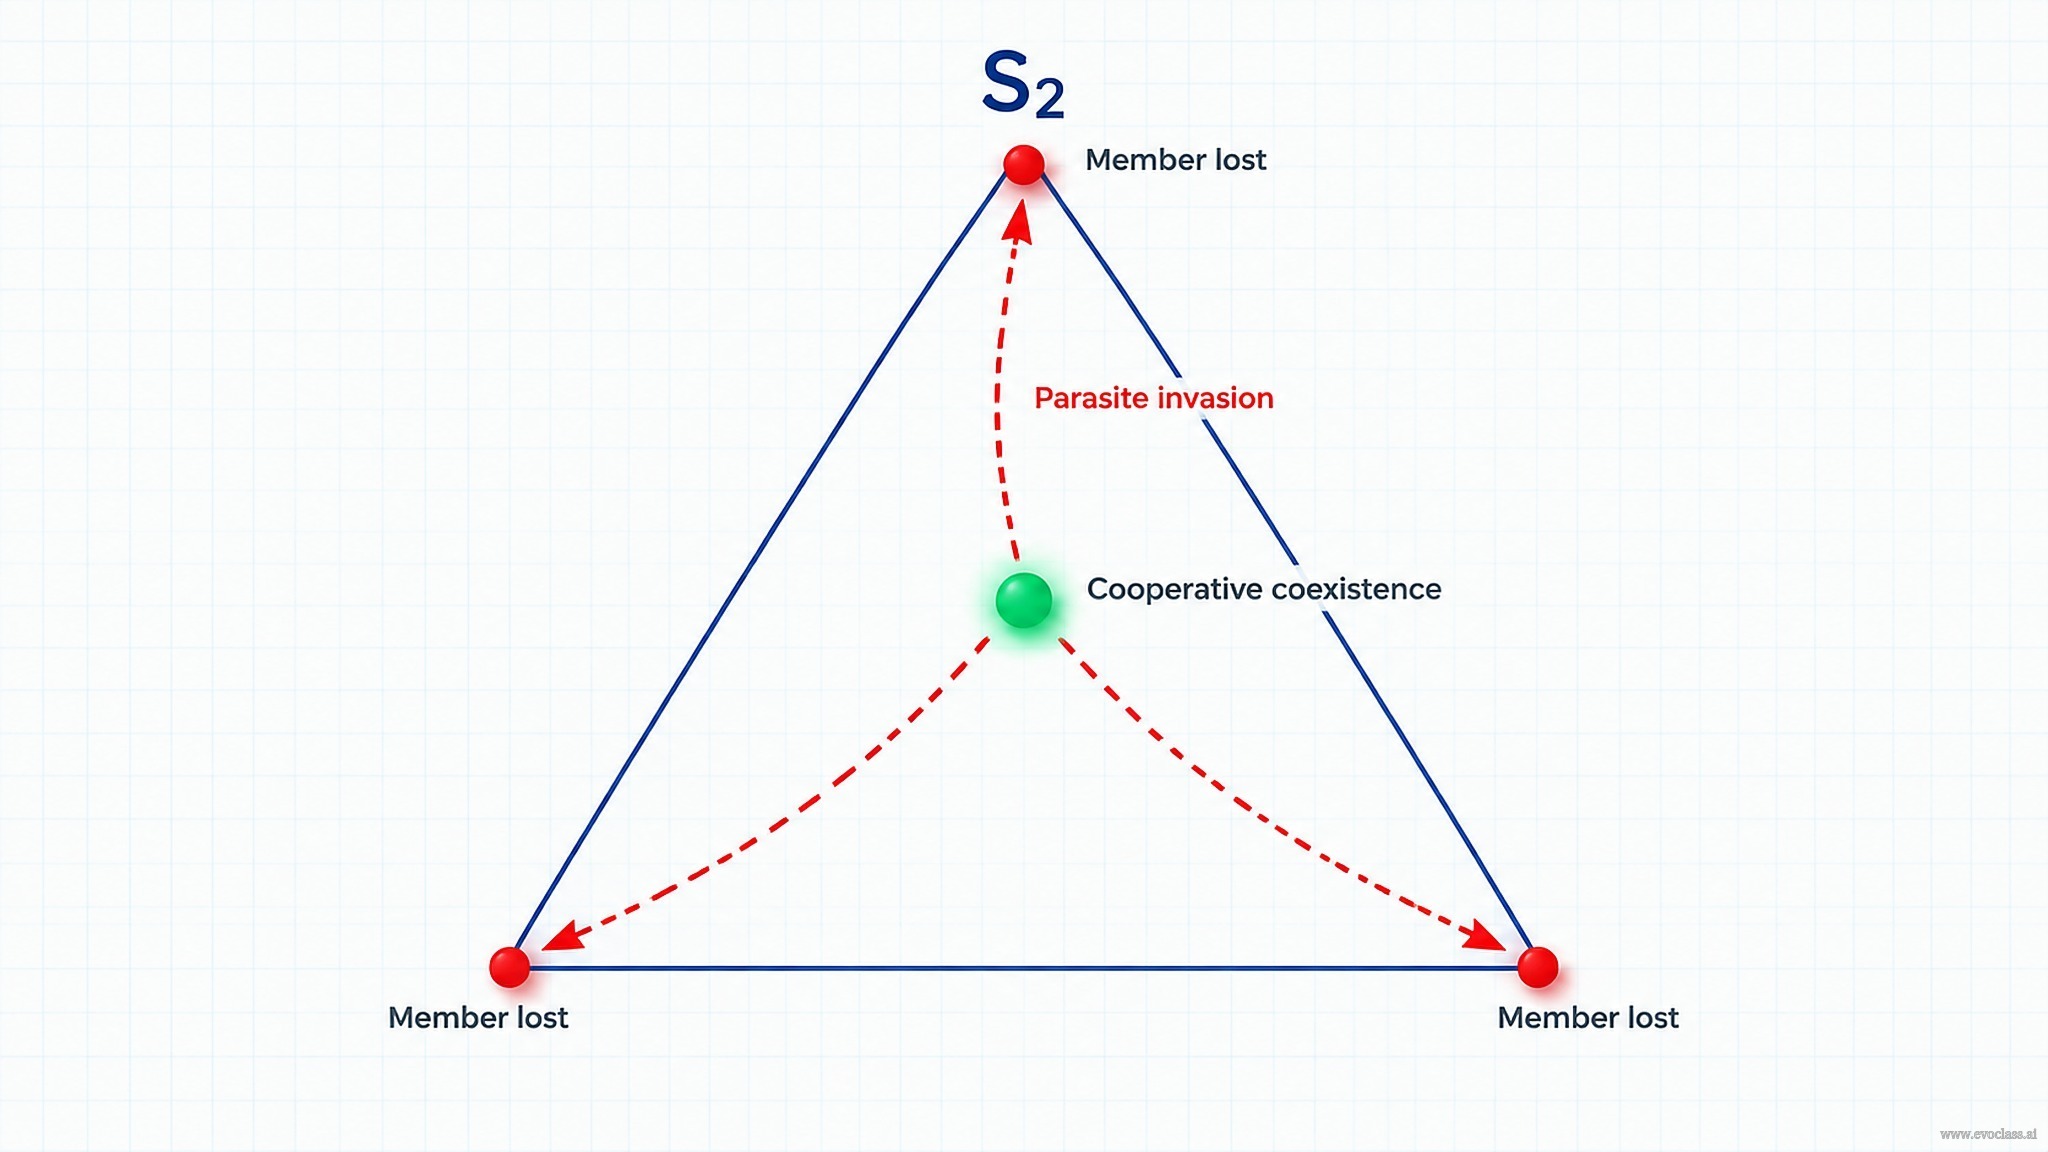
Симплекс концентраций S2: внутреннее сосуществование против коллапса в уголВторжение паразита вытесняет кооперативную внутреннюю область к границеугловая неподвижная точкаугол, где доминирует паразитугол участника циклавнутренняя область: кооперативное состояниеЛегендаВнутренняя область: все участники сосуществуютУгол: участник потерянВызванный паразитом дрейф наружуПорог вторженияẋ > 0 при c0 < k / kAпаразит сдерживаетсяẋ < 0 при c0 > k / kAучастник потерян — паразит вторгается

Паразиты на симплексе концентраций

Рассмотрим двухкомпонентную систему, в которой паразит и участник гиперцикла x имеют общую концентрацию . Паразит размножается автокаталитически (константа скорости ) и поддерживается катализом, который обеспечивает цикл, тогда как участник x воспроизводится через связь . Динамика при постоянной организации (T.13.8) имеет вид:

Знак ẋ разделяет два режима на пороге : при участник растёт и паразит сдерживается; при участник убывает и паразит вторгается. Это количественное объяснение того, почему самовоспроизводящийся паразит может дестабилизировать гиперцикл.

Угловые и внутренние состояния

Гиперцикл допускает неподвижные точки на углах симплекса концентраций, каждая из которых соответствует потере одного компонента, и внутреннее состояние представляющее кооперативное сосуществование всех участников. Внутренняя область продуктивна, но хрупка: именно из неё вторжение паразита может вытолкнуть траекторию к границе, где участник теряется безвозвратно.

Рост генома комбинаторно дорогостоящ

Удлинение генома резко повышает мутационную нагрузку. Для последовательности длиной 100 существует = (100 по k) k-ошибочных мутантов: 100 одноошибочных мутантов, 4 950 двухошибочных мутантов, 161 700 трёхошибочных мутантов и так далее. Когда присутствует n таких мутантов при n ≪ , число их комбинаций растёт как ( по n) ≈ ⁿ / n!. Именно поэтому одно постоянно растущее геномное образование невыгодно по сравнению с гиперциклической организацией отдельных мутантных генов: кооперация распределяет каталитическую функцию так, что ни одна длинная последовательность не должна вбирать в себя всю мутантную нагрузку.

Почему важна структура
Эти пределы выведены в предположениях хорошо перемешанного отбора при постоянной организации. Без дополнительной пространственной или компартментной структуры крупные гиперциклы сталкиваются с постоянно растущим паразитическим и мутационным давлением, и внутреннее кооперативное состояние не может поддерживаться бесконечно долго.