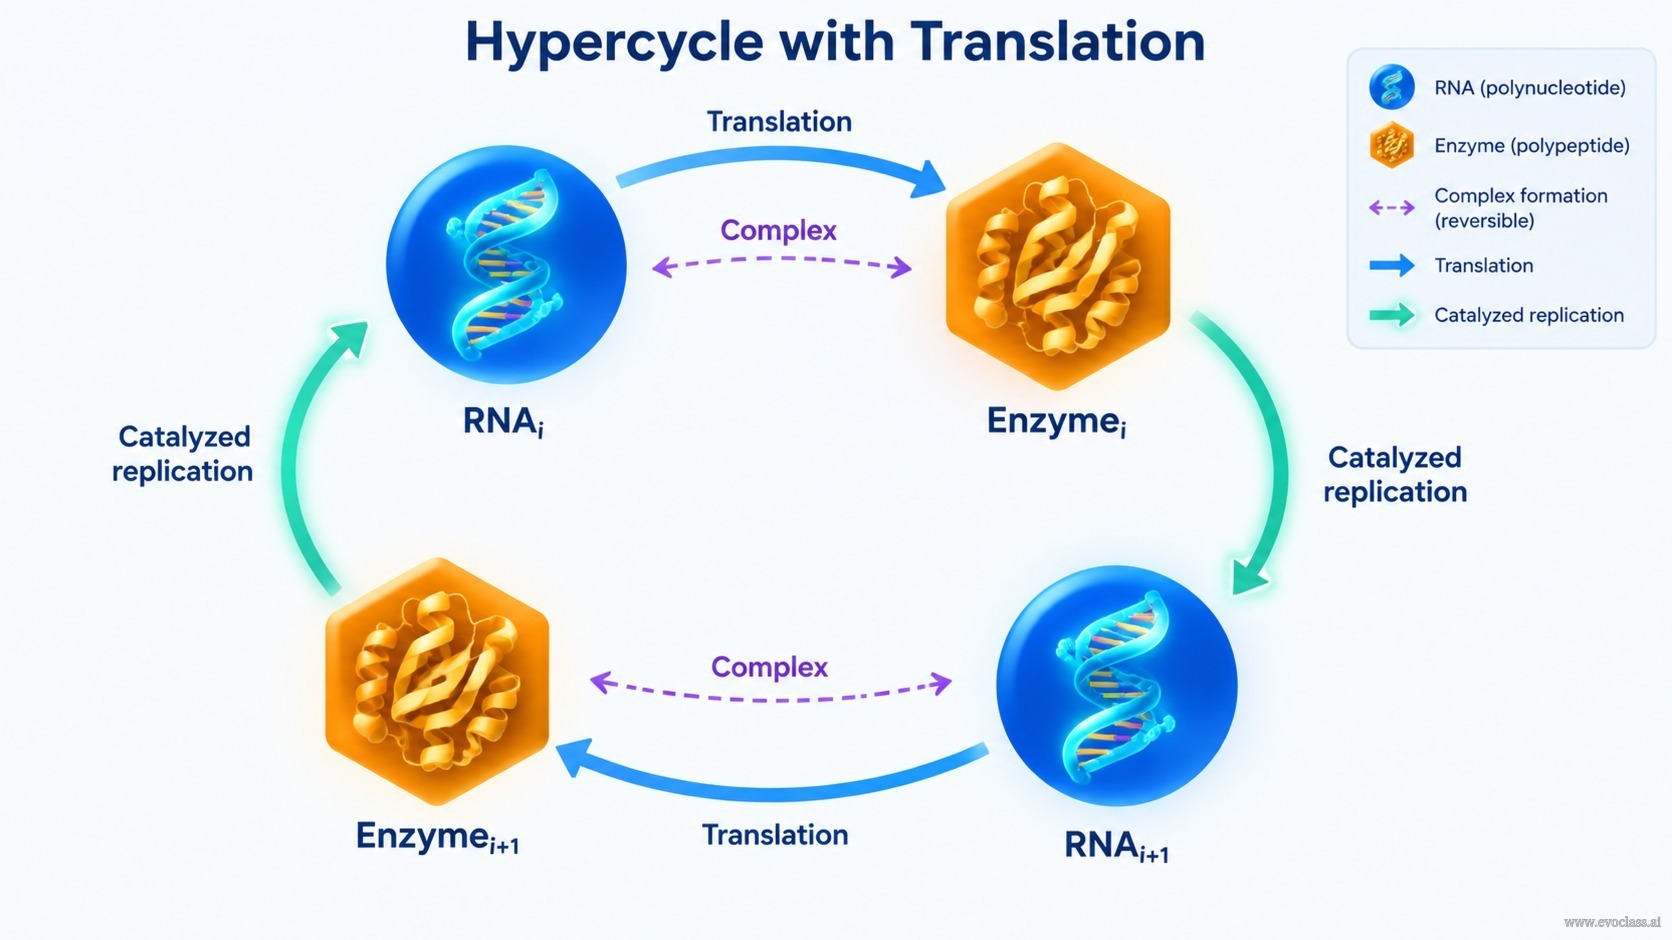
Гиперциклы, сопряжённые с трансляцией, расширяют элементарный гиперцикл, превращая каждый полинуклеотид одновременно в матрицу для репликации и в матрицу для трансляции. Одна и та же молекула РНК может копироваться репликазой и считываться рибосомой, поэтому репликация и трансляция конкурируют за матрицу.
Молекулярная и кинетическая архитектура
- Двойная роль матрицы. Для члена i РНКi копируется для производства новых молекул РНКi и транслируется для производства полипептида
. Оба процесса используют общий пул свободной РНКi. - Замыкание цикла. Полипептид, транслированный с члена i, катализирует репликацию другого члена, как правило i+1. Организация является гиперциклической, а не чисто автокаталитической, поскольку
не катализирует собственную матричную РНКi. - Сопряжённые виды. Кинетическое состояние явно включает свободные полинуклеотиды, свободные полипептиды и полинуклеотид-полипептидные комплексы. Комплексы могут быть каталитически активными или репликационно активными формами, например РНКi+1·
. - Кинетическая архитектура. Репликация и трансляция, направляемые матрицей, взаимосвязаны с каталитической обратной связью. Информация о полипептидах сохраняется только через кодирующие их полинуклеотидные матрицы; полипептиды не реплицируются независимо.
- Системное следствие. Гиперцикл, сопряжённый с трансляцией, нельзя свести к простому каталитическому гиперциклу, поскольку он добавляет к циклу репликации стадии трансляции и образования комплексов. Эти дополнительные стадии закладывают основу для последующего анализа концентрационных пределов и устойчивости.
Элементарные кинетические стадии
Для члена цикла i компактная схема имеет вид:
- Трансляция: РНКi → РНКi +
. - Образование комплекса:
+ РНКi+1 ⇌ (РНКi+1· ). - Катализируемая репликация: (РНКi+1·
) → 2 РНКi+1 + , или + РНКi+1 → 2 РНКi+1 + если комплекс не показан явно.
Репликация РНКi катализируется Ei−1. Итерация по i замыкает гиперцикл, сопряжённый с трансляцией. Поскольку репликация и трансляция используют одну и ту же матрицу РНК, их относительные скорости определяют, какая доля РНК идёт на копирование, а какая — на производство полипептида, доступного в качестве катализатора. Это сопряжение является ключевым структурным отличием от элементарного гиперцикла.
Гиперцикл, сопряжённый с трансляциейЧередующиеся узлы РНК и полипептидов показывают трансляцию RNA_i в