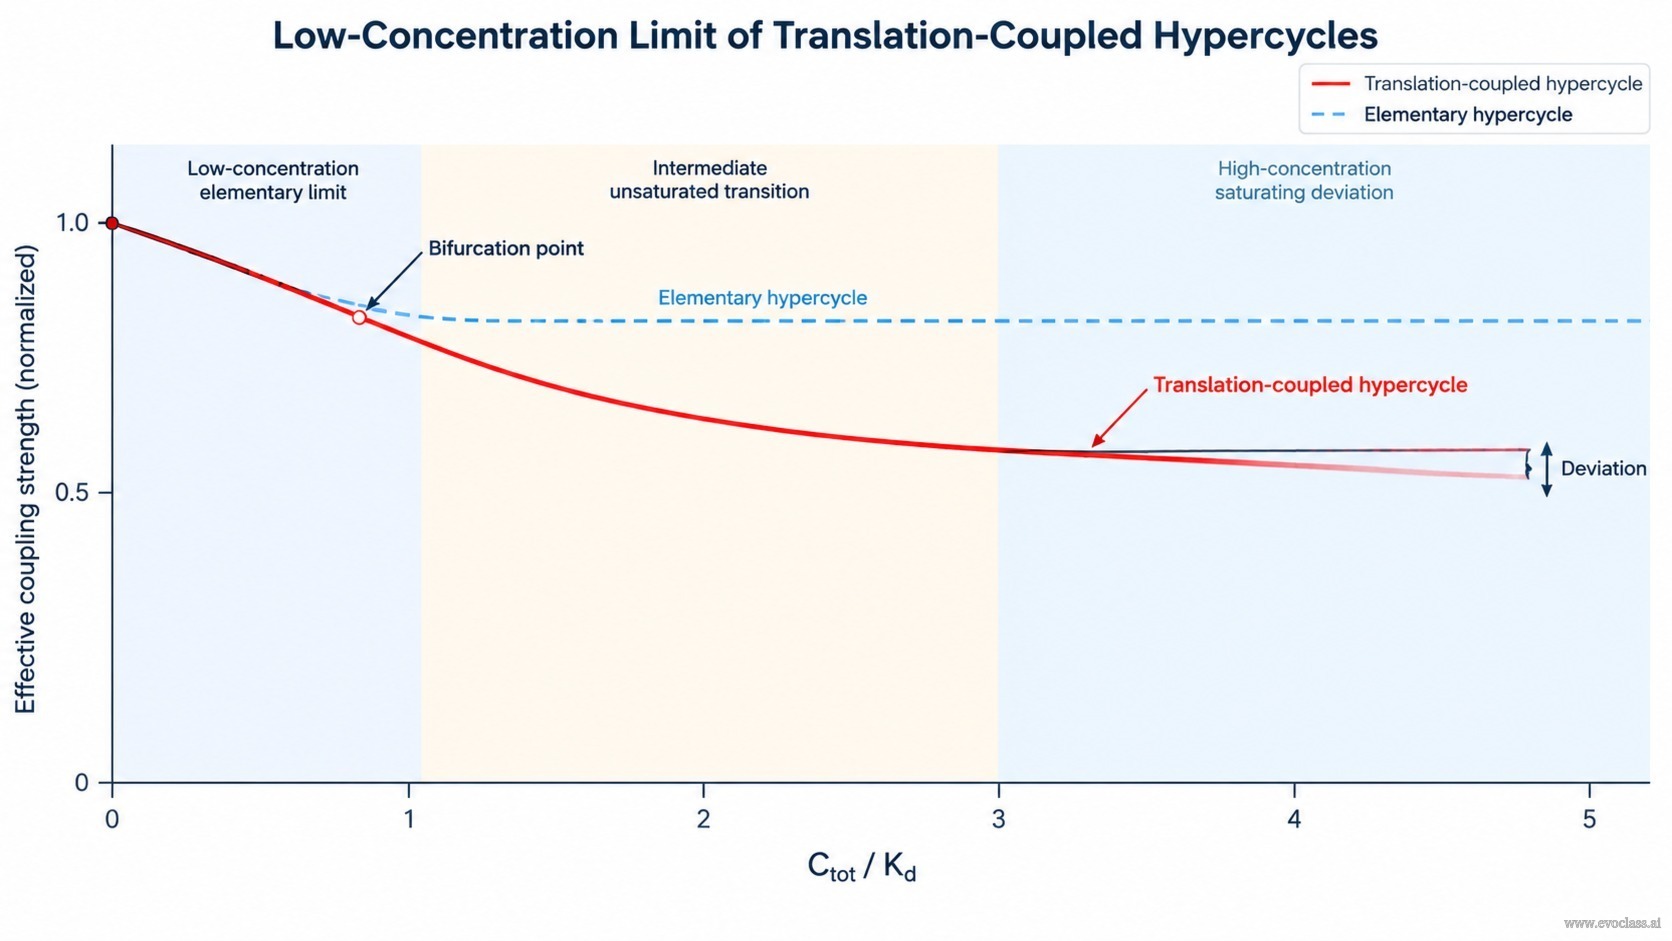
В трансляционно-сопряжённом гиперциклекаждая матрица РНК не только реплицируется, но и транслируется в полипептид, который обратимо связывается с РНК, образуя комплекс. Именно этот этап связывания, характеризуемый константой диссоциации
Почему низкая суммарная концентрация упрощает кинетику
Когда суммарная концентрация РНК и полипептида намного меньше
- Преобладают свободные формы. [комплекс] намного меньше [РНК] и [полипептида], поэтому динамика определяется свободными формами, а не связанным материалом.
- Билинейная концентрация комплекса. [комплекс] ≈ [РНК][полипептид]/Kd, т. е. пропорциональна произведению двух свободных концентраций, а не каждой из них по отдельности.
- Каталитический поток второго порядка. Поскольку катализатором является комплекс, опосредованный поток kcat[РНК][полипептид]/Kd ≈ (kcat/Kd)[РНК][полипептид] представляет собой член закона действующих масс второго порядка — именно такую форму связи использует элементарный гиперцикл.
Эффективные константы скорости и сохраняющаяся топология
Константа ассоциации и каталитическая константа входят только в комбинации, поэтому их можно объединить в одну эффективную константу скорости keff = kcat/Kd. Результатом является элементарный гиперцикл с перенормированными коэффициентами. Принципиально важно, что циклическая топология связей сохраняется: каждый член по-прежнему катализирует репликацию следующего члена по циклу, а трансляция не вносит никакой независимой динамической связи в этом пределе — она лишь перенормирует скорости. Именно поэтому анализ неподвижных точек, устойчивости, предельных циклов и порога ошибок, разработанный для элементарных гиперциклов, напрямую переносится на трансляционно-сопряжённые гиперциклы всякий раз, когда выполняется условие разбавления, — и это как раз делает такое сведение столь полезным для рассуждений об отборе и пороге ошибок.
Где сведение перестаёт работать
Это сведение является асимптотическим, а не тождеством. Оно остаётся справедливым лишь пока образование комплексов ненасыщенно. По мере роста суммарной концентрации к
Предел низких концентраций для трансляционно-сопряжённых гиперцикловЗависимость эффективной силы связи трансляционно-сопряжённого гиперцикла от безразмерной суммарной концентрации C_tot/K_d. При низких значениях сплошная кривая трансляционно-сопряжённой системы сливается со штриховым эталоном элементарного гиперцикла, поскольку редкие ненасыщенные комплексы РНК–полипептид дают билинейный каталитический поток с эффективной константой k_cat/K_d; по мере роста концентрации комплексы насыщаются, и кривые расходятся.