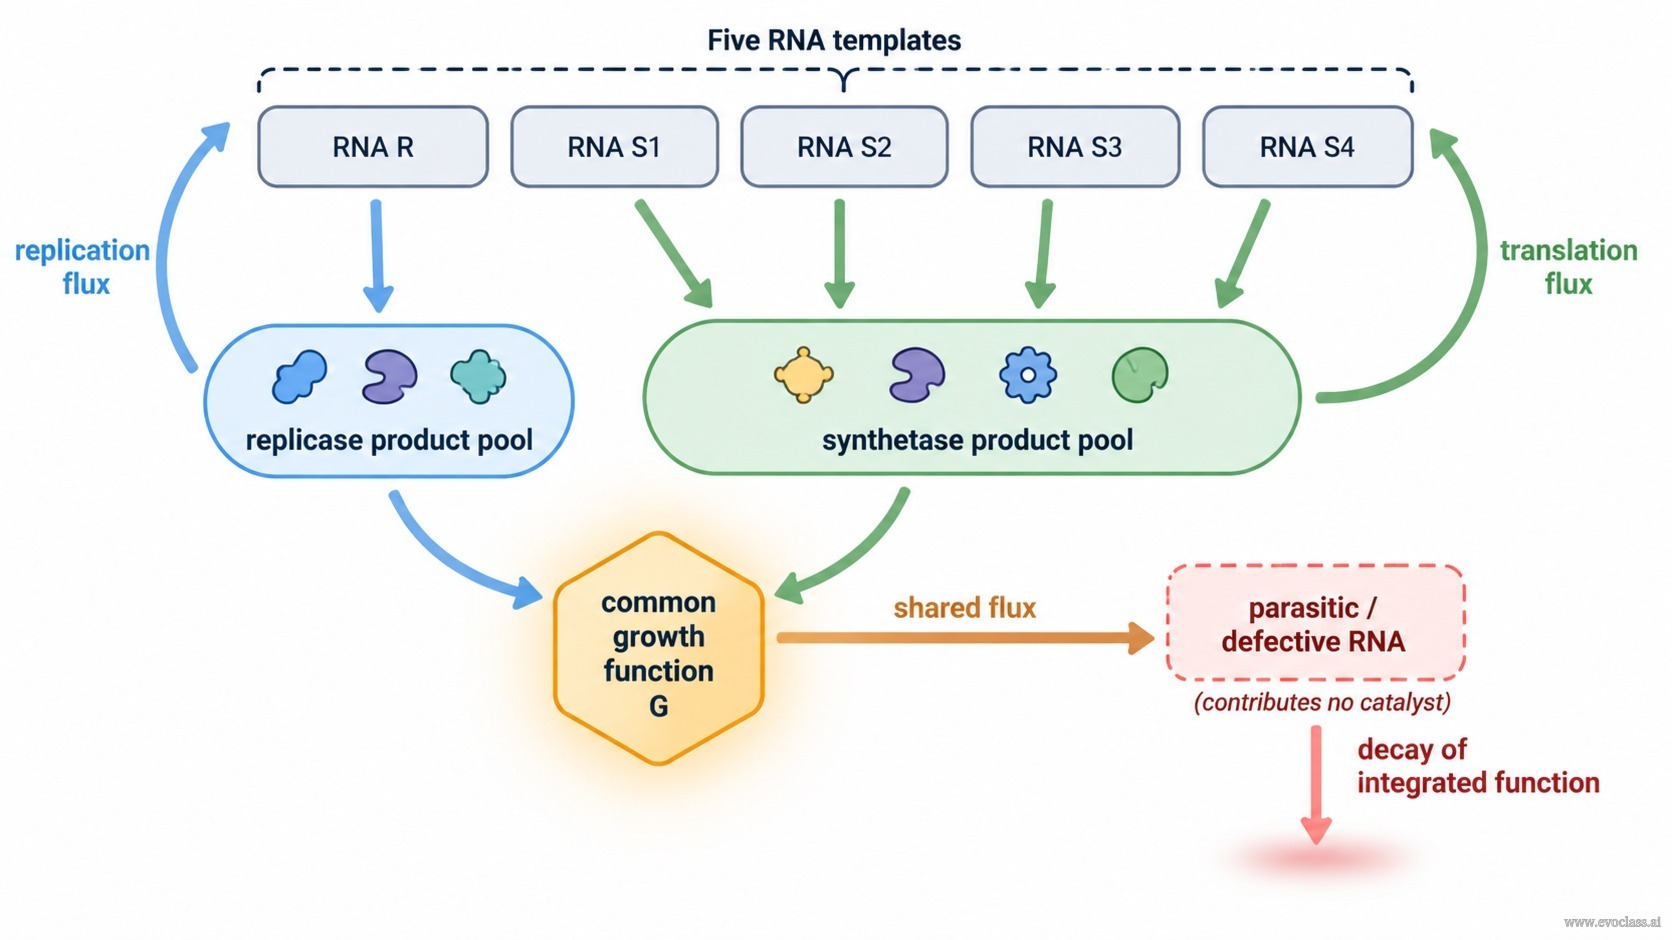
минимальная схема репликазы–синтетаз — это наименьший гиперцикл, сопряжённый с трансляцией, который можно описать как конкретное молекулярное предложение: набор цепей РНК, в котором одна матрица (R) кодирует репликазу, а четыре матрицы (S1–S4) кодируют синтетазы. Это намеренно не единичная самореплицирующаяся РНК. Вместо этого схема представляет собой консорциум: одна и та же популяция РНК служит источником как матриц для репликации, так и матричных РНК для трансляции.
Функциональная связь: продукты репликазы копируют все пять цепей РНК, а продукты синтетаз обеспечивают трансляцию этих же пяти цепей. Поскольку одна и та же популяция одновременно является и матрицей, и каталитическим продуктом, репликация и трансляция взаимно сопряжены, а не представляют собой отдельные подсистемы. Эта сопряжённость — архитектурное ядро минимального гиперцикла.
Редукция к общему росту: когда катализаторы действуют на весь набор, отдельные члены, описывающие репликацию и трансляцию, не являются частными для цепи, кодирующей катализатор. Они становятся членами общего пула. Математически сопряжённая система сводится к единой общей функции ростаG для всех цепей. Чистый рост каждой цепи можно записать как коллективный вклад плюс член относительного состава, но селективное вознаграждение за производство катализатора размывается, поскольку каждый участник использует один и тот же поток роста.
Механизм деградации: поскольку все участники используют один и тот же поток роста, мутант, который снижает или прекращает производство катализатора, всё равно получает общую выгоду. Если такой вариант реплицируется быстрее — например, потому что его РНК короче, — он может увеличивать свою относительную частоту, не внося вклада в активность репликазы или синтетаз. Это размывает функциональные катализаторы и позволяет накапливаться паразитическим или дегенеративным цепям. Поэтому одной лишь минимальной схемы недостаточно для устойчивой дарвиновской интеграции.
Следствие для стабильности: чтобы подавить деградацию, требуется дополнительная организация. Компартментализация, пространственная структура или гиперциклическое замыкание могут поставить выживание цепи в зависимость от её собственного каталитического вклада путём совместной локализации катализаторов, матриц и продуктов. Такая организация поддерживает стехиометрический баланс и не позволяет непродуктивным вариантам захватить общий поток роста.
Аналитический нюанс: в исходном изложении (страницы 66–76) редукция к общему росту выявляется через аффинное преобразование переменных популяции. Это преобразование отделяет коллективную моду роста от мод относительного состава. Общая мода роста описывает расширение всего ансамбля, тогда как остальные моды описывают изменение состава — включая вторжение паразитических или дефектных цепей. Эта замена координат проясняет, почему общий рост не может избирательно вознаграждать каталитический вклад каждого компонента.
Минимальная схема репликазы и синтетазПять матриц РНК — R, кодирующая репликазу, и S 1 –S 4 , кодирующие синтетазы, — питают пулы продуктов репликазы и синтетаз. Оба пула сходятся к общей функции роста G. Штриховая паразитическая РНК получает тот же поток, но не вносит вклад в катализ, что вызывает деградацию интегрированной функции.