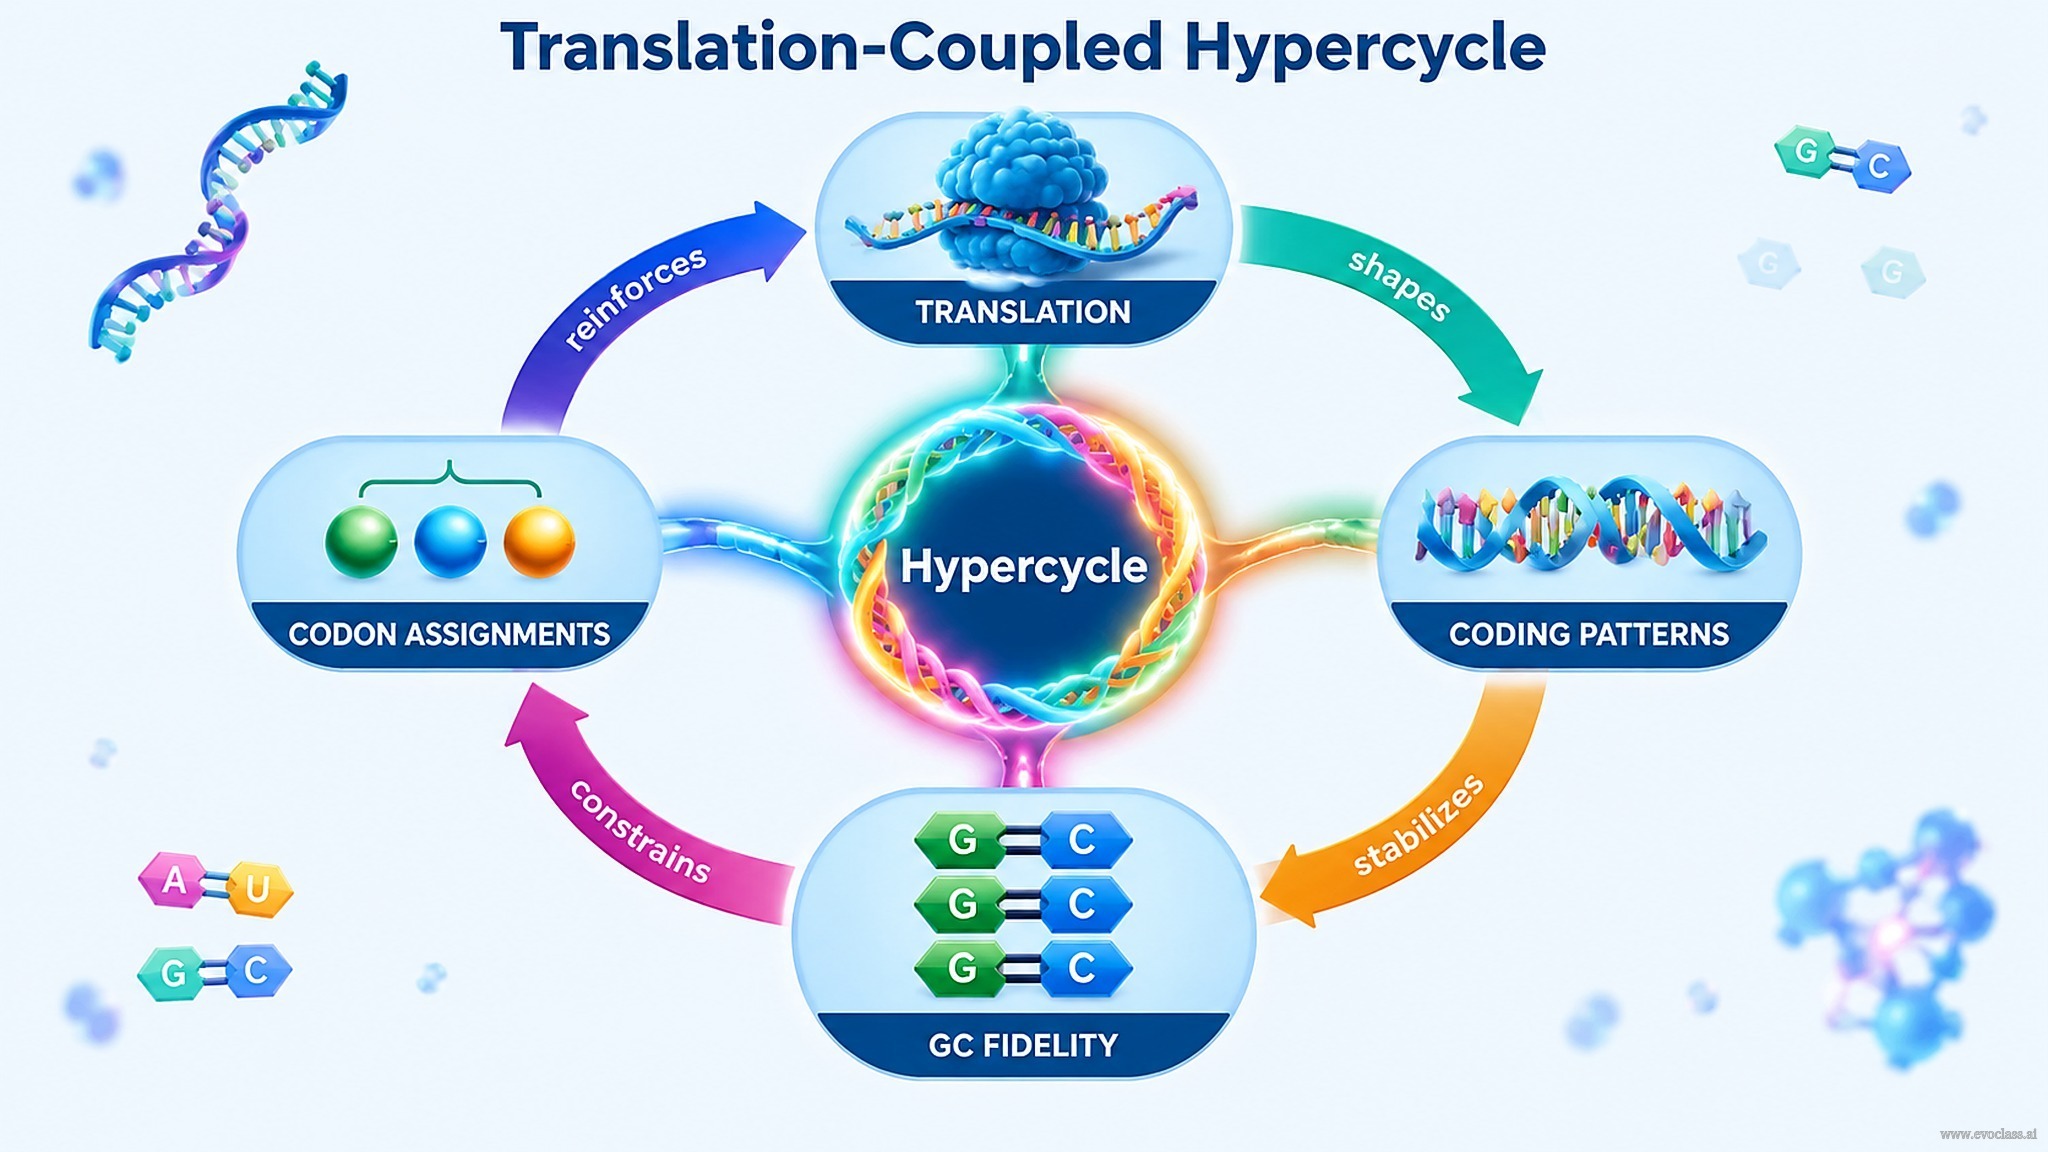
Эта страница объединяет три ранее разрозненные линии в единый согласованный пребиотический сценарий: динамика гиперцикла, сопряжённого с трансляцией, логика первичного кодирования, и химия РНК, богатой GC. Синтез показывает, что реалистичный гиперцикл нельзя собрать только из общих членов репликации и трансляции; он требует замкнутой каталитической связи между функциями, закодированными в РНК.
От распадающегося ансамбля к замкнутой каталитической связи
Минимальная схема, в которой набор цепей РНК кодирует одну репликазу и четыре функции синтетаз, иллюстрирует проблему. Когда члены репликации и трансляции являются общими, они сводятся к единой общей функции роста, и ансамбль распадается из-за внутренней конкуренции. Недостающий компонент — это замкнутая каталитическая связь: каждая функция, закодированная в РНК, должна вносить вклад в репликацию или трансляцию других, чтобы коллектив сохранялся как гиперцикл, а не как набор конкурирующих матриц.
Первичное кодирование и безрибосомное считывание
Первичное кодирование должно решить задачи когерентности рамки, безапятыми-считывания и безрибосомного переноса пептида. Примитивное сообщение может считываться через tRNA-подобные адаптеры, которые переключаются между конфигурациями hf и FH во время переноса пептида (ср. рис. 49). Какая конфигурация является активной, зависит от того, несёт ли tRNA-подобная молекула аминокислоту или присоединена к растущей пептидной цепи. Перенос аминокислоты на пептидную цепь переключает адаптер с hf на FH, что позволяет осуществлять процессивное считывание без сложного аппарата трансляции. Контакт пяти пар оснований в петле антикодона и две конформации петли удерживают растущую пептидил-tRNA прикреплённой к сообщению. Когерентность рамки и безапятыми-декодирование гарантируют, что считывание остаётся в правильной рамке и не распадается на перекрывающиеся или альтернативные рамки считывания.
Химия, богатая GC, и ранние кодонные назначения
Последовательности, богатые GC, обеспечивают большую стабильность дуплекса и точность, что делает их вероятными предшественниками первых воспроизводимых адаптеров и матричных РНК. Несовершенства AU могут позднее внести селективно значимую изменчивость. Ранние кодонные назначения, такие как GGC/GCC и последующий шаг GAC/GUC, интерпретируются через физическую химию и обилие нуклеотидов, а не через полностью современный аппарат трансляции. Апериодическая GC-решётка с селективно выгодными несовершенствами AU и структурные критерии, лежащие в основе первичного аминокислотного алфавита, завершают картину.
Эти линии не являются независимыми инновациями. Паттерны кодирования ограничивают трансляционно-подобный перенос, трансляционно-подобный перенос требует каталитического замыкания, а химия, богатая GC, задаёт порог стабильности для обоих. Получающийся сценарий рассматривает происхождение трансляции и происхождение генетического кода как связанные молекулярные задачи.
Синтез трансляции и первичного кодированияЭта карта понятий объединяет замкнутую каталитическую связь между функциями, закодированными в РНК, первичное кодирование с когерентностью рамки и безапятыми-считыванием, безрибосомный перенос пептида посредством переключения адаптера hf/FH, точность и стабильность, обеспечиваемые богатыми GC последовательностями, и ранние кодонные назначения, такие как GGC/GCC. Стрелки указывают на взаимные ограничения и обратную связь между трансляцией, кодированием и гиперциклической организацией.