гиперцикл — это замкнутая совокупность репликаторов, которые катализируют репликацию друг друга. Поскольку цикл определяется взаимным катализом между несколькими различными последовательностями, он не может зародиться из одной копии-матрицы: одна молекула не содержит всей циклической функции, а её первая копия не имеет каталитических партнёров, с которыми можно замкнуть петлю. Поэтому гиперциклическая организация не может возникнуть внезапно; она должна собираться постепенно на уровне популяции, и наиболее вероятной колыбелью для этой сборки является квазивид, богатый GC-парами.
Почему одна матрица не может запустить цикл
Автокаталитический репликатор самодостаточен: одиночная цепь, служащая матрицей для собственного копирования, растёт экспоненциально из одной молекулы, поскольку молекула и её продукт несут одну и ту же функцию. Гиперцикл устроен иначе. Его определяющее свойство — замкнутая петля каталитической поддержки в которой член i усиливает репликацию члена j, тот усиливает k, и так далее, пока петля не вернётся к i. Уберите любого отдельного члена — и оставшиеся уже не смогут его воспроизвести. Следовательно, первая копия любого члена — тупик: у неё нет комплементарных партнёров, и не существует замкнутого каталитического цикла, который усиливал бы её преимущественно.
Квазивид, богатый GC-парами, поставляет сырьё
Квазивид — это не одна последовательность, а связанное мутациями облако родственных последовательностей, распределённых вокруг доминирующей, мастер-подобной последовательности. В пуле, богатом GC-парами, это облако необычно хорошо наполнено. Каждая дополнительная G–C-пара даёт третью водородную связь, поэтому богатые GC-парами стебли плавятся при более высокой температуре, укладываются надёжнее и выдерживают больше точечных мутаций, прежде чем их вторичная структура разрушится. Таким образом, резервуар одновременно сочетает две вещи, необходимые для решения задачи зарождения: высокое локальное разнообразие вариантов с изменёнными петлями, стеблями и геометрией поверхности и структурную стабильность, достаточную для того, чтобы отдельные варианты оставались функциональными достаточно долго и могли быть проверены отбором.
Мутации исследуют сопряжение, отбор его закрепляет
Именно мутационный поиск фактически исследует пространство взаимодействий. Точечная замена может изменить форму шпильки, обнажить новую связывающую поверхность или привлечь металл-ионный каталитический центр, изменяя коэффициент слабого сопряжения
От квазивидовой организации к гиперциклической
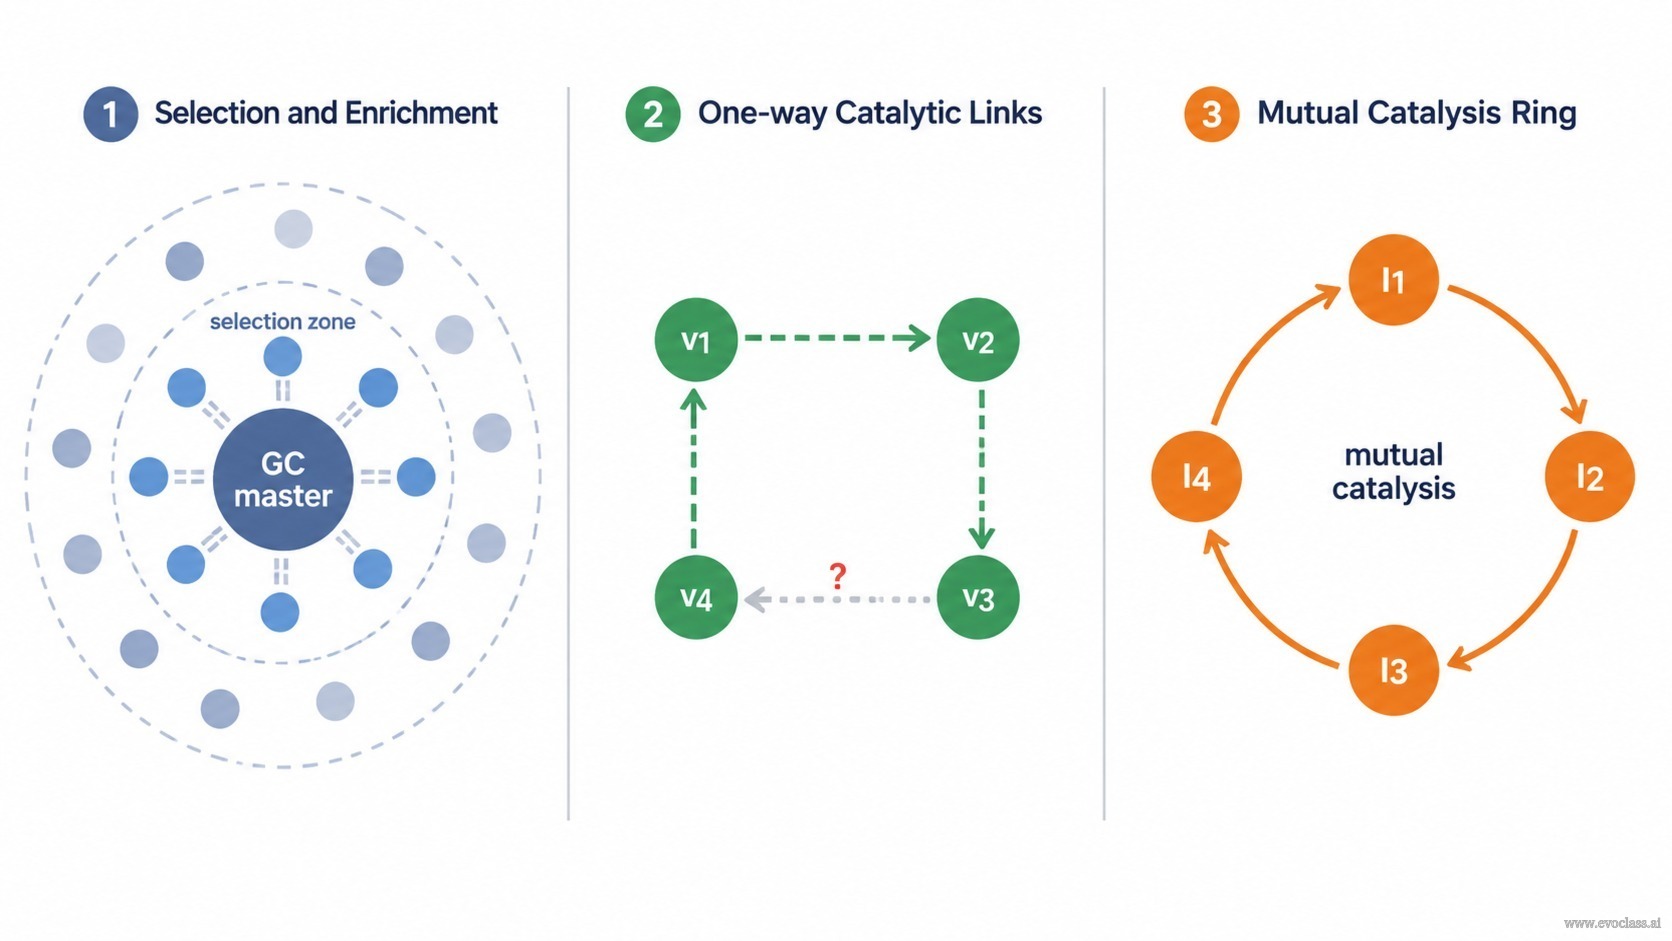
По мере накопления связей распределение мутантов меняет форму. Разнообразие больше не рассеяно вокруг одной мастер-последовательности; оно конденсируется вокруг небольшого подмножества взаимно каталитических матриц, и замыкание кольца происходит лишь тогда, когда связей достаточно, чтобы сеть стала замкнутой, а не просто открытой или разветвлённой. До замыкания ансамбль ведёт себя как квазивид с некоторыми коррелированными вариантами. После замыкания рост становится кооперативным и сверхаддитивным: цикл размножается как единое целое, и поскольку каждый член питает следующий, сопряжённая совокупность может обогнать изолированный квазивид, конкурирующий за те же мономеры и репликазу. Именно так гиперцикл мог появиться без какого-либо предсуществующего многогенного генома — путём рекрутирования и интеграции мутантных генов, уже присутствовавших в богатом GC-парами резервуаре. Лежащий в основе анализ неподвижных точек для двухчленного случая выражает ту же мысль через коэффициенты скоростей: закончится ли пара конкурентным исключением, отбором одного члена или устойчивым гиперциклическим сосуществованием, зависит только от относительных величин самоусиления и взаимного усиления, и этот критерий обобщается на трёхчленные и n-членные циклы.
Когда этот путь не срабатывает
- Точность репликации должна оставаться выше порога ошибок. Если частота мутаций слишком высока, резервуар распадается в размытое облако, в котором ни один вариант не сохраняется достаточно долго, чтобы установить связь.
- Функциональная совместимость имеет значение: члены не должны деструктивно мешать укладке или катализу друг друга, иначе накапливающиеся связи гасят друг друга, а не усиливают.
- Паразитная нагрузка должна оставаться низкой. Эгоистичная матрица, которая эффективно реплицируется благодаря зарождающемуся циклу, но ничего не катализирует в ответ, истощает общие ресурсы и может дестабилизировать сеть до её замыкания.
Разобранный пример. В богатом GC-парами пуле РНК доминирующая последовательность типа GGC/GCC и её мутанты образуют квазивид. Мутант может слабо помогать репликации соседней последовательности, и отбор сохраняет обоих партнёров, поскольку их совместный выход превышает то, чего каждый достигает в одиночку. Дальнейшие мутации порождают взаимную помощь, недостающая ветвь восполняется, и двухчленный или более крупный цикл замыкается. После замыкания гиперциклический рост обгоняет изолированный квазивид, который его породил.
Возникновение из квазивида, богатого GC-парамиТри стадии читаются слева направо. Сначала мастер-последовательность, богатая GC-парами, находится в центре мутационного облака, а внутренняя зона отбора отмечает варианты, которые постепенно обогащаются, тогда как стабильные GC-пары защищают их уложенные структуры. Затем выжившие варианты соединяются слабыми односторонними каталитическими связями, и одно соединение всё ещё показано пунктиром, поскольку сеть ещё не замкнута. Наконец, эти связи становятся взаимными, и сеть замыкается в гиперциклическое кольцо, в котором каждый член катализирует следующий, так что совокупность в целом может обогнать изолированный квазивид.