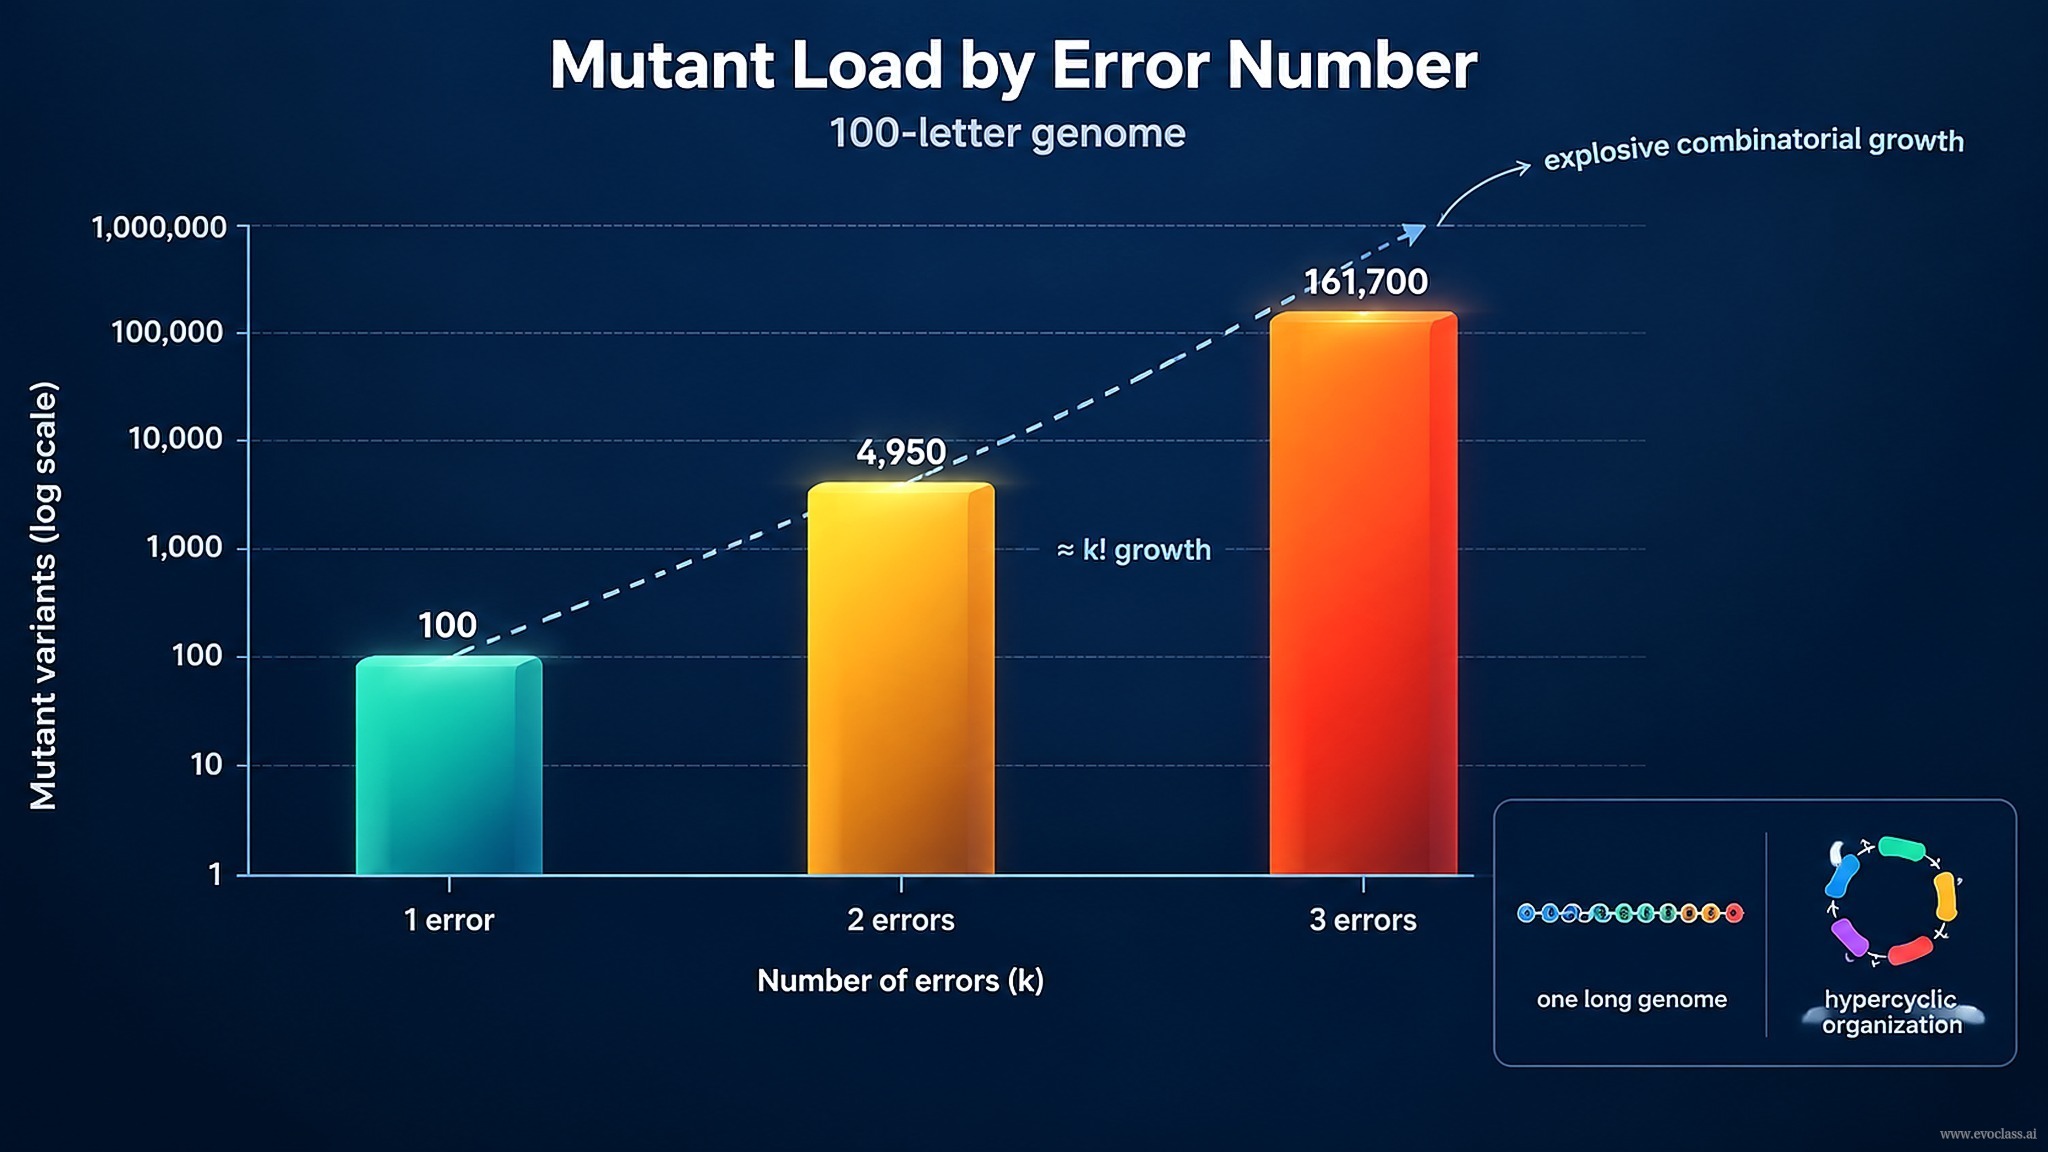
Геном длиной n сталкивается не с одной лишь частотой ошибок. При конечной точности репликации любая возможная комбинация ошибочно скопированных позиций создаёт отдельный мутант. Если ровно k позиций ошибочны, число возможных мутантов с k ошибками равно Nₖ = C(n, k). Для генома из 100 «букв» эти значения таковы: 100 мутантов с одной ошибкой, 4 950 мутантов с двумя ошибками и 161 700 мутантов с тремя ошибками. Таким образом, мутантная нагрузка растёт не линейно, а комбинаторно — с ростом k.
Почему единый растущий геном уязвим
Постоянно растущий геном должен сохранять свою мастер-последовательность, одновременно подавляя лавину близких альтернатив. С ростом n число возможных мутантов с k ошибками при малых k стремительно увеличивается. Даже если частота ошибок на позицию остаётся низкой, совокупность повреждённых вариантов становится ключевым ограничением: отбор должен не допустить, чтобы всё комбинаторное облако вытеснило функциональную последовательность.
Гиперциклическая организация как информационная стратегия
Гиперциклическая организация предлагает альтернативу: распределить информационную нагрузку между более короткими генами с единичными мутациями и объединить их посредством циклического каталитического сопряжения. Более короткие единицы снижают мутантную нагрузку на единицу, поскольку в каждом гене меньше позиций и, следовательно, меньше возможных вариантов с k ошибками. Циклическое сопряжение позволяет отбору действовать на гиперцикл как на единицу более высокого уровня, а не на один длинный геном. Таким образом, аргумент в пользу гиперциклической организации — не только каталитический, но и информационный: она организует мутационное разнообразие на более высоком уровне.
Для n генов и Nₖ доступных мутантов с k ошибками число способов распределить мутантов по генам приблизительно равно (Nₖ + n − 1 choose n) ≈ Nₖⁿ / n! при n ≪ Nₖ. Это показывает, как популяция более коротких единиц может управлять разнообразием, которое перегрузило бы единый постоянно растущий геном.
Мутантная нагрузка по числу ошибокНа графике в логарифмическом масштабе показаны комбинаторные числа мутантов для генома из 100 «букв»: 100 мутантов с одной ошибкой, 4 950 мутантов с двумя ошибками и 161 700 мутантов с тремя ошибками. Быстрый рост демонстрирует, почему единый растущий геном сталкивается с расширяющимся облаком повреждённых вариантов, тогда как гиперциклическая организация распределяет более короткие гены и объединяет их посредством циклического каталитического сопряжения.