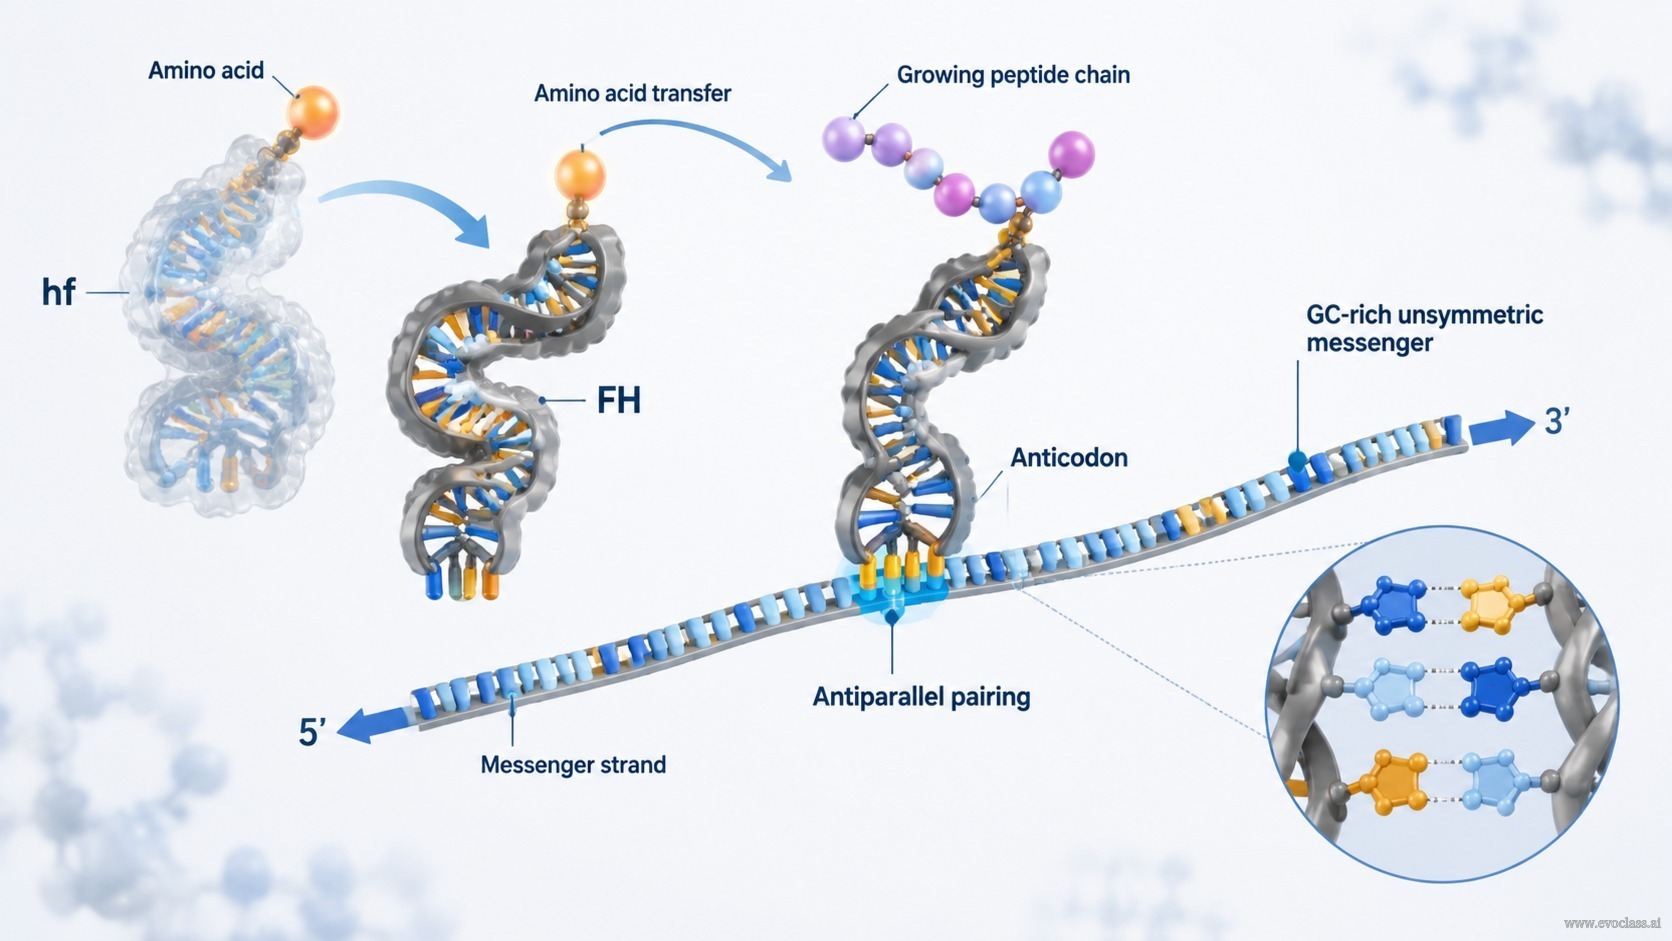
Трансляция на ранних этапах зарождения жизни не обязательно должна была начинаться с полностью сформированной рибосомы. Модель предполагает, что простые адаптеры, подобные тРНК, могли считывать мессенджер путём комплементарного антипараллельного спаривания при наличии каталитической поддержки образования пептидной связи. Конфигурация адаптера зависит от его груза: он принимает hf-конфигурацию когда несёт аминокислоту, и FH-конфигурацию когда несёт пептидную цепь. Перенос аминокислоты на растущую пептидную цепь переключает адаптер из hf в FH (ср. рис. 49).
Поскольку выравнивание адаптера и мессенджера антипараллельно, сообщение можно считывать без сложного трансляционного аппарата. Выбор GC-богатых стартовых паттернов обусловлен четырьмя аргументами, включая стабильность взаимодействия адаптера с мессенджером и точность репликации, которые оба благоприятствуют GC-комбинациям на старте, а также беззапятое считывание при трансляции, требующее несимметричного GC-паттерна. Таким образом, беззапятые паттерны мессенджера возникают из несимметричного GC-паттерна, который допускает считывание без разделителей или сложного трансляционного аппарата.
Ключевые механистические положения
- Каталитическая поддержка по-прежнему необходима для функций трансляции, но ранняя трансляция может использовать простые адаптеры, а не полноценную рибосому.
- Конформация, зависящая от груза: конфигурация тРНК зависит от того, несёт ли она аминокислоту или пептидную цепь. Перенос переключает hf в FH.
- Антипараллельное спаривание: комплементарное выравнивание адаптера и мессенджера антипараллельно, что позволяет считывать без сложного аппарата.
- GC-богатые несимметричные паттерны: стабильность и точность репликации благоприятствуют GC; беззапятое считывание требует несимметричного GC во избежание неоднозначности перекрывающихся рамок.
Считывание адаптером мессенджераНа этой схеме показаны адаптеры, подобные тРНК, в hf- и FH-конфигурациях, антипараллельное комплементарное спаривание с GC-богатым несимметричным мессенджером и перенос аминокислоты, который переключает hf в FH, обеспечивая беззапятое считывание без сложной рибосомы.