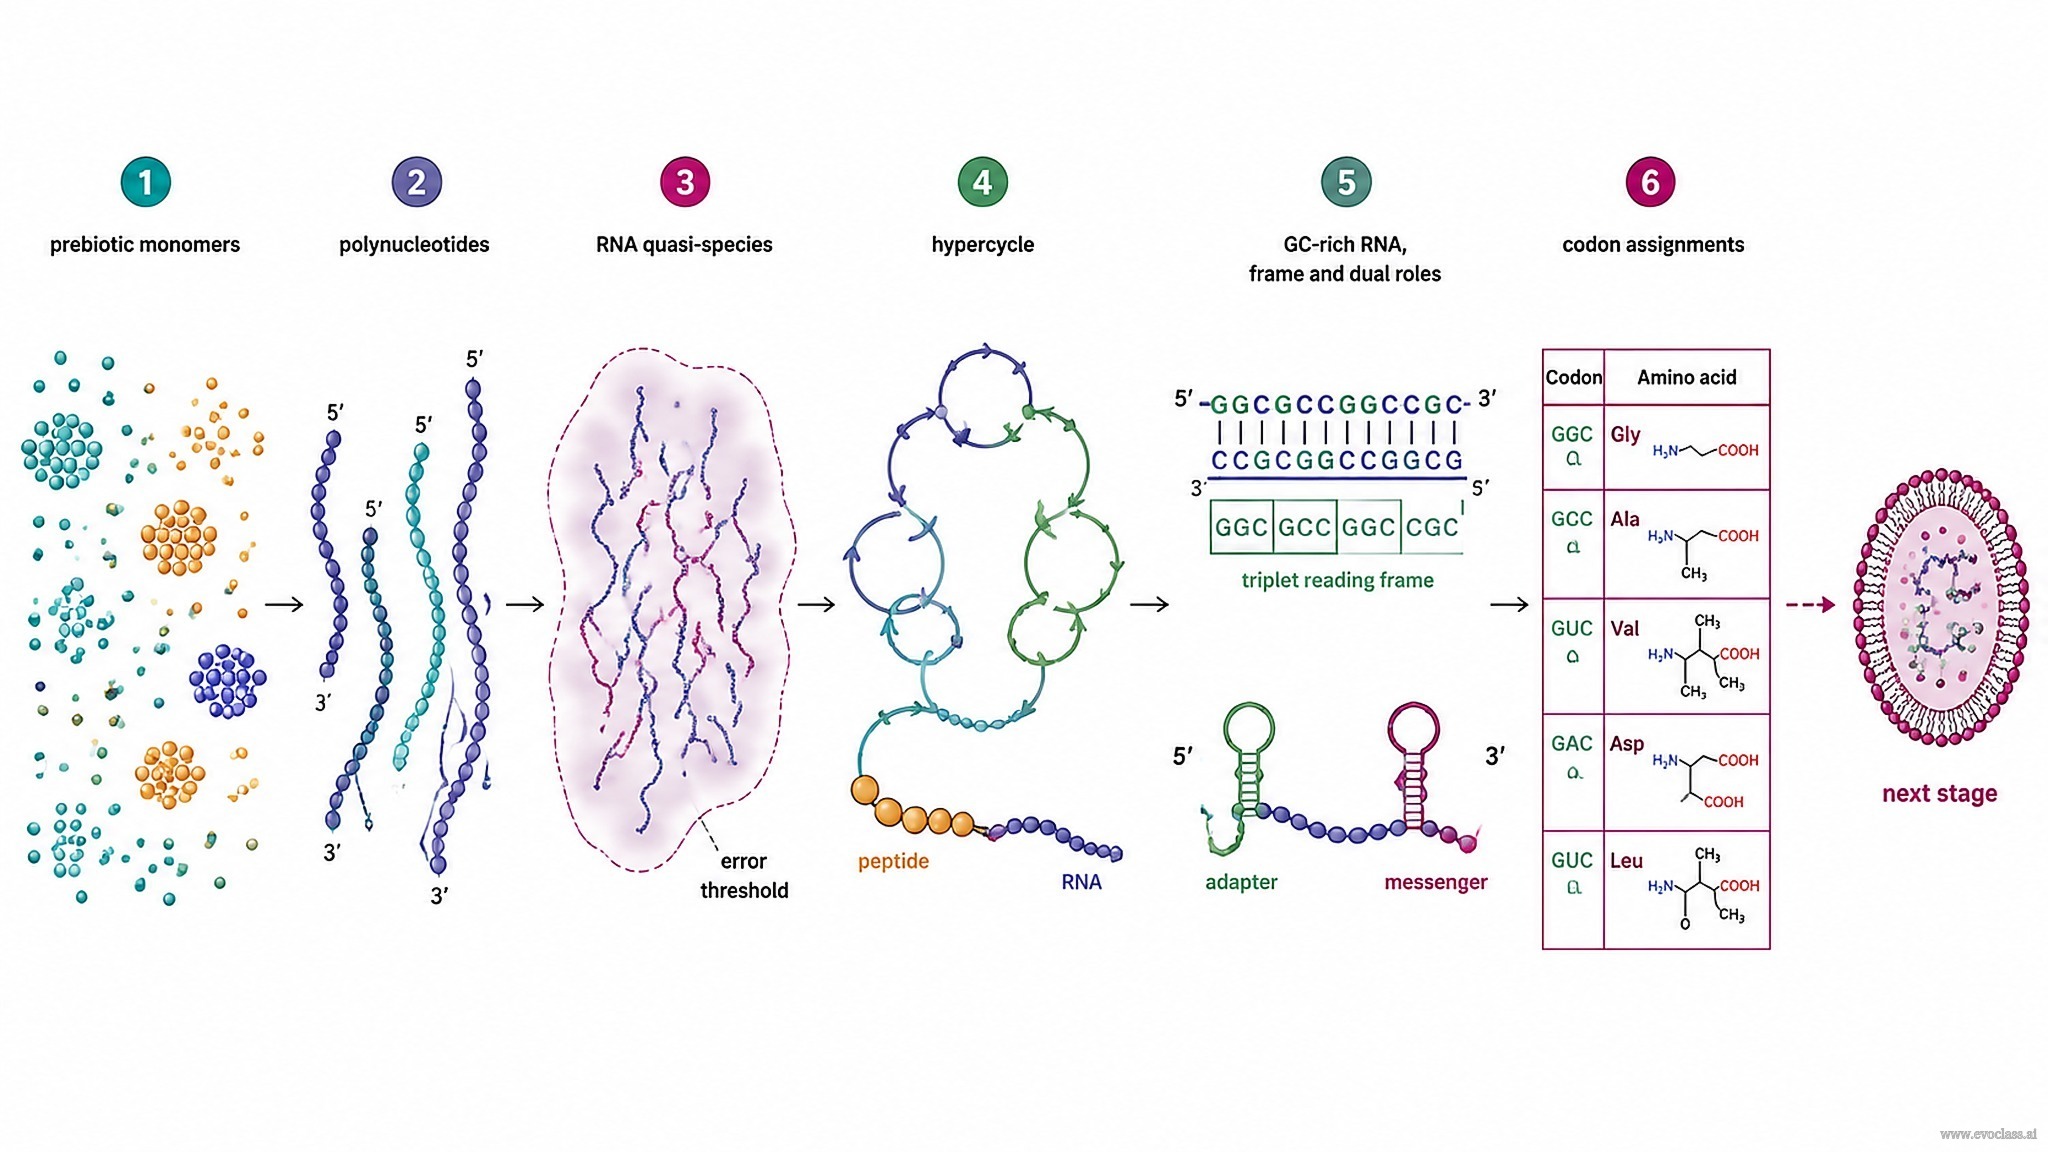
На этой странице собрана предлагаемая непрерывность от пребиотических макромолекул до первых назначений кодонов. Утверждается не то, что генетический код возник в результате одного события, а то, что серия физических и информационных шагов постепенно сужала пространство возможных назначений, пока не осталось лишь небольшое работоспособное соответствие между триплетами и аминокислотами.
1. Неслучайный исходный пул
Пребиотический синтез не даёт однородной смеси. Аминокислоты и нуклеотиды накапливаются с ярко выраженными неслучайными уровнями распространённости, и эти смещения передаются наверх: именно те мономеры, которые имеются в изобилии и устойчивы, реально доступны для захвата самыми ранними кодирующими взаимодействиями. Исходный набор, из которого должно выбираться любое назначение, задаёт доступность, а не оптимизация.
2. Полинуклеотиды как квазивиды, а не как отдельные молекулы
Ранние полинуклеотиды эволюционируют не как одна оптимизированная последовательность, а как квазивид: облако родственных вариантов, удерживаемых в мутационно-селекционном балансе. Его информационное содержание ограничено порогом ошибок — если частота мутаций на сайт слишком высока, мастер-последовательность растворяется в плоском, неинформативном распределении мутантов. Низкая точность репликации также создаёт мутантную нагрузку, подавляющую более длинные молекулы. Поэтому раннее кодирование начинается с коротких последовательностей, ограниченных порогом ошибок, а не с длинного протогенома.
3. Функциональное сопряжение и гиперциклическая организация
Сопряжение катализа РНК с функцией пептидов позволяет репликаторам, которые иначе конкурировали бы, поддерживать друг друга. Гиперциклическая организация — предлагаемый способ интеграции этих функций и ответа на стандартные возражения: нуклеация (как цикл вообще начинается), паразиты (более короткие виды, эксплуатирующие цикл, не внося вклада) и потеря информации. Сопряжение стабилизирует кодингоподобные взаимодействия ещё до появления какого-либо генома.
4. Ограничения, формирующие раннее кодирование
- GC-богатая репликация смещает доступное пространство последовательностей в сторону G/C-богатых матриц.
- Бесзапятые рамки устраняют неоднозначность сдвига рамки, поэтому лишь определённые триплетные коды могут считываться без разделителей.
- РНК двойного назначения: одна и та же молекула может служить адаптером, переносящим аминокислоту, и матрицей-посредником, которая считывается, поэтому любое назначение должно одновременно удовлетворять обеим ролям.
5. Первые назначения и дальнейший путь
В рамках этих ограничений самые ранние назначения кодонов, вероятно, включают триплеты типа GGC/GCC, сопоставленные с относительно распространёнными алифатическими аминокислотами. Переход представляет собой градиент, а не скачок: он предполагает информацию, ограниченную порогом ошибок, каталитическую замкнутость и лишь позднее — компартментализацию, которая объединяет геном внутри одной границы и даёт интегрированную протоклетку.
Итоговая цель: уметь воспроизвести предлагаемый порядок событий — макромолекулы и квазивиды, затем назначения кодонов, затем компартментализованные гиперциклы и, наконец, интегрированная протоклетка.
От макромолекул к назначению кодоновЛинейный путь непрерывности, в котором неслучайные пребиотические пулы мономеров питают пулы полинуклеотидов, сохраняющиеся как квазивиды РНК в мутационно-селекционном балансе, ограниченном порогом ошибок. Функциональное сопряжение РНК и пептидов, а также гиперциклическая организация затем поддерживают GC-богатые бесзапятые рамки с адаптерами и матрицами-посредниками двойного назначения, из которых возникают первые назначения кодонов — при этом компартментализованные гиперциклы, интегрированная протоклетка и единый геном отмечены как следующий этап, а не часть данного шага.