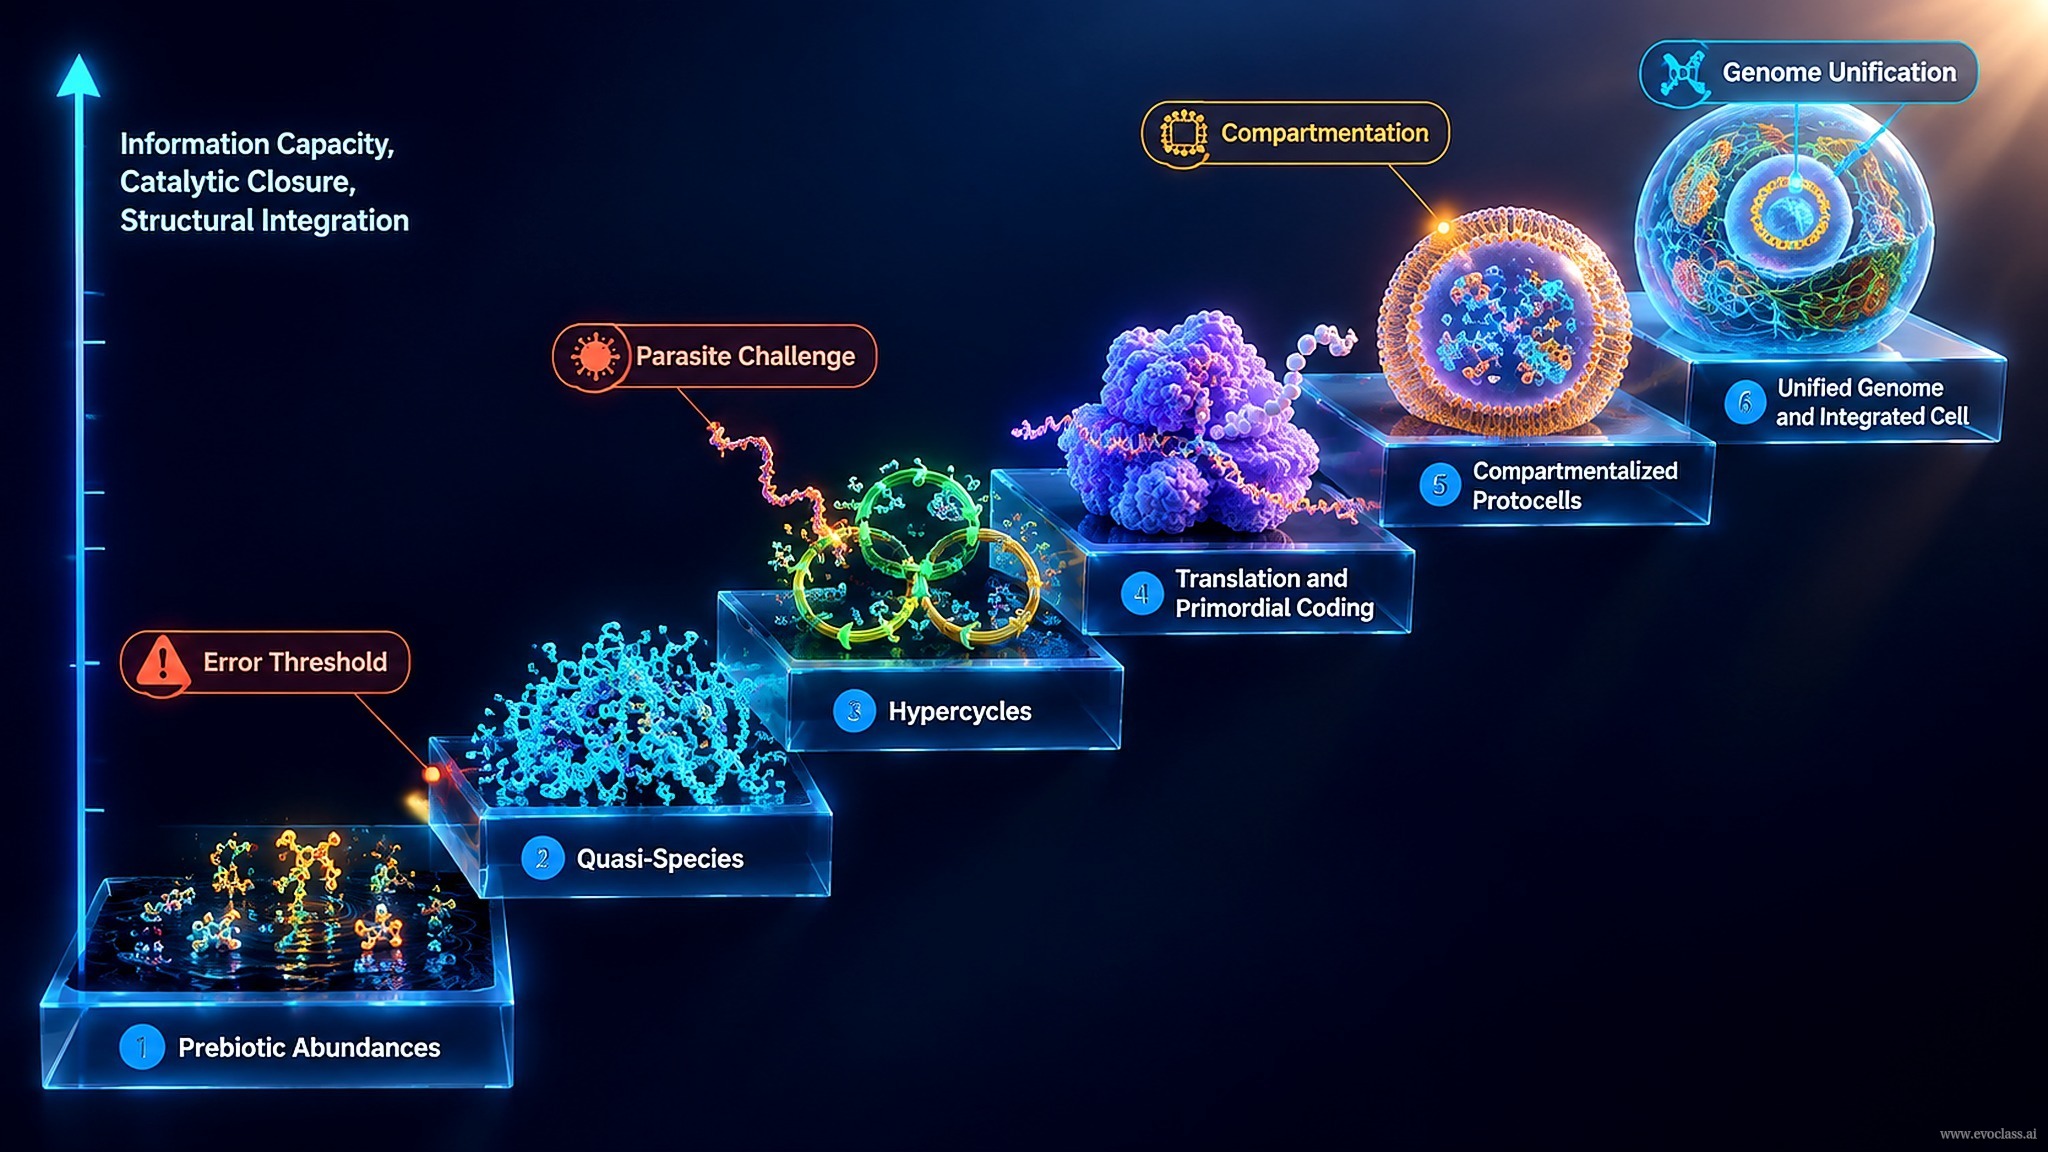
Интегрированная клетка — не отдельное возникновение жизни, а конечная точка непрерывного, поэтапного расширения молекулярной самоорганизации. Каждый этап решает конкретную информационную, каталитическую или паразитическую задачу, тогда как дарвиновский отбор продолжает действовать на молекулярном уровне.
- Этап 1 — пребиотическое сырьё: пребиотический синтез даёт аминокислоты и полинуклеотиды с нестатистическим распределением; композиционные смещения, такие как репликация, богатая GC, ограничивают самые ранние репликаторы.
- Этап 2 — квазивиды: мутации и отбор порождают популяции квазивидов, стабильное информационное содержание которых ограничено точностью репликации и порогом ошибок; q̄m, σm и vm предсказывают утрату или сохранение информации.
- Этап 3 — гиперциклическая интеграция: каталитические, автокаталитические и гиперциклические связи объединяют репликаторы в кооперативные циклы с согласованным ростом; паразиты, груз мутаций и неудачи нуклеации определяют пределы гиперциклической организации.
- Этап 4 — трансляция и первичное кодирование: РНК-адаптеры/матрицы, беззапятые рамки, ранние кодоны GGC/GCC и бескрибосомный перенос пептидов расширяют гиперциклы до кодируемых функциональных полипептидов.
- Этап 5 — компартментализация: компартментализованные гиперциклы и протоклетки локализуют сопряжённую репликацию и трансляцию, подавляют паразитическую эксплуатацию и создают единицы отбора более высокого уровня в реалистичных граничных условиях.
- Этап 6 — объединение генома: множественные гиперциклические репликаторы консолидируются в интегрированный геном; корректура ДНК, рекомбинация и повышенная точность сдвигают порог ошибок и допускают более крупные интегрированные клетки.
Принцип непрерывности: переходы — это не отдельные возникновения, а последовательные увеличения каталитической замкнутости, информационной ёмкости и структурной интеграции; такие режимы отказа, как катастрофа ошибок, паразитическая эксплуатация и отказ совместной функции, обозначают границы, которые должны преодолеть последующие этапы.
Формальный синтез с теорией отбора: анализ неподвижных точек и якобиана, предельные циклы, бифуркация Хопфа и режимы сопряжения описывают, когда интеграция устойчива, а когда она разрушается. Мутагенез фага Qβ иллюстрирует распределения мутантов и порог ошибок, а игра в эволюцию предложений показывает, как точность ограничивает информацию; корректура ДНК и рекомбинация позже ослабляют это ограничение, помогая объяснить, как единые геномы могли возникнуть из более ранних РНК/белковых гиперциклов.
Непрерывность: от полинуклеотидов к интегрированной клеткеШестиэтапная лестница от пребиотических соединений к единому геному: восходящая ось отмечает рост информационной ёмкости, каталитической замкнутости и структурной интеграции; выноски указывают на порог ошибок, проблему паразитов, компартментализацию и объединение генома.