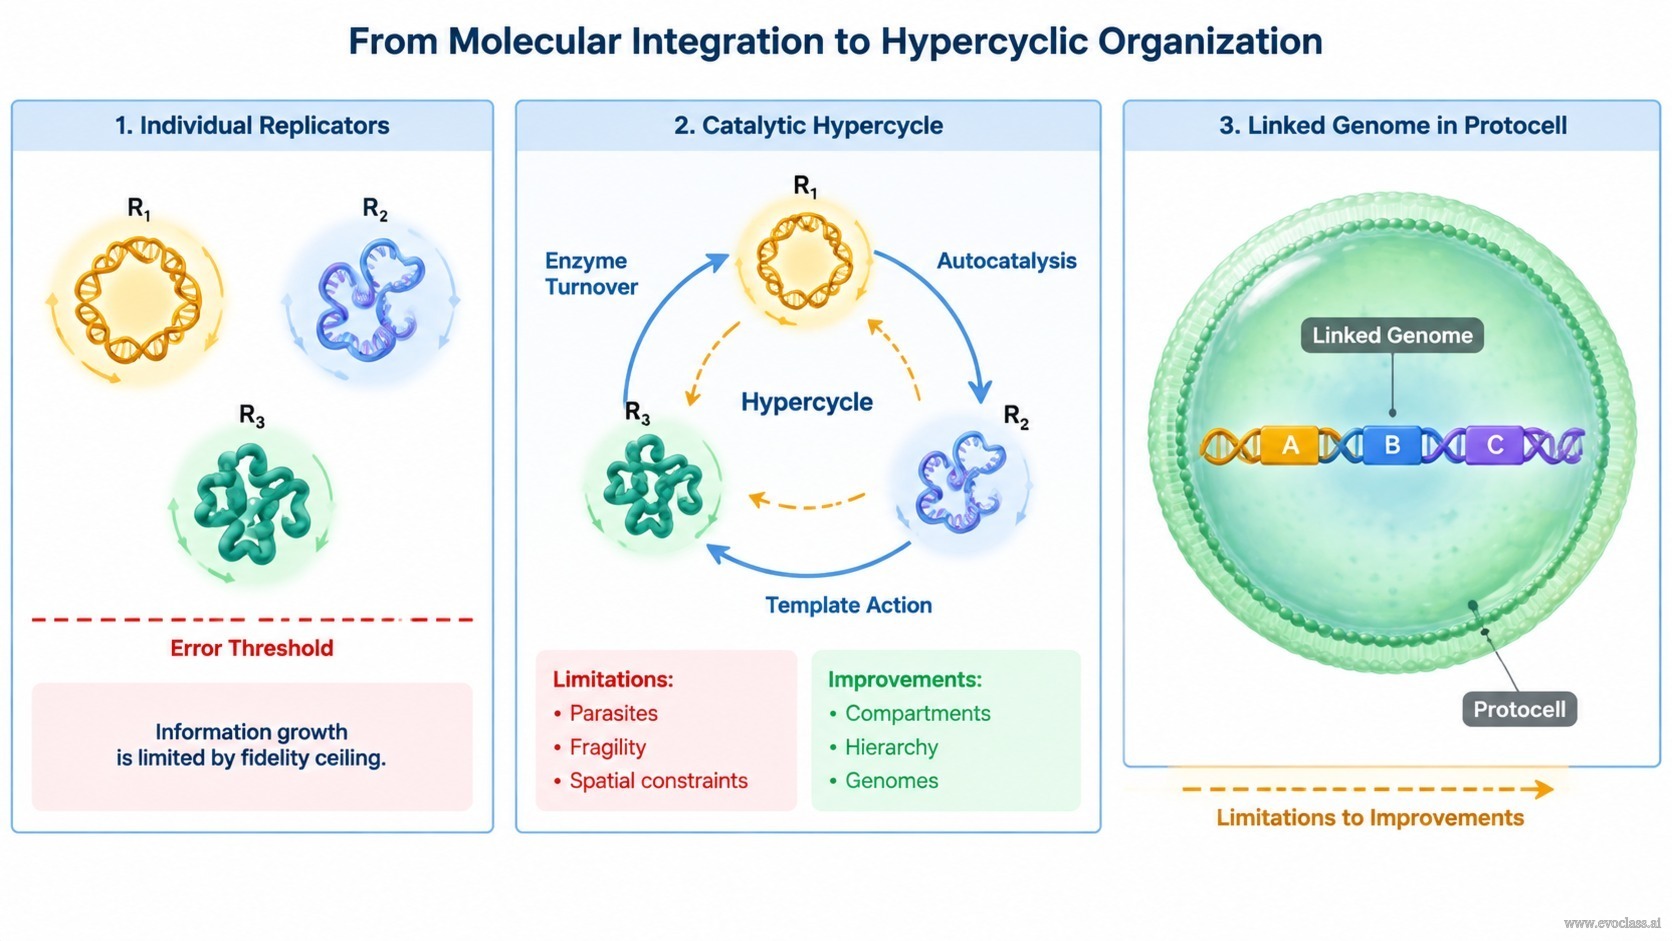
สไลด์นี้นำเสนอการเปลี่ยนแปลงครั้งสำคัญในวิวัฒนาการระดับโมเลกุลระยะแรก เมื่อหน่วยที่จำลองตัวเองได้หนึ่งหน่วยไม่สามารถบรรทุกข้อมูลได้เพียงพออีกต่อไป การคัดเลือกตามธรรมชาติอาจเอื้อต่อ การรวมตัวของหน่วยที่จำลองตัวเองได้หลายหน่วย สาเหตุก็คือ ขีดจำกัดความผิดพลาด ความแม่นยำในการคัดลอกของตัวจำลองกำหนดขีดจำกัดสูงสุดของความยาวลำดับที่สามารถคงไว้ได้ท่ามกลางการเสื่อมสลายจากการกลายพันธุ์ เมื่อเกินขีดจำกัดนั้น การผลิตข้อมูลเพิ่มขึ้นในหน่วยเดียวจะกลายเป็นผลเสียต่อตัวเอง เพราะสำเนาส่วนใหญ่ผิดพลาดและลำดับต้นแบบสูญหายไป
การจัดระบบไฮเปอร์ไซเคิล แก้ข้อจำกัดนี้ด้วยการเชื่อมโยงหน่วยที่จำลองตัวเองได้หลายหน่วยเข้าเป็นเครือข่ายตัวเร่งปฏิกิริยาร่วมมือแบบปิด ในเครือข่ายนี้แต่ละหน่วยสนับสนุนการจำลองตัวเองของหน่วยอื่นผ่านวัฏจักรตัวเร่งปฏิกิริยา การเร่งปฏิกิริยาด้วยตนเอง การทำงานของแม่แบบ และการหมุนเวียนเอนไซม์ กลุ่มทั้งหมดต่างหากที่กลายเป็น หน่วยของการคัดเลือก ดังนั้นการรวมตัวเชิงหน้าที่จึงไม่จำเป็นต้องมียีนเชื่อมต่อกันทางกายภาพตั้งแต่แรก เพียงแต่ผลิตภัณฑ์ตัวเร่งปฏิกิริยาของพวกมันป้อนกลับเข้าสู่การจำลองตัวเองของสมาชิกในเครือข่ายก็เพียงพอ
ทำไมการเชื่อมโยงเชิงหน้าที่จึงมาก่อน
ก่อนที่จีโนมจะดำรงอยู่ในฐานะโครงสร้างที่เชื่อมต่อกัน การคัดเลือกสามารถกระทำต่อกลุ่มของตัวจำลองที่ร่วมมือกันเชิงตัวเร่งปฏิกิริยา ไฮเปอร์ไซเคิลเปลี่ยนคู่แข่งที่เป็นอิสระให้กลายเป็นเครือข่ายร่วมมือที่สามารถรักษาข้อมูลโดยรวมได้มากกว่าสมาชิกใด ๆ เพียงลำพัง สิ่งนี้อาจเปิดเส้นทางไปสู่หน้าที่ที่เกี่ยวข้องกับการแปลรหัสพันธุกรรมในยุคแรกด้วย เพราะหน่วยคล้ายอาร์เอ็นเอหลายหน่วยสามารถมีบทบาทเชิงตัวเร่งปฏิกิริยาหรือการเข้ารหัสที่แตกต่างกัน โดยไม่มีหน่วยใดเกินขีดจำกัดความแม่นยำของตน
จากการรวมตัวเชิงหน้าที่สู่การรวมตัวเชิงโครงสร้าง
เมื่อจีโนมวิวัฒน์ การเชื่อมโยงเชิงหน้าที่อาจถูกแทนที่ด้วยการรวมตัวเชิงโครงสร้างของยีนอย่างสมบูรณ์ แม้แต่เซลล์ที่รู้จักกันว่าดั้งเดิมที่สุดก็ยังมีจีโนมที่เป็นหน่วยเชิงโครงสร้าง การเชื่อมโยงเชิงโครงสร้างทำให้กลุ่มที่ร่วมมือกันกลายเป็นหน่วยเดียวที่ถ่ายทอดทางพันธุกรรมได้ ลดการพึ่งพาการเชื่อมโยงเชิงตัวเร่งปฏิกิริยาผ่านการแพร่กระจาย และสามารถปกป้องยีนที่ร่วมมือกันจากการสูญหายหรือถูกใช้ประโยชน์แยกจากกัน
เหตุผลจากสเปกตรัมของตัวกลายพันธุ์
คำถามสำคัญคือ เหตุใดจึงใช้การจัดระบบไฮเปอร์ไซเคิลของยีนกลายพันธุ์เดี่ยวจำนวนมาก แทนที่จะเป็นจีโนมเดียวที่เติบโตอย่างต่อเนื่อง สำหรับชุดของยีน 100 ยีน จำนวนตัวกลายพันธุ์ที่ผิดพลาด k ตำแหน่งคือ
ข้อจำกัดและการปรับปรุง
การจัดระบบไฮเปอร์ไซเคิลไม่ใช่ทางออกสุดท้าย มันอาจเป็นทางอ้อม เปราะบางเชิงพลวัต เสี่ยงต่อตัวจำลองแบบปรสิตหรือเห็นแก่ตัว และต้องพึ่งพาข้อจำกัดเชิงพื้นที่หรือการแบ่งช่อง การปรับปรุงได้แก่ การแบ่งช่อง ไฮเปอร์ไซเคิลแบบมีลำดับชั้น และการก่อตัวของจีโนมเชิงโครงสร้างในที่สุด การเปลี่ยนแปลงเหล่านี้ทำให้ความร่วมมือมีเสถียรภาพและลดการพึ่งพาการเชื่อมโยงเชิงตัวเร่งปฏิกิริยาผ่านการแพร่กระจาย
สาระสำคัญ: ไฮเปอร์ไซเคิลเป็นหลักการระดับกลางของการจัดระบบตัวเองตามธรรมชาติ มันเชื่อมโยงหน่วยที่จำลองตัวเองได้ผ่านความร่วมมือเชิงตัวเร่งปฏิกิริยา เพื่อให้กลุ่มสามารถรักษาข้อมูลได้เกินขีดจำกัดของตัวจำลองตัวเองตัวใดตัวหนึ่ง และเป็นการปูทางไปสู่จีโนมที่รวมตัวกันเชิงโครงสร้าง
จากการรวมตัวระดับโมเลกุลสู่การจัดระบบไฮเปอร์ไซเคิลระยะที่ 1 แสดงหน่วยที่จำลองตัวเองได้แต่ละหน่วยซึ่งถูกจำกัดด้วยเพดานความแม่นยำ ระยะที่ 2 แสดงวัฏจักรตัวเร่งปฏิกิริยา การเร่งปฏิกิริยาด้วยตนเอง การทำงานของแม่แบบ และการหมุนเวียนเอนไซม์ที่ก่อตัวเป็นเครือข่ายไฮเปอร์ไซเคิลแบบปิด ระยะที่ 3 แสดงการเชื่อมโยงเชิงหน้าที่ที่ถูกแทนที่ด้วยจีโนมที่เชื่อมต่อกันเชิงโครงสร้างภายในโปรโตเซลล์ โดยมีลูกศรสีเหลืองอำพันเส้นประแสดงถึงข้อจำกัดและการปรับปรุงที่ stabilizing