8
ขีดจำกัดขององค์กรไฮเปอร์ไซเคิลและพลวัตของปรสิต
HYC-1979Lesson 3: Error Threshold and Early Replicative Units
00:00

องค์กรไฮเปอร์ไซเคิลสามารถรวมหน่วยตัวเร่งปฏิกิริยาหลายหน่วยเข้าเป็นเครือข่ายที่จำลองตัวเองได้เพียงหนึ่งเดียว แต่ว่าการรวมตัวนั้นมีขอบเขต ภายใต้ พลวัตแบบ mass-action ที่องค์กรคงที่ไฮเปอร์ไซเคิลต้องเผชิญแรงกดดันที่แตกต่างกันสองอย่างพร้อมกัน: ปรสิตที่จำลองตัวเองได้ ที่เก็บตัวเร่งปฏิกิริยาไปโดยไม่คืนกลับ และ ภาระของมิวแทนต์เชิงการจัดหมู่ ที่พองตัวขึ้นอย่างรวดเร็วเมื่อจีโนมยาวขึ้น ปัจจัยทั้งสองนี้ร่วมกันกำหนดขีดจำกัดหลักขององค์กรไฮเปอร์ไซเคิล

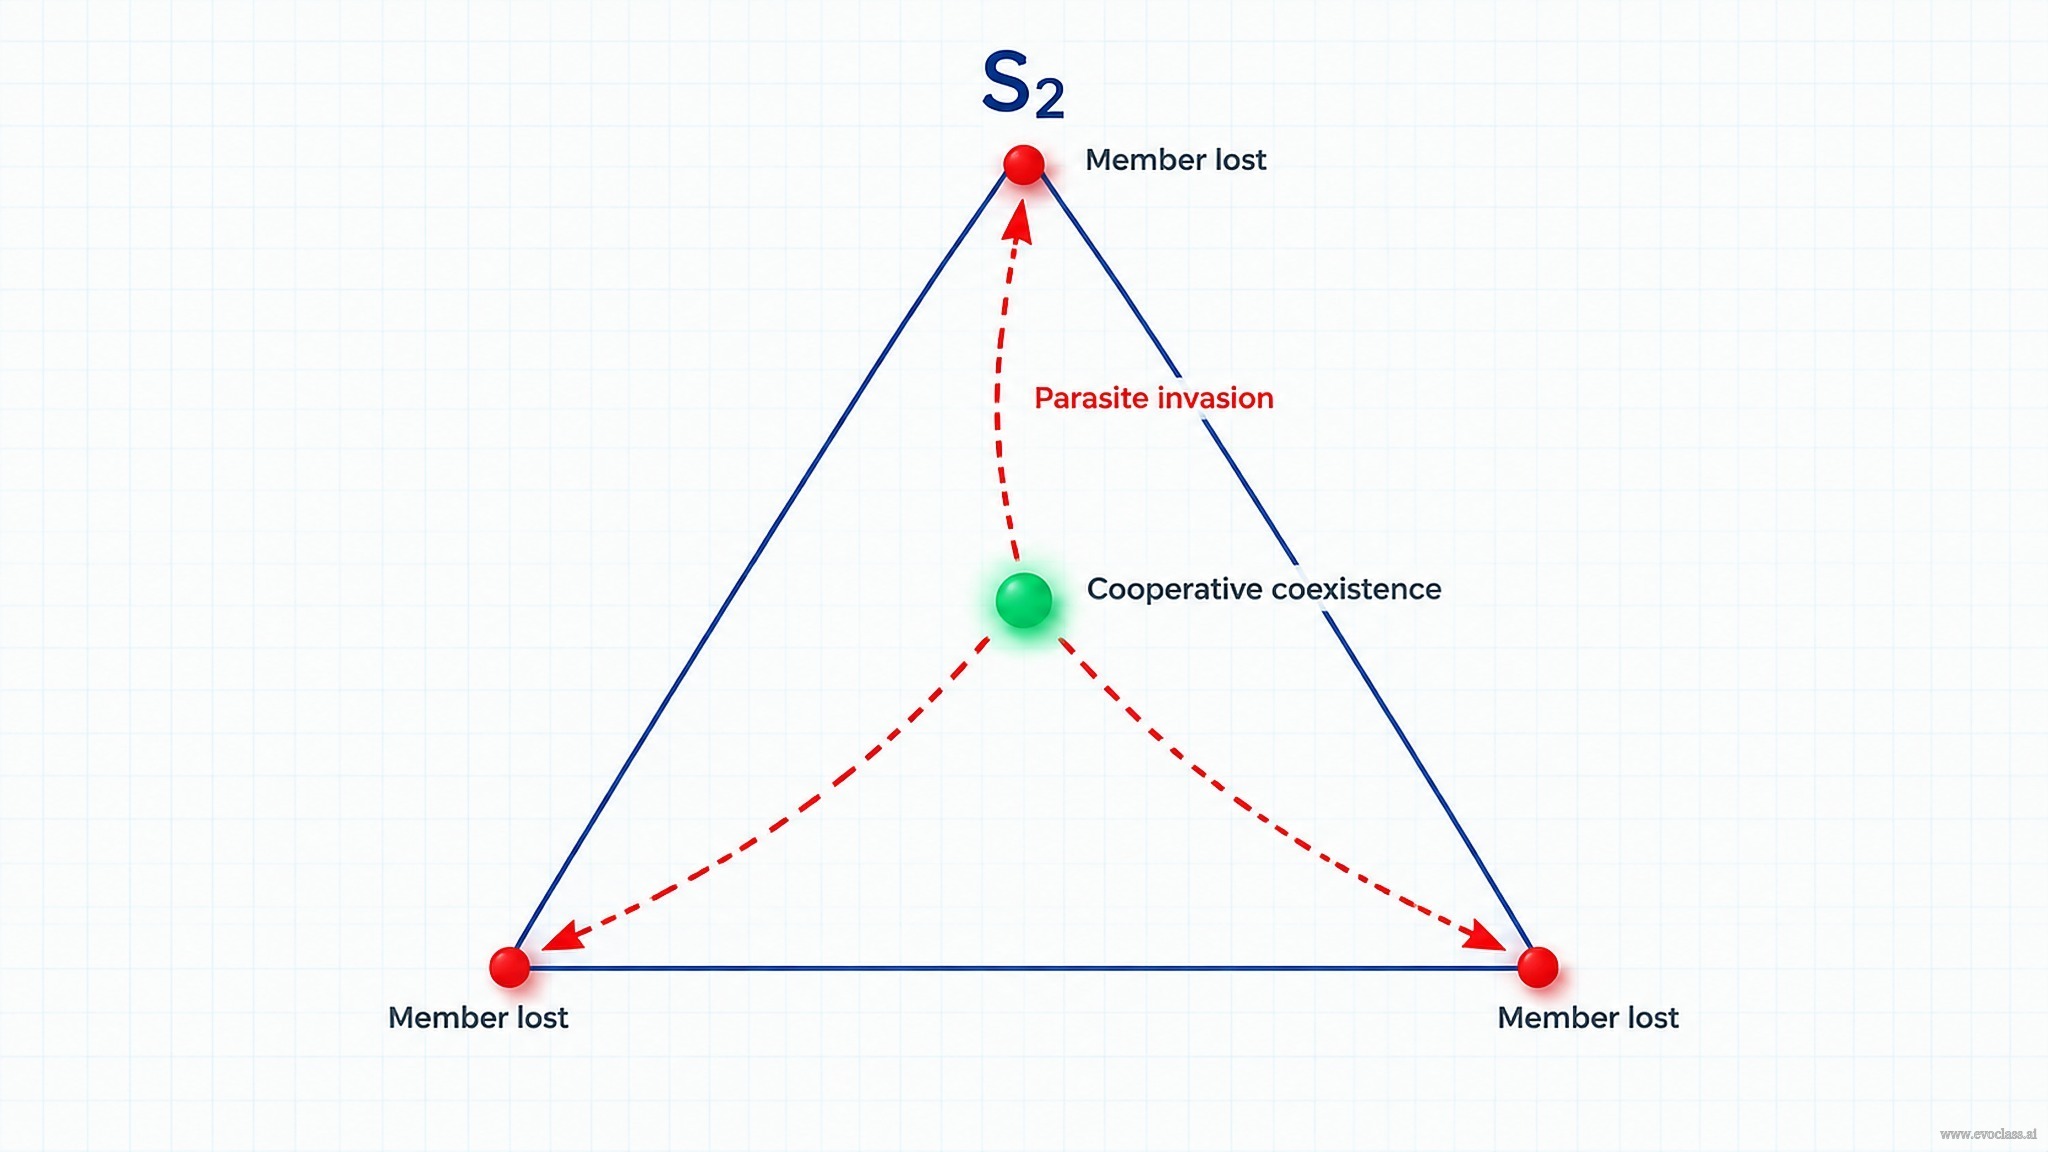
ซิมเพล็กซ์ความเข้มข้น S2: การอยู่ร่วมกันภายใน vs. การล่มสลายที่มุมการรุกรานของปรสิตผลักสภาวะร่วมมือภายในออกสู่ขอบเขตจุดตรึงที่มุมมุมที่ปรสิตครอบงำมุมของสมาชิกวัฏจักรภายใน: สภาวะร่วมมือคำอธิบายสัญลักษณ์ภายใน: สมาชิกทั้งหมดอยู่ร่วมกันมุม: สมาชิกหนึ่งตัวสูญหายการเลื่อนออกด้านนอกที่เกิดจากปรสิตขีดเริ่มการรุกรานẋ > 0 เมื่อ c0 < k / kAปรสิตถูกควบคุมẋ < 0 เมื่อ c0 > k / kAสมาชิกสูญหาย — ปรสิตรุกราน

ปรสิตบนซิมเพล็กซ์ความเข้มข้น

พิจารณาระบบสององค์ประกอบซึ่งมีปรสิต และสมาชิกไฮเปอร์ไซเคิล x ใช้ความเข้มข้นรวมร่วมกัน ปรสิตเพิ่มจำนวนแบบออโตแคตาไลติก (ค่าคงที่อัตรา ) และถูกค้ำจุนด้วยตัวเร่งปฏิกิริยาที่วัฏจักรจัดหาให้ ขณะที่สมาชิก x ถูกจำลองผ่านการเชื่อมโยง พลวัตแบบองค์กรคงที่ (T.13.8) เขียนได้ว่า:

เครื่องหมายของ ẋ แยกสองระบอบที่ขีดเริ่ม : สำหรับ สมาชิกเติบโต และปรสิตถูกควบคุม สำหรับ สมาชิกเสื่อมสลาย และปรสิตรุกราน นี่คือคำกล่าวเชิงปริมาณว่าทำไมปรสิตที่จำลองตัวเองได้จึง destabilize ไฮเปอร์ไซเคิลได้

สภาวะที่มุมกับสภาวะภายใน

ไฮเปอร์ไซเคิลมีจุดตรึงบน มุมของซิมเพล็กซ์ความเข้มข้น โดยแต่ละจุดสอดคล้องกับการสูญเสียองค์ประกอบหนึ่งอย่าง และมี สภาวะภายใน ที่แสดงถึงการอยู่ร่วมกันแบบร่วมมือของสมาชิกทั้งหมด สภาวะภายในมีผลผลิตแต่เปราะบาง มันคือบริเวณที่การรุกรานของปรสิตสามารถผลักวิถีออกสู่ขอบเขต ซึ่งสมาชิกหนึ่งตัวจะสูญหายอย่างถาวร

การเติบโตของจีโนมมีต้นทุนเชิงการจัดหมู่สูง

การทำให้จีโนมยาวขึ้นเพิ่มภาระการกลายพันธุ์อย่างรวดเร็ว สำหรับลำดับความยาว 100 มี = (100 เลือก k) มิวแทนต์ที่ผิดพลาด k ตำแหน่ง: 100 มิวแทนต์ผิดพลาดหนึ่งตำแหน่ง, 4,950 มิวแทนต์ผิดพลาดสองตำแหน่ง, 161,700 มิวแทนต์ผิดพลาดสามตำแหน่ง เป็นต้น เมื่อมีมิวแทนต์ดังกล่าว n ตัวโดยที่ n ≪ จำนวนการจัดหมู่ของมันเติบโตเป็น ( เลือก n) ≈ ⁿ / n! นี่คือเหตุผลว่าทำไมจีโนมเดียวที่เติบโตอย่างต่อเนื่องจึงเสียเปรียบเมื่อเทียบกับองค์กรไฮเปอร์ไซเคิลของยีนมิวแทนต์เดี่ยว: ความร่วมมือกระจายฟังก์ชันตัวเร่งปฏิกิริยา เพื่อให้ไม่มีลำดับยาวเพียงหนึ่งเดียวต้องรับภาระมิวแทนต์ทั้งหมด

ทำไมโครงสร้างจึงสำคัญ
ขีดจำกัดเหล่านี้ได้มาจากสมมติฐานของการคัดเลือกแบบผสมดีและองค์กรคงที่ หากไม่มีโครงสร้างเชิงพื้นที่หรือแบบช่อง compart เพิ่มเติม ไฮเปอร์ไซเคิลขนาดใหญ่จะเผชิญแรงกดดันจากปรสิตและการกลายพันธุ์ที่เพิ่มขึ้นเรื่อย ๆ และสภาวะร่วมมือภายในไม่สามารถคงอยู่ได้อย่างไม่มีกำหนด