ใน ไฮเปอร์ไซเคิลที่เชื่อมโยงกับการแปลรหัสแต่ละแม่แบบ RNA ไม่เพียงถูกจำลองแบบเท่านั้น แต่ยังถูกแปลรหัสเป็นพอลิเพปไทด์ที่จับกลับไปยัง RNA ผ่านการเกิดคอมเพล็กซ์แบบผันกลับได้ ขั้นตอนการจับนี้ ซึ่งมีค่าคงที่การแยกตัว
เหตุใดความเข้มข้นรวมต่ำจึงทำให้จลนศาสตร์ง่ายขึ้น
เมื่อความเข้มข้นรวมของ RNA และพอลิเพปไทด์มีค่าน้อยกว่ามากเมื่อเทียบกับ
- สปีชีส์อิสระมีบทบาทหลัก [complex] มีค่าน้อยกว่า [RNA] และ [polypeptide] มาก ดังนั้นพลวัตจึงถูกขับเคลื่อนโดยสปีชีส์อิสระมากกว่าสารที่จับกันแล้ว
- ความเข้มข้นของคอมเพล็กซ์เป็นแบบทวิเชิงเส้น [complex] ≈ [RNA][polypeptide]/Kdกล่าวคือเป็นสัดส่วนกับ ผลคูณ ของความเข้มข้นอิสระทั้งสอง แทนที่จะเป็นสัดส่วนกับตัวใดตัวหนึ่งเพียงลำพัง
- ฟลักซ์ตัวเร่งปฏิกิริยาอันดับสอง เนื่องจากคอมเพล็กซ์เป็นตัวเร่งปฏิกิริยา ฟลักซ์ที่ถูกสื่อกลาง kcat[RNA][polypeptide]/Kd ≈ (kcat/Kd)[RNA][polypeptide] จึงเป็นพจน์กฎการออกฤทธิ์ของมวลอันดับสอง ซึ่งเป็นรูปแบบการเชื่อมโยงที่ไฮเปอร์ไซเคิลมูลฐานใช้พอดี
ค่าคงที่อัตราเชิงประสิทธิผลและโครงสร้างที่ยังคงเดิม
ค่าคงที่การรวมตัวและค่าคงที่ตัวเร่งปฏิกิริยาเข้ามาเกี่ยวข้องกันในรูปของผลรวมเท่านั้น จึงสามารถรวมเข้าเป็นค่าคงที่อัตราเชิงประสิทธิผลค่าเดียว keff = kcat/Kdผลลัพธ์ที่ได้คือไฮเปอร์ไซเคิลมูลฐานที่มีค่าสัมประสิทธิ์ถูกปรับมาตรฐานใหม่ ที่สำคัญคือโครงสร้างการเชื่อมโยงแบบวัฏจักรยังคงอยู่ สมาชิกแต่ละตัวยังคงเร่งปฏิกิริยาการจำลองแบบของสมาชิกตัวถัดไปรอบวง และการแปลรหัสไม่ได้นำการเชื่อมโยงเชิงพลวัตแบบอิสระใด ๆ เข้ามาในขีดจำกัดนี้ เพียงแต่ปรับขนาดอัตราใหม่เท่านั้น นี่คือเหตุผลที่การวิเคราะห์จุดตรึง เสถียรภาพ วัฏจักรลิมิต และขีดจำกัดความผิดพลาดที่พัฒนาขึ้นสำหรับไฮเปอร์ไซเคิลมูลฐานสามารถนำมาใช้โดยตรงกับไฮเปอร์ไซเคิลที่เชื่อมโยงกับการแปลรหัสได้ทุกครั้งที่เงื่อนไขเจือจางยังคงเป็นจริง ซึ่งเป็นสิ่งที่ทำให้การลดรูปนี้มีประโยชน์อย่างยิ่งต่อการให้เหตุผลเรื่องการคัดเลือกและขีดจำกัดความผิดพลาด
จุดที่การลดรูปใช้ไม่ได้
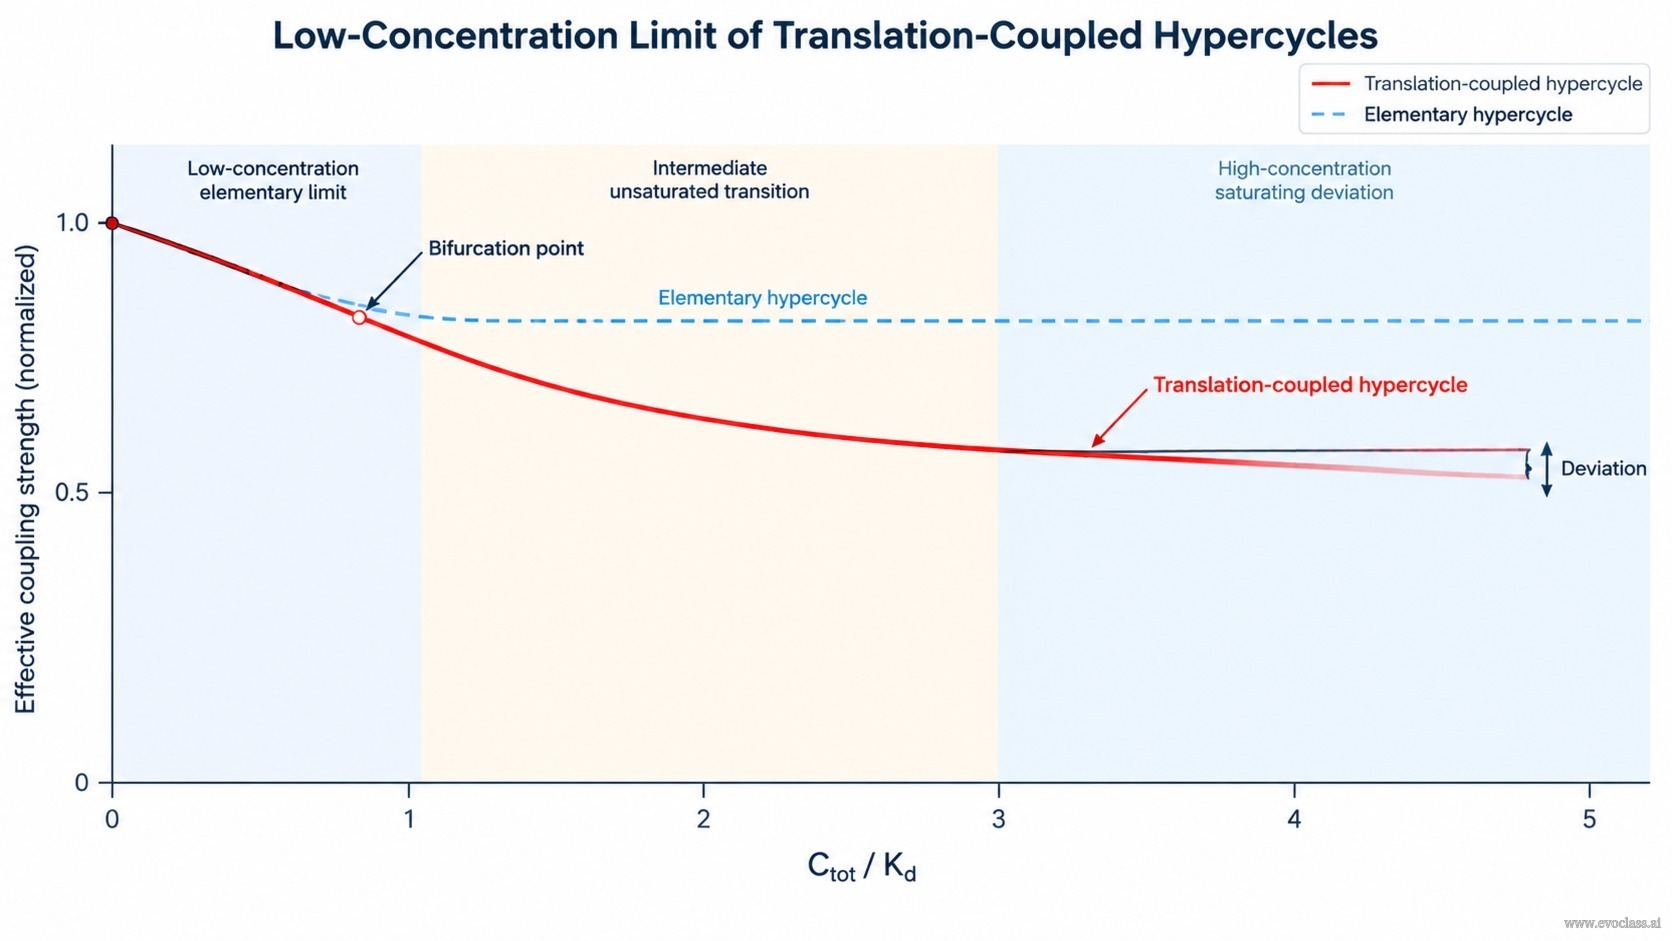
การลดรูปนี้เป็นแบบเชิงเส้นกำกับ ไม่ใช่ความเท่ากันทุกประการ จะยังคงใช้ได้ก็ต่อเมื่อการเกิดคอมเพล็กซ์ยังไม่อิ่มตัว เมื่อความเข้มข้นรวมเพิ่มขึ้นเข้าหา
ขีดจำกัดความเข้มข้นต่ำของไฮเปอร์ไซเคิลที่เชื่อมโยงกับการแปลรหัสความแรงของการเชื่อมโยงเชิงประสิทธิผลของไฮเปอร์ไซเคิลที่เชื่อมโยงกับการแปลรหัส เขียนกราฟเทียบกับความเข้มข้นรวมไร้มิติ C_tot/K_d ที่ค่าต่ำ เส้นทึบของระบบที่เชื่อมโยงกับการแปลรหัสจะรวมเข้ากับเส้นประค่าอ้างอิงไฮเปอร์ไซเคิลมูลฐาน เพราะคอมเพล็กซ์ RNA-พอลิเพปไทด์ที่เบาบางและยังไม่อิ่มตัวให้ฟลักซ์ตัวเร่งปฏิกิริยาแบบทวิเชิงเส้นที่มีค่าคงที่เชิงประสิทธิผล k_cat/K_d เมื่อความเข้มข้นเพิ่มขึ้น คอมเพล็กซ์จะอิ่มตัวและเส้นโค้งทั้งสองจะแยกออกจากกัน