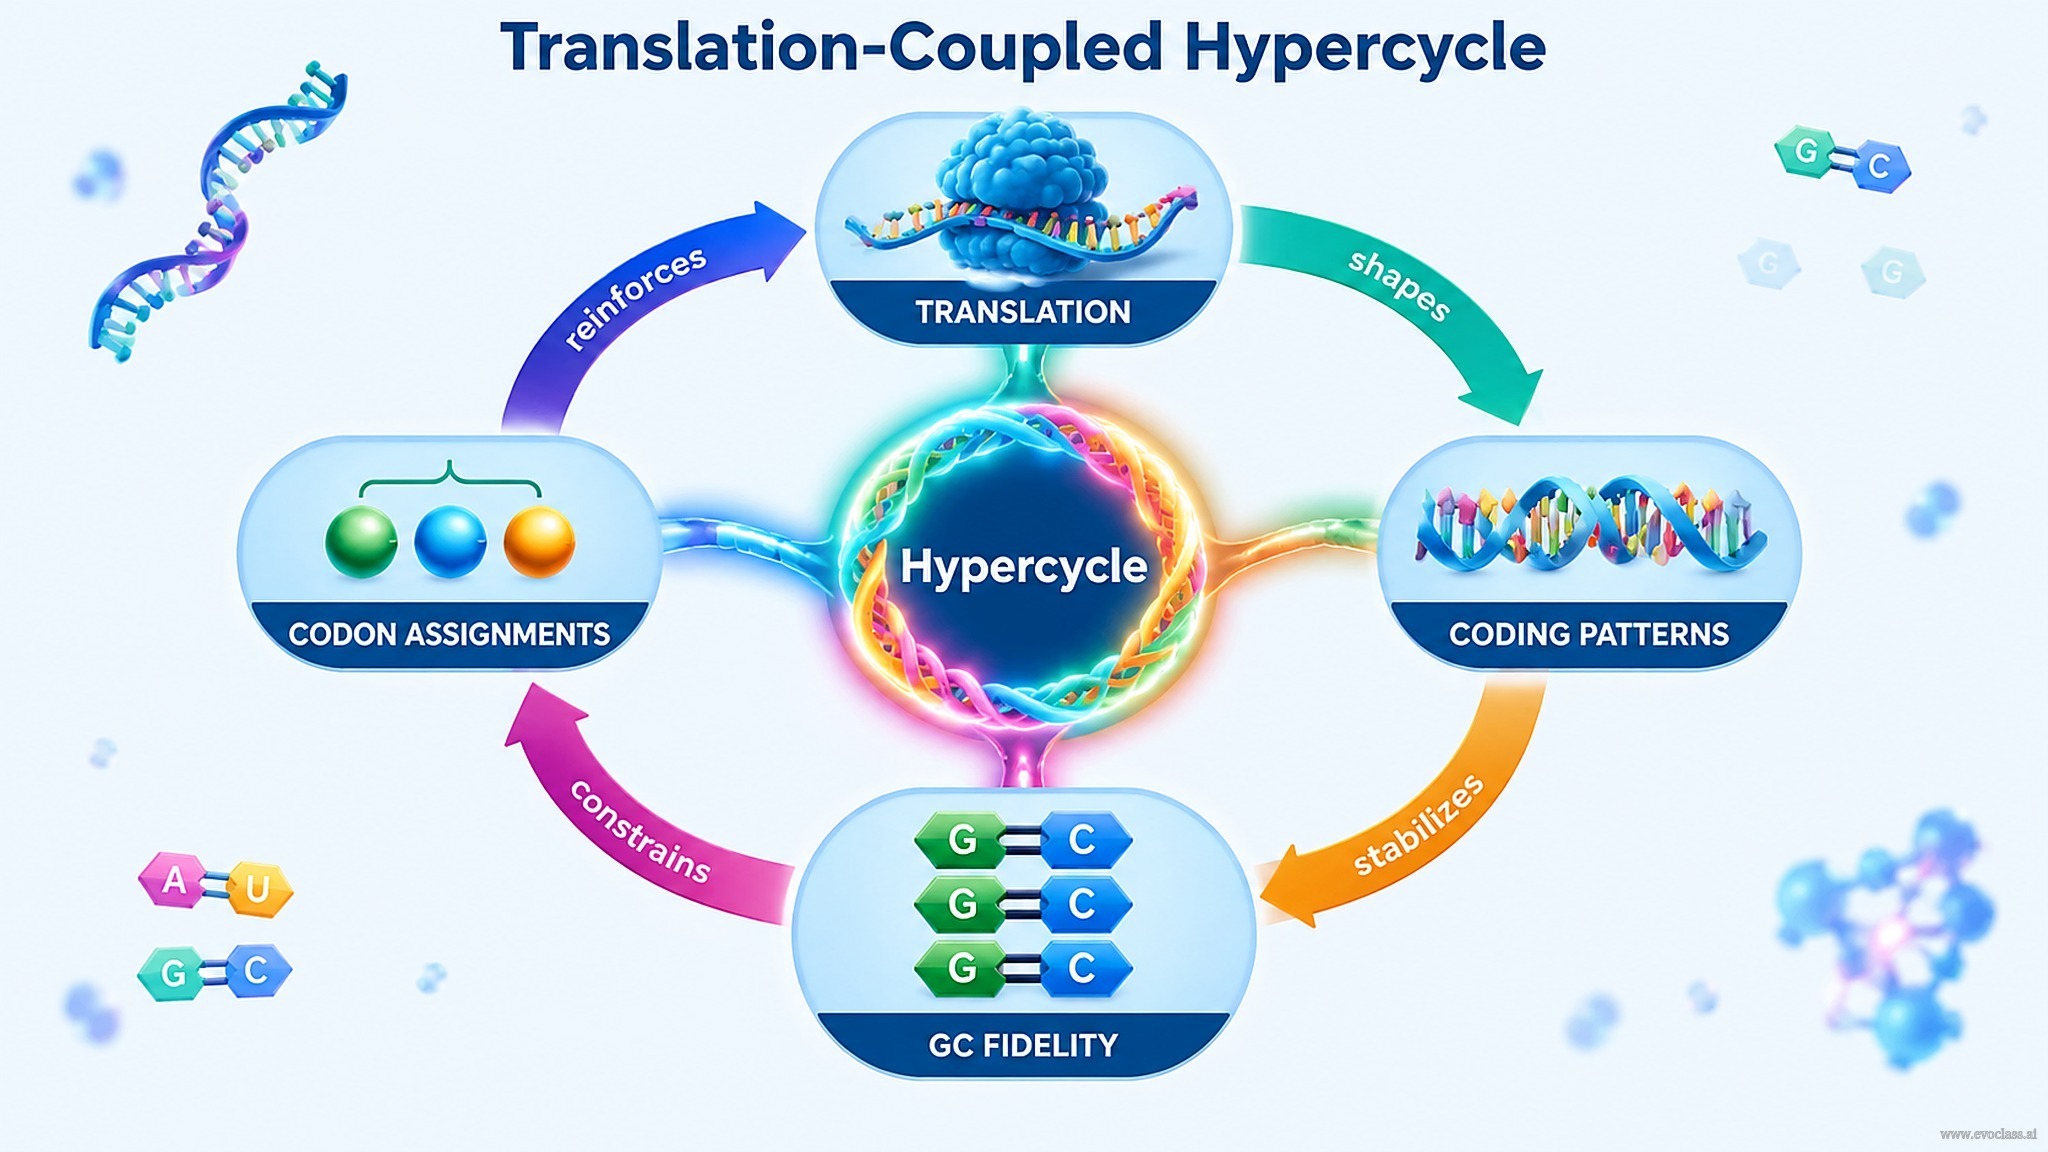
หน้านี้ผสานสามแนวคิดที่เคยแยกจากกันให้เป็นภาพรวมเดียวของสภาพแวดล้อมก่อนกำเนิดสิ่งมีชีวิต: พลวัตไฮเปอร์ไซเคิลที่เชื่อมโยงกับการแปลรหัส, ตรรกะการเข้ารหัสดั้งเดิมและ เคมีของ RNA ที่อุดมด้วย GC การสังเคราะห์นี้แสดงให้เห็นว่าไฮเปอร์ไซเคิลที่สมจริงไม่สามารถประกอบขึ้นจากเพียงพจน์การจำลองตัวเองและการแปลรหัสที่ใช้ร่วมกันได้ แต่ต้องอาศัยความเชื่อมโยงเชิงตัวเร่งปฏิกิริยาแบบปิดระหว่างหน้าที่ที่เข้ารหัสโดย RNA
จากกลุ่มโมเลกุลที่เสื่อมสลายสู่ความเชื่อมโยงเชิงตัวเร่งปฏิกิริยาแบบปิด
แบบจำลองขั้นต่ำที่สาย RNA ชุดหนึ่งเข้ารหัสเรพลิเคสหนึ่งชนิดและหน้าที่ซินทีเทสสี่ชนิดแสดงให้เห็นปัญหา เมื่อพจน์การจำลองตัวเองและการแปลรหัสใช้ร่วมกัน พจน์เหล่านั้นจะยุบรวมเป็นฟังก์ชันการเจริญเติบโตเดียวที่ใช้ร่วมกัน กลุ่มโมเลกุลจึงเสื่อมสลายจากการแข่งขันภายใน องค์ประกอบที่ขาดหายไปคือ ความเชื่อมโยงเชิงตัวเร่งปฏิกิริยาแบบปิด กล่าวคือ หน้าที่ที่เข้ารหัสโดย RNA แต่ละอย่างต้องมีส่วนช่วยในการจำลองตัวเองหรือการแปลรหัสของหน้าที่อื่น เพื่อให้กลุ่มโดยรวมดำรงอยู่เป็นไฮเปอร์ไซเคิลแทนที่จะเป็นเพียงกลุ่มแม่แบบที่แข่งขันกัน
การเข้ารหัสดั้งเดิมและการอ่านรหัสแบบไม่มีไรโบโซม
การเข้ารหัสดั้งเดิมต้องแก้ปัญหาความสอดคล้องของเฟรม การอ่านรหัสแบบไม่มีเครื่องหมายคั่น และการถ่ายโอนเปปไทด์แบบไม่มีไรโบโซม ข้อความดั้งเดิมสามารถอ่านได้ผ่านตัวปรับที่คล้าย tRNA ซึ่งสลับระหว่าง hf และ FH ในระหว่างการถ่ายโอนเปปไทด์ (ดูรูปที่ 49) ลักษณะของรูปแบบที่ทำงานอยู่ขึ้นอยู่กับว่าโมเลกุลที่คล้าย tRNA นั้นพากรดอะมิโนอยู่หรือเชื่อมต่อกับสายเปปไทด์ที่กำลังเจริญ การถ่ายโอนกรดอะมิโนไปยังสายเปปไทด์จะพลิกตัวปรับจาก hf เป็น FH ทำให้สามารถอ่านรหัสได้อย่างต่อเนื่องโดยไม่ต้องมีเครื่องมือการแปลรหัสที่ซับซ้อน การสัมผัสของห่วงแอนติโคดอนห้าคู่เบสและโครงสร้างห่วงสองแบบทำให้ peptidyl-tRNA ที่กำลังเจริญยังคงยึดติดกับข้อความ ความสอดคล้องของเฟรมและการถอดรหัสแบบไม่มีเครื่องหมายคั่นช่วยให้การอ่านรหัสอยู่ในเฟรมเดิมและไม่ยุบรวมไปเป็นเฟรมการอ่านที่ซ้อนทับหรือเป็นทางเลือกอื่น
เคมีที่อุดมด้วย GC และการกำหนดโคดอนในยุคแรก
ลำดับที่อุดมด้วย GC ให้ความเสถียรของดูเพล็กซ์และความแม่นยำที่สูงกว่า ทำให้มีแนวโน้มว่าเป็นสารตั้งต้นของตัวปรับและตัวนำข้อความชุดแรกที่สามารถทำซ้ำได้ ความไม่สมบูรณ์แบบ AU ในภายหลังสามารถนำมาซึ่งความแปรผันที่มีความสำคัญต่อการคัดเลือก การกำหนดโคดอนในยุคแรก เช่น GGC/GCC และขั้นต่อมาคือ GAC/GUC ถูกตีความผ่านเคมีเชิงฟิสิกส์และปริมาณนิวคลีโอไทด์ ไม่ใช่ผ่านเครื่องมือการแปลรหัสที่ทันสมัยเต็มรูปแบบ โครงตาข่าย GC แบบไม่เป็นคาบที่มีความไม่สมบูรณ์แบบ AU ซึ่งได้เปรียบในการคัดเลือก และเกณฑ์เชิงโครงสร้างที่รองรับตัวอักษรกรดอะมิโนปฐมภูมิ ช่วยเติมภาพให้สมบูรณ์
แนวคิดเหล่านี้ไม่ใช่การประดิษฐ์คิดค้นที่เป็นอิสระต่อกัน รูปแบบการเข้ารหัสเป็นข้อจำกัดต่อการถ่ายโอนที่คล้ายการแปลรหัส การถ่ายโอนที่คล้ายการแปลรหัสต้องอาศัยการปิดวงเชิงตัวเร่งปฏิกิริยา และเคมีที่อุดมด้วย GC กำหนดเกณฑ์ความเสถียรสำหรับทั้งสองอย่าง ภาพรวมที่ได้จึงมองว่ากำเนิดของการแปลรหัสและกำเนิดของรหัสพันธุกรรมเป็นปัญหาทางโมเลกุลที่เชื่อมโยงกัน
การสังเคราะห์การแปลรหัสและการเข้ารหัสดั้งเดิมแผนที่แนวคิดนี้ผสานความเชื่อมโยงเชิงตัวเร่งปฏิกิริยาแบบปิดระหว่างหน้าที่ที่เข้ารหัสโดย RNA การเข้ารหัสดั้งเดิมที่มีความสอดคล้องของเฟรมและการอ่านรหัสแบบไม่มีเครื่องหมายคั่น การถ่ายโอนเปปไทด์แบบไม่มีไรโบโซมผ่านการพลิกตัวปรับ hf/FH ความแม่นยำและความเสถียรจาก GC และการกำหนดโคดอนในยุคแรก เช่น GGC/GCC ลูกศรบ่งชี้ข้อจำกัดและการป้อนกลับซึ่งกันและกันระหว่างการแปลรหัส การเข้ารหัส และการจัดระเบียบแบบไฮเปอร์ไซเคิล