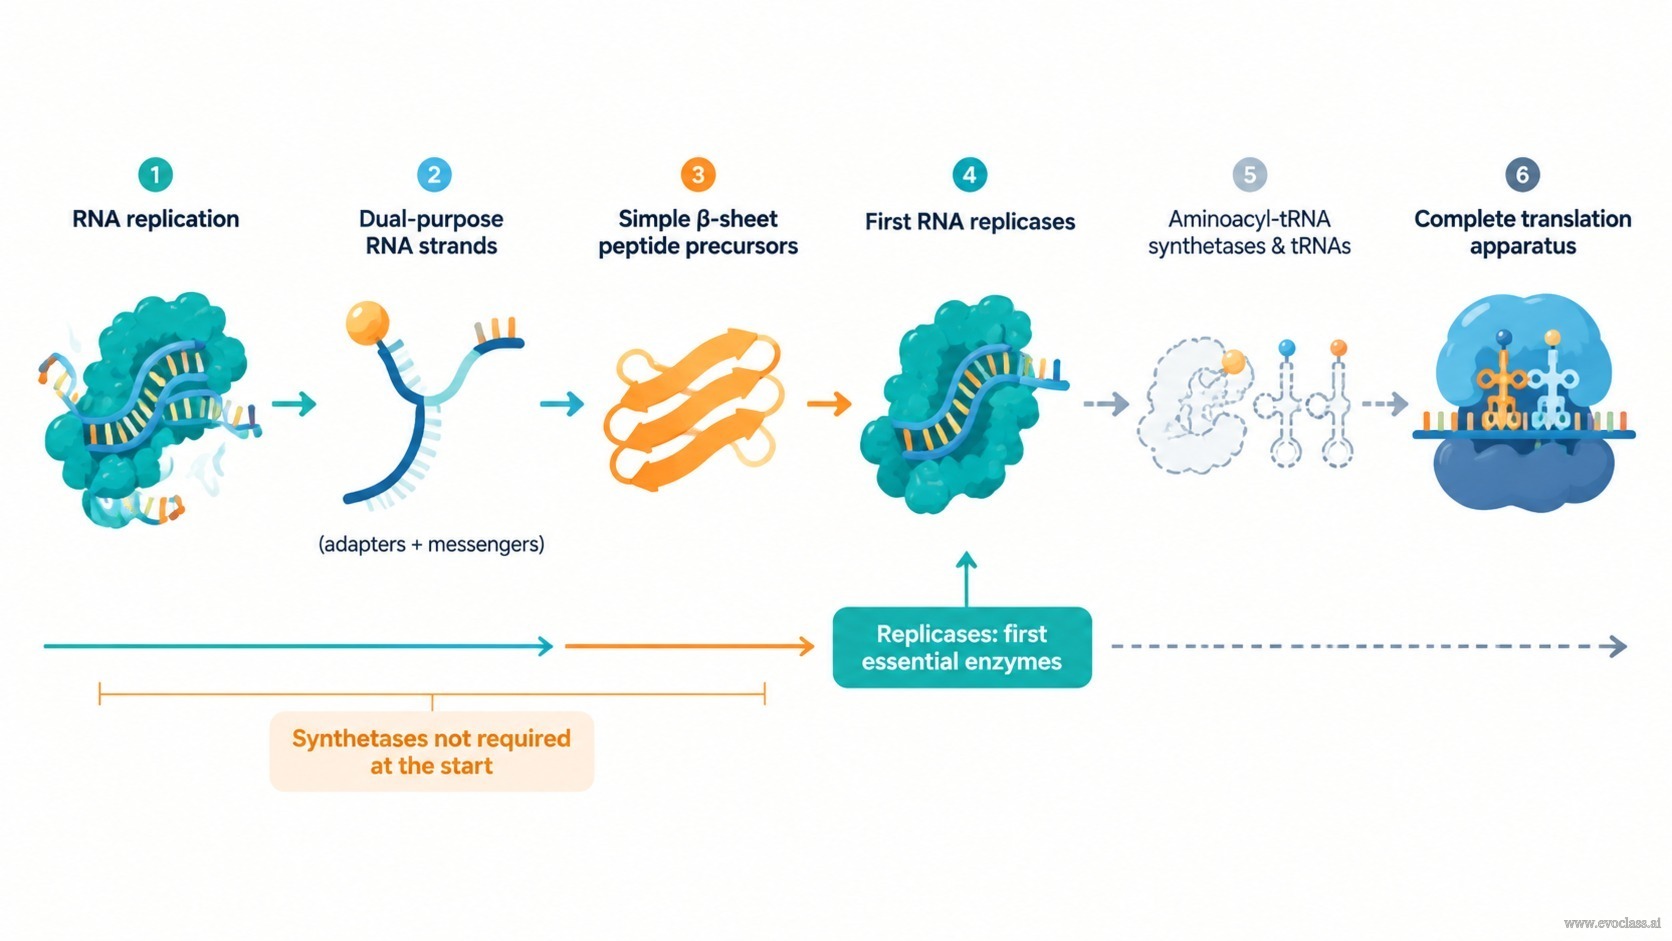
ขั้นตอนสุดท้ายของบทเรียนนี้ตั้งคำถามที่คมชัดโดยเจตนา: อะไรจะต้องมีอยู่ก่อนแล้ว เพื่อให้การสังเคราะห์เพปไทด์และการจัดเก็บข้อมูลเชื่อมโยงกันได้? เมื่ออ่านอย่างละเอียด เนื้อหาต้นฉบับไม่ได้ตอบว่า "เครื่องมือแปลรหัสอย่างง่าย" คำตอบก็คือ ระบบแรกสุดเป็น ระบบตัวเร่งปฏิกิริยาถ่ายทอดทางพันธุกรรมแบบน้อยที่สุดซึ่งสาย RNA ทำหน้าที่เป็นทั้งตัวส่งสารและตัวเชื่อมต่อในเวลาเดียวกัน และตัวเร่งปฏิกิริยาที่ขาดไม่ได้อย่างแท้จริงชนิดแรกคือ รีพลิเคส — ไม่ใช่อะมิโนแอซิล-tRNA ซินทีเทส.
การเชื่อมโยงเชิงหน้าที่ก่อนที่จะมีเครื่องมือที่สมบูรณ์
การเชื่อมโยงเชิงหน้าที่หมายความว่าตัวเชื่อมต่อที่บรรทุกกรดอะมิโนและตัวส่งสารที่บรรทุกแม่แบบถูกจดจำโดยกลไกพื้นฐานเดียวกัน หากสาย RNA เดียวกันสามารถพับเป็นโครงรูปคล้ายตัวเชื่อมต่อและยังทำหน้าที่เป็นแม่แบบได้ จำนวนองค์ประกอบอิสระที่จำเป็นสำหรับการสังเคราะห์เพปไทด์คล้ายการแปลรหัสจะลดลงอย่างมาก ในรูปแบบเช่นนี้ การสร้างพันธะเพปไทด์จึงเป็นไปได้ ก่อน ที่จะมีไรโบโซม ก่อนที่จะมี tRNA ครบชุด และก่อนที่จะมีซินทีเทสใดๆ
- สายสองหน้าที่ RNA เพียงสายเดียวสามารถรวมบทบาทตัวส่งสาร (แม่แบบ) และบทบาทตัวเชื่อมต่อเข้าด้วยกัน ซึ่งเป็นสิ่งที่ระบบแปลรหัสขั้นต่ำยุคแรกต้องการพอดี
- การเติมประจุโดยตรง ความสัมพันธ์ระหว่าง RNA กับกรดอะมิโนและการถ่ายโอนเพปไทด์โดยไม่ใช้ไรโบโซมสามารถให้ขั้นตอนการกระตุ้นเริ่มต้นที่ซินทีเทสทำในเซลล์สมัยใหม่ได้
- ความยืดหยุ่นของโครงรูป ความยืดหยุ่นที่เปิดเผยจากการเรียงลำดับ tRNA คือสิ่งที่ทำให้สายเดียวสามารถทำหน้าที่สองบทบาทพร้อมกันได้
- ตัวเร่งปฏิกิริยาง่ายๆ เพปไทด์ที่มีฤทธิ์เชิงหน้าที่ชนิดแรกน่าจะเป็น β-sheet สั้นหรือเพปไทด์ตัวเร่งปฏิกิริยาขนาดเล็ก มากกว่าเอนไซม์ทรงกลมที่พับตัวแบบสมัยใหม่ซึ่งมีช่องว่างบริเวณเร่งปฏิกิริยาลึกๆ
ซินทีเทสและ tRNA แยกในฐานะการปรับปรุงภายหลัง
หากการเติมประจุเริ่มต้นและหน้าที่ตัวเชื่อมต่อสามารถทำได้โดยไม่ต้องมีเอนไซม์เฉพาะทาง อะมิโนแอซิล-tRNA ซินทีเทสและโมเลกุล tRNA อิสระก็กลายเป็น การควบคุมคุณภาพ องค์ประกอบมากกว่าข้อกำหนดเบื้องต้น พวกมันกระชับความสอดคล้องระหว่างโคดอนและกรดอะมิโนและเพิ่มความแม่นยำในการแปลรหัส ดังนั้นจึงควรเข้าใจว่าพวกมันคือการปรับปรุงที่เกิดขึ้นหลังจากระบบเชื่อมโยงเริ่มจำลองแบบและอยู่ภายใต้การคัดเลือกแล้ว — ไม่ใช่เงื่อนไขที่ทำให้การเชื่อมโยงเกิดขึ้นได้ตั้งแต่แรก
รีพลิเคส: เอนไซม์จำเป็นชนิดแรก
การเชื่อมโยงเพียงอย่างเดียวไม่เพียงพอ ไม่ว่าวัฏจักรคล้ายการแปลรหัสจะงดงามเพียงใด มันก็สูญสิ้นไปพร้อมกับการตายของโมเลกุลของมัน เว้นแต่ข้อมูลที่เข้ารหัสมันสามารถถูกคัดลอกได้ นี่คือข้อโต้แย้งชี้ขาดของสไลด์นี้: การจำลองแบบคือสิ่งที่เปลี่ยนการเชื่อมโยงทางเคมีครั้งเดียวให้เป็นหน้าที่ที่ถ่ายทอดทางพันธุกรรมและคัดเลือกได้. RNA รีพลิเคส — โดยมี Qβ midivariant de-novo synthesis เป็นแบบจำลองเชิงทดลองของระบบ RNA ขั้นต่ำที่ใช้รีพลิเคสเป็นศูนย์กลางเช่นนี้ — ให้ความสามารถนี้พอดี เมื่อการจำลองแบบและตัวเร่งปฏิกิริยาเพปไทด์ถูกเชื่อมโยงเชิงหน้าที่แล้ว โปรตีนที่เป็นเอนไซม์อย่างแท้จริงชนิดแรกก็สามารถเกิดขึ้นและคงอยู่ได้
ขีดจำกัดความแม่นยำตอกย้ำข้อสรุปเดียวกัน เครื่องมือแปลรหัสที่สมบูรณ์ต้องมีองค์ประกอบจำนวนมากที่ปฏิสัมพันธ์กันอย่างแม่นยำ ที่อัตราความผิดพลาดที่คาดว่าจะเกิดกับรีพลิเคสยุคแรก เครื่องมือขนาดใหญ่เช่นนั้นไม่สามารถคงอยู่ได้เมื่อเทียบกับขีดจำกัดความผิดพลาด ในขณะที่ RNA สายสั้นในรูป quasi-species ที่ถูกรีพลิเคสคัดลอกทำได้ ดังนั้นแผนแบบรีพลิเคสก่อนขั้นต่ำจึงไม่ใช่การทำให้ง่ายขึ้นเพื่อความสะดวก แต่เป็นผลโดยตรงจากขีดจำกัดความแม่นยำของยุคนั้น ซินทีเทส tRNA แยก และการแปลรหัสแบบเต็มรูปแบบปรากฏในภายหลังในฐานะการปรับปรุงที่เพิ่มความแม่นยำซึ่งซ้อนทับบนแกนกลางที่ถ่ายทอดทางพันธุกรรมแล้ว
ลำดับเวลาเซลล์ขั้นต่ำเส้นทางจากซ้ายไปขวาแสดงการจำลองแบบ RNA สาย RNA สองหน้าที่ที่ทำหน้าที่เป็นทั้งตัวเชื่อมต่อและตัวส่งสาร สารตั้งต้นเพปไทด์ β-sheet แบบง่าย และรีพลิเคสชนิดแรกที่เน้นว่าเป็นสิ่งจำเป็น ตามด้วยซินทีเทสในภายหลังและ tRNA แยก และสุดท้ายคือเครื่องมือแปลรหัสที่สมบูรณ์ ข้อสรุปเชิงเหตุและผลคือเรื่องของลำดับ: การเชื่อมโยงเชิงหน้าที่สามารถเกิดขึ้นก่อนเครื่องมือที่สมบูรณ์ แต่ไม่มีสิ่งใดในระบบที่จะถ่ายทอดทางพันธุกรรมได้โดยไม่มีรีพลิเคส