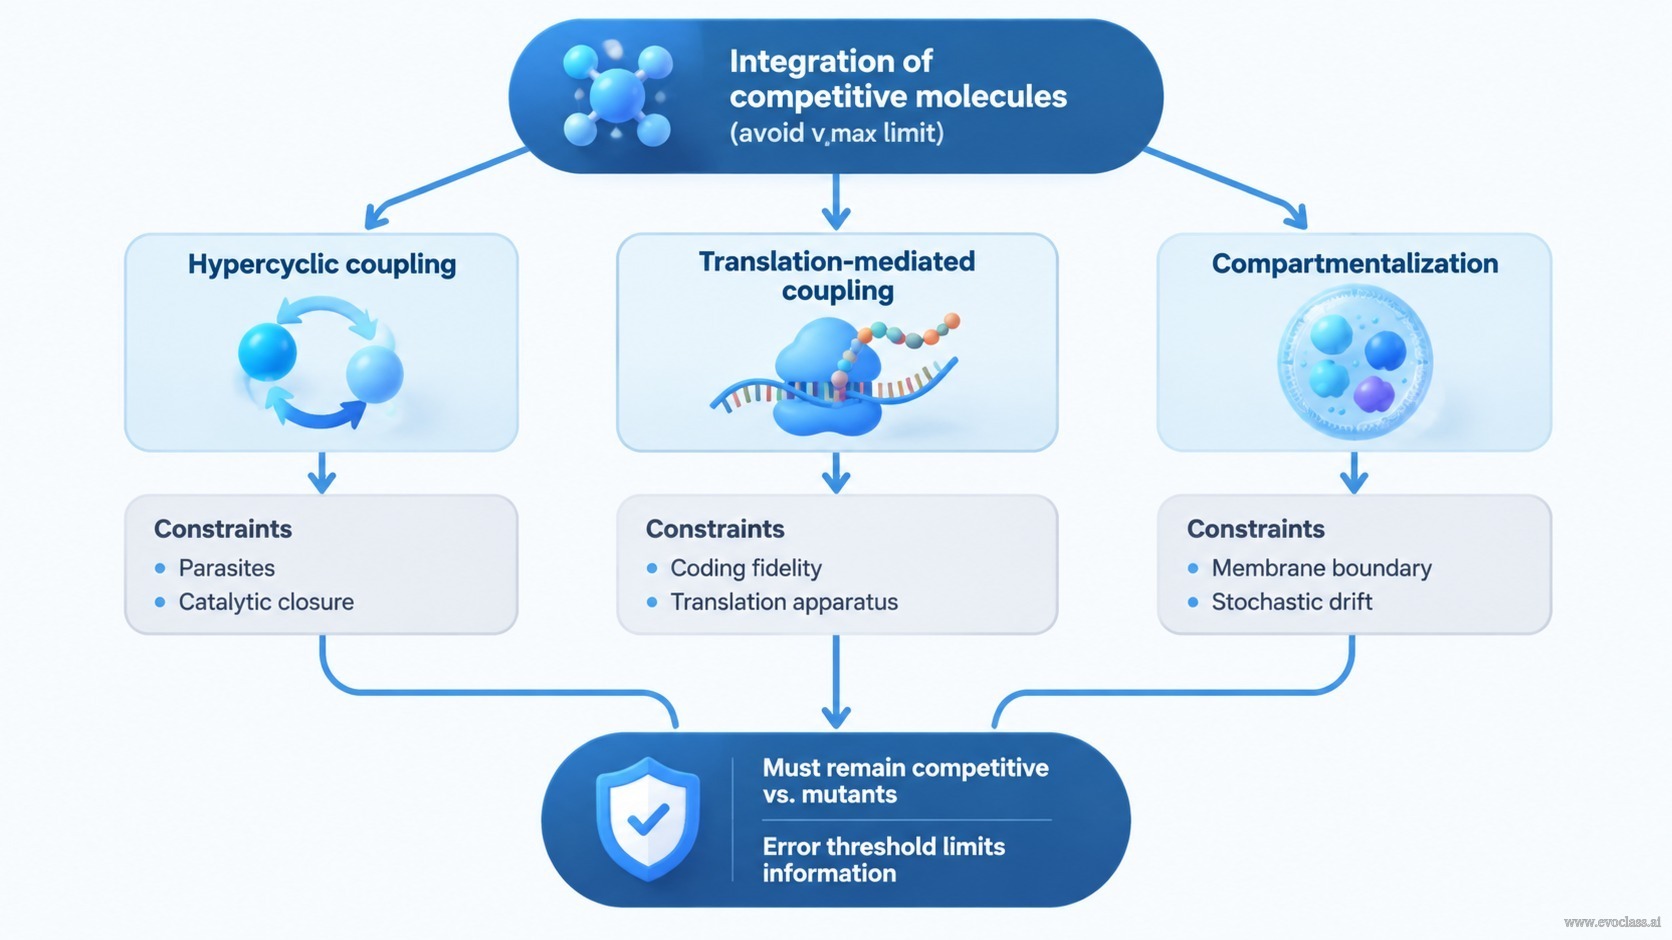
การรวมตัวของโมเลกุลที่จำลองตัวเองแบบแข่งขันกันเผชิญกับข้อจำกัดพื้นฐาน นั่นคือ ขีดจำกัดความผิดพลาด (error threshold) หน่วยจำลองตัวเองแบบยาวเพียงหน่วยเดียว ซึ่งได้มา เช่น จากการเชื่อมยีนหลายยีนเข้าเป็นจีโนมเดียว จะสะสมการกลายพันธุ์มากเกินไปในแต่ละรอบการจำลองตัวเอง เมื่ออัตราการกลายพันธุ์เกินขีดจำกัด ลำดับมาสเตอร์จะสูญหายไป และข้อมูลจำเพาะที่เข้ารหัสอยู่ในหน่วยนั้นก็เสื่อมสลาย ดังนั้น การรวมตัวจึงไม่อาจทำได้เพียงแค่สร้างโมเลกุลให้ยาวขึ้นหนึ่งโมเลกุล หน่วยที่รวมตัวกันแล้วต้องยังคงสามารถถูกคัดเลือกได้เมื่อเทียบกับการกระจายตัวของ mutant ของตัวเอง
มีข้อเสนอเส้นทางทางเลือกสามเส้นทางสำหรับการรวมตัวของโมเลกุลที่แข่งขันกันโดยไม่ละเมิดความสัมพันธ์ของขีดจำกัดสำหรับ
- การเชื่อมโยงแบบไฮเปอร์ไซเคิล: ยีนต่าง ๆ เชื่อมโยงกันผ่านวัฏจักรตัวเร่งปฏิกิริยาแบบปิด ดังนั้นการจำลองตัวเองของแต่ละยีนจึงขึ้นอยู่กับผลผลิตของยีนอื่น ๆ สิ่งนี้สร้างหน่วยของการคัดเลือกในระดับไฮเปอร์ไซเคิล แต่ยังคงเปราะบางต่อ mutant แบบปรสิต และต้องมีการปิดวงจรตัวเร่งปฏิกิริยา
- การเชื่อมโยงผ่านการแปลรหัส: ยีนเข้ารหัสโปรตีนที่ทำงานได้จริง (เช่น รีพลิเคสหรือซินทีเทส) ซึ่งเร่งปฏิกิริยาการจำลองตัวเองหรือการแปลรหัส สิ่งนี้อนุญาตให้มีการแบ่งงานกันทำ และสามารถรวมข้อมูลได้มากกว่าจีโนม RNA เดียว แต่ต้องมีเครื่องมือเข้ารหัสและเผชิญกับข้อจำกัดด้านความแม่นยำ
- การแบ่งเป็นช่อง: ยีนที่ร่วมมือกันถูกบรรจุอยู่ในช่องเดียวกัน (โปรโตเซลล์) ดังนั้นการคัดเลือกจึงกระทำต่อช่องนั้นโดยรวม สิ่งนี้สามารถทำให้การรวมตัวมีเสถียรภาพและจำกัดการเอาเปรียบของปรสิต แต่ก็เพิ่มการดูแลรักษาขอบเขต ผลกระทบเชิงสุ่ม และข้อจำกัดด้านการจำลองตัวเองที่ต้องประสานกัน
เส้นทางเหล่านี้ไม่ได้แยกออกจากกันโดยสิ้นเชิง วิวัฒนาการยุคแรกอาจรวมการจัดระเบียบแบบไฮเปอร์ไซเคิล การแปลรหัส และการแบ่งเป็นช่องเข้าด้วยกันเพื่อให้ได้จีโนมที่รวมตัวกัน ข้อจำกัดร่วมคือแต่ละเส้นทางต้องอยู่ภายในขีดจำกัดความผิดพลาดและจัดการกับภาระของ mutant: การรวมตัวเป็นปัญหาเชิงการคัดเลือก ไม่ใช่เพียงการเชื่อมโยงทางกายภาพ
สามเส้นทางสู่การรวมตัวแผนภาพแสดงปัญหาการรวมตัวหลักที่แยกออกเป็นการเชื่อมโยงแบบไฮเปอร์ไซเคิล การเชื่อมโยงผ่านการแปลรหัส และการแบ่งเป็นช่อง ลูกศรจากแต่ละเส้นทางนำไปสู่ข้อจำกัดร่วม: ยังคงแข่งขันได้กับ mutant และอยู่ภายในขีดจำกัดความผิดพลาด