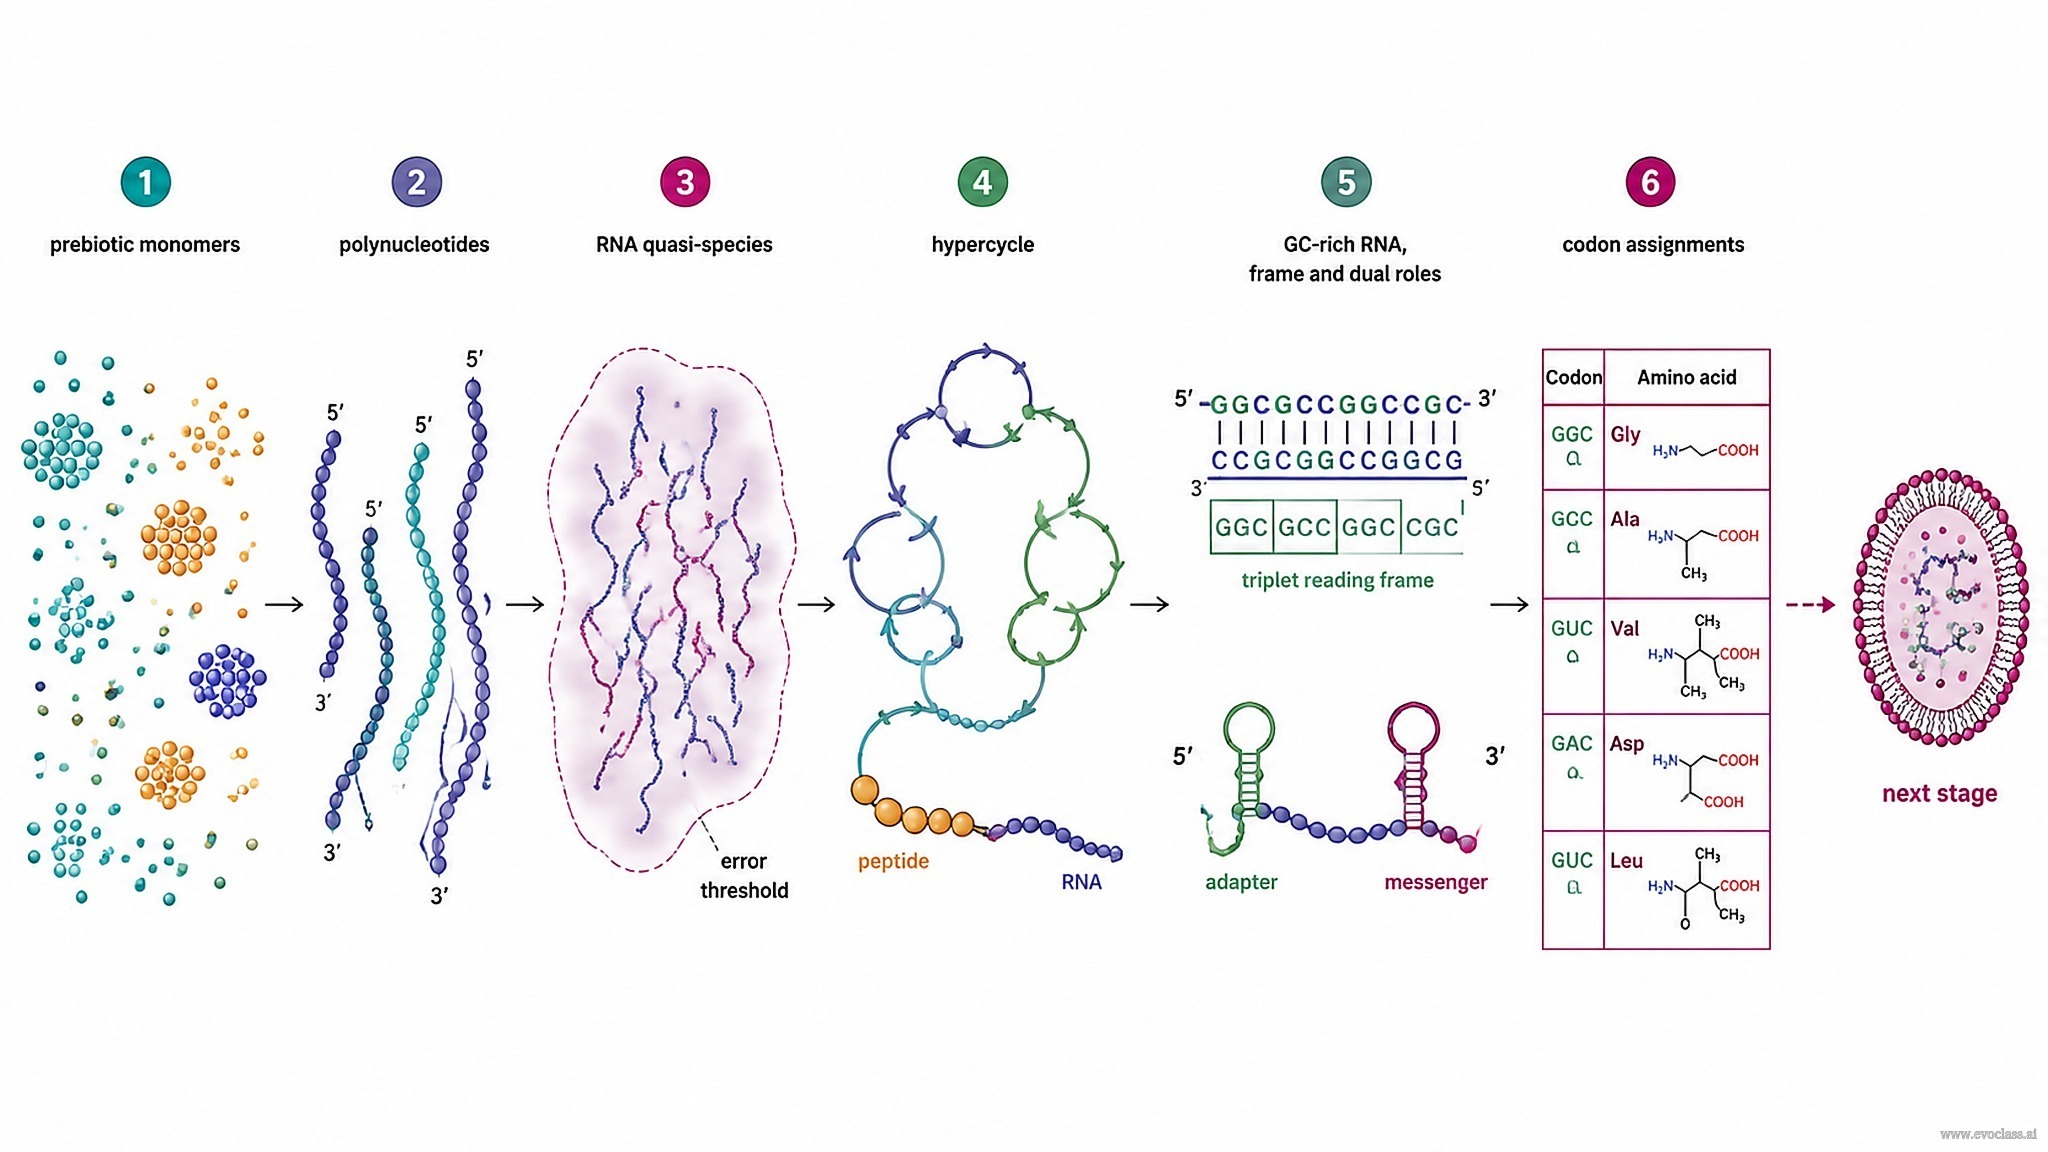
หน้านี้รวบรวมข้อเสนอเกี่ยวกับ ความต่อเนื่องจากมหาโมเลกุลก่อนกำเนิดสิ่งมีชีวิตสู่การกำหนดรหัสโคดอนครั้งแรก ข้อเสนอนี้ไม่ได้อ้างว่าเหตุการณ์เดียวสร้างรหัสพันธุกรรมขึ้นมา แต่เป็นการที่ลำดับขั้นทางกายภาพและสารสนเทศค่อย ๆ จำกัดขอบเขตของการกำหนดรหัสที่เป็นไปได้ลงเรื่อย ๆ จนเหลือเพียงการจับคู่ระหว่างกลุ่มเบสสามตัวกับกรดอะมิโนเพียงชุดเล็ก ๆ ที่ใช้งานได้จริง
1. กลุ่มเริ่มต้นที่ไม่ใช่แบบสุ่ม
การสังเคราะห์ก่อนกำเนิดสิ่งมีชีวิตไม่ได้ให้ส่วนผสมที่สม่ำเสมอ กรดอะมิโนและนิวคลีโอไทด์สะสมตัวด้วย ความอุดมที่ไม่ใช่แบบสุ่มอย่างชัดเจน และความเอนเอียงเหล่านั้นส่งผลต่อขึ้นไปเป็นทอด ๆ: มอนอเมอร์ชนิดใดที่มีมากและคงทนอยู่ได้ ก็จะเป็นชนิดที่พร้อมใช้งานจริงสำหรับการเชื่อมโยงการเข้ารหัสในยุคแรก ๆ ความพร้อมใช้งาน มิใช่การปรับให้เหมาะสมที่สุด คือสิ่งที่กำหนดเมนูเริ่มต้นที่การกำหนดรหัสใด ๆ ต้องเลือกจาก
2. พอลินิวคลีโอไทด์ในฐานะควอซีสปีชีส์ มิใช่โมเลกุลเดี่ยว
พอลินิวคลีโอไทด์ยุคแรกไม่ได้วิวัฒน์เป็นลำดับเดียวที่ปรับให้เหมาะสมที่สุด แต่เป็น ควอซีสปีชีส์: กลุ่มของสายพันธุ์ย่อยที่สัมพันธ์กันซึ่งอยู่ในสมดุลการกลายพันธุ์–การคัดเลือก ปริมาณสารสนเทศของมันถูกจำกัดด้วยขีดจำกัดความผิดพลาด — หากอัตราการกลายพันธุ์ต่อตำแหน่งสูงเกินไป ลำดับหลักจะสลายกลายเป็นการกระจายตัวของผู้กลายพันธุ์ที่แบนราบและไม่มีสารสนเทศ ความแม่นยำในการจำลองแบบที่ต่ำยังก่อให้เกิดภาระของผู้กลายพันธุ์ที่กดทับโมเลกุลที่ยาวกว่า การเข้ารหัสยุคแรกจึงเริ่มจากลำดับสั้น ๆ ที่ถูกจำกัดด้วยขีดจำกัดความผิดพลาด มิใช่จากโปรโทจีโนมที่ยาว
3. การเชื่อมโยงเชิงหน้าที่และโครงสร้างแบบไฮเปอร์ไซเคิล
การเชื่อมโยงการเร่งปฏิกิริยาของ RNA เข้ากับหน้าที่ของเพปไทด์ทำให้ตัวจำลองแบบที่โดยปกติจะแข่งขันกันสามารถเกื้อหนุนกันได้ โครงสร้างแบบไฮเปอร์ไซเคิล เป็นแนวทางที่เสนอเพื่อบูรณาการหน้าที่เหล่านี้และตอบข้อโต้แย้งมาตรฐาน ได้แก่ การก่อกำเนิด (วงจรเริ่มต้นขึ้นได้อย่างไร) ปรสิต (สายพันธุ์ที่สั้นกว่าซึ่งฉวยประโยชน์จากวงจรโดยไม่Contributing) และการสูญเสียสารสนเทศ การเชื่อมโยงช่วยให้การปฏิสัมพันธ์คล้ายการเข้ารหัสมีเสถียรภาพก่อนที่จีโนมใด ๆ จะเกิดขึ้น
4. ข้อจำกัดที่กำหนดรูปร่างของการเข้ารหัสยุคแรก
- การจำลองแบบที่อุดมด้วย GC ทำให้ปริภูมิลำดับที่เข้าถึงได้เอนเอียงไปทางแม่แบบที่อุดมด้วย G/C
- เฟรมแบบไม่มีเครื่องหมายคั่น หลีกเลี่ยงความกำกวมจากการเลื่อนเฟรม ดังนั้นจึงมีเพียงรหัสกลุ่มเบสสามตัวบางแบบเท่านั้นที่อ่านได้โดยไม่ต้องมีตัวคั่น
- RNA เอนกประสงค์: โมเลกุลเดียวกันอาจทำหน้าที่เป็นตัวปรับที่พากรดอะมิโนและเป็นตัวนำสารที่ถูกอ่าน ดังนั้นการกำหนดรหัสใด ๆ ต้องตอบสนองทั้งสองบทบาทพร้อมกัน
5. การกำหนดรหัสครั้งแรกและเส้นทางต่อไป
ภายใต้ข้อจำกัดเหล่านี้ การกำหนดรหัสโคดอนในยุคแรกสุดน่าจะเกี่ยวข้องกับกลุ่มเบสสามตัวคล้าย GGC/GCC ที่จับคู่กับ กรดอะมิโนอะลิฟาติกที่ค่อนข้างอุดมสมบูรณ์ การเปลี่ยนผ่านเป็นแบบค่อยเป็นค่อยไป มิใช่การกระโดดข้าม: มันต้องมีสารสนเทศที่ถูกจำกัดด้วยขีดจำกัดความผิดพลาด การปิดวงจรการเร่งปฏิกิริยา และกว่า�ะมีการแบ่งเป็นช่องในภายหลัง ซึ่งรวมจีโนมให้เป็นหนึ่งเดียวภายในขอบเขตเดียวและให้กำเนิดโพรโทเซลล์ที่บูรณาการแล้ว
วัตถุประสงค์โดยสรุป: สามารถเล่าลำดับเหตุการณ์ที่เสนอได้ — มหาโมเลกุลและควอซีสปีชีส์ ตามด้วยการกำหนดรหัสโคดอน จากนั้นไฮเปอร์ไซเคิลที่แบ่งเป็นช่อง และสุดท้ายโพรโทเซลล์ที่บูรณาการแล้ว
จากมหาโมเลกุลสู่การกำหนดรหัสโคดอนเส้นทางความต่อเนื่องเชิงเส้นที่แหล่งรวมมอนอเมอร์ก่อนกำเนิดสิ่งมีชีวิตแบบไม่สุ่มป้อนเข้าสู่แหล่งรวมพอลินิวคลีโอไทด์ ซึ่งคงอยู่เป็นควอซีสปีชีส์ของ RNA ภายใต้สมดุลการกลายพันธุ์–การคัดเลือกที่ถูกจำกัดด้วยขีดจำกัดความผิดพลาด จากนั้นการเชื่อมโยงเชิงหน้าที่ระหว่าง RNA–เพปไทด์และโครงสร้างแบบไฮเปอร์ไซเคิลช่วยสนับสนุนเฟรมแบบไม่มีเครื่องหมายคั่นที่อุดมด้วย GC พร้อมตัวปรับและตัวนำสารเอนกประสงค์ ซึ่งนำไปสู่การกำหนดรหัสโคดอนครั้งแรก — โดยมีไฮเปอร์ไซเคิลที่แบ่งเป็นช่อง โพรโทเซลล์ที่บูรณาการแล้ว และจีโนมรวมหนึ่งเดียวถูกระบุเป็นขั้นถัดไป มิใช่ส่วนหนึ่งของขั้นนี้