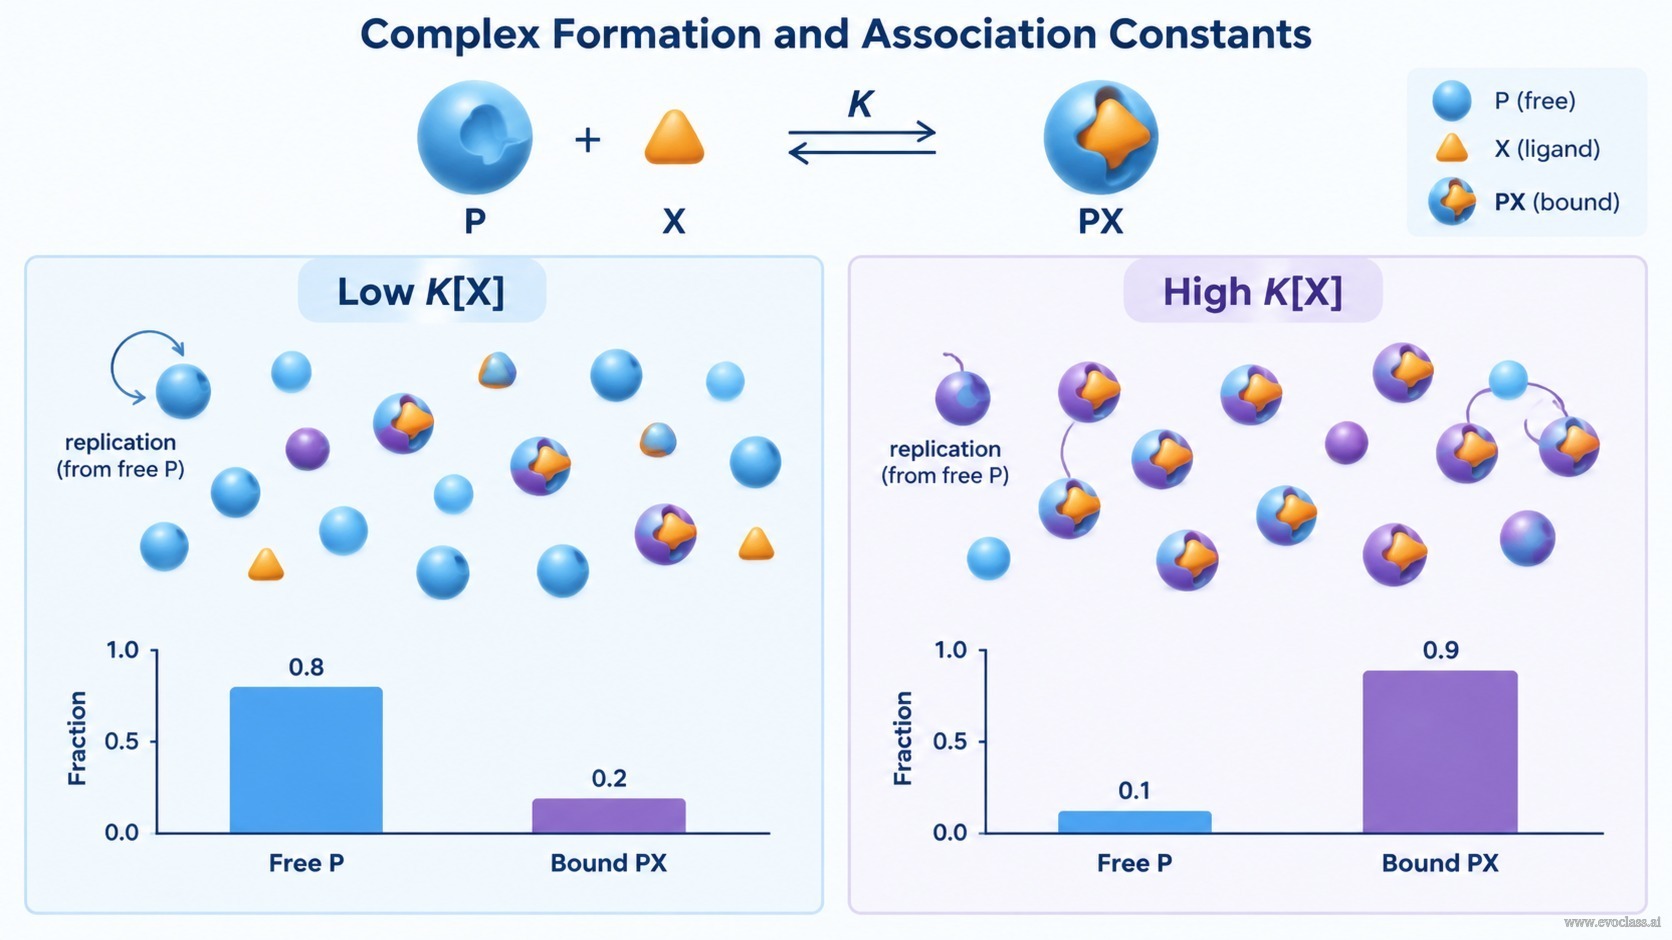
Trong các chu trình siêu tuần hoàn ghép dịch mã, khuôn polynucleotide P không chỉ được sao chép mà còn được dịch mã thành sản phẩm polypeptide X. Hai loài này có thể liên kết thuận nghịch để tạo thành một phức hợp PX. Hằng số kết hợp K quy định sự phân chia cân bằng giữa dạng phức hợp và dạng tự do, từ đó kiểm soát lượng khuôn tự do còn lại sẵn sàng cho quá trình sao chép.
Phản ứng liên kết là thuận nghịch: P + X ⇌ PX. Theo quy ước, hằng số kết hợp cân bằng là K = [PX] / ([P][X]). K lớn hơn ưu tiên phức hợp liên kết PX, trong khi K nhỏ hơn ưu tiên các thành phần tự do. Ở trạng thái cân bằng, [PX]/[P] = K[X] và [PX]/[X] = K[P], do đó K và nồng độ của đối tác tự do cùng nhau xác lập tỷ lệ phức hợp trên tự do.
Bảo toàn khối lượng và khuôn tự do
Bảo toàn khối lượng yêu cầu nồng độ tổng được phân chia thành dạng tự do và dạng liên kết: [P]tot = [P]free + [PX] và [X]tot = [X]free + [PX]. Bước sao chép phụ thuộc vào nồng độ khuôn tự do [P]free, chứ không phụ thuộc vào nồng độ khuôn tổng. Do đó, sự tạo phức làm giảm khuôn tự do và có thể làm giảm thông lượng sao chép hiệu dụng.
- Phần trăm liên kết tăng theo K và theo X tự do. K[X] thấp giữ phần lớn khuôn ở dạng tự do, trong khi K[X] cao làm bão hòa sự hình thành phức hợp.
- Vì X được tạo ra bởi dịch mã, sự hình thành phức hợp gắn kết quá trình tổng hợp polypeptide với tính sẵn có của khuôn và do đó với động lực sao chép siêu tuần hoàn.
Trong bức tranh siêu tuần hoàn rộng hơn, sự giữ lại thuận nghịch này chuyển đổi hệ thống giữa các chế độ. Khi K[X] nhỏ, phần lớn khuôn ở dạng tự do và chu trình siêu tuần hoàn ghép dịch mã có thể hoạt động như một siêu tuần hoàn cơ bản hoặc một chu trình xúc tác đơn giản. Khi K[X] lớn, sự tạo phức loại bỏ khuôn tự do khỏi quá trình sao chép và có thể làm giảm dao động, thay đổi biên độ chu trình giới hạn, hoặc đẩy hệ thống về chế độ nồng độ thấp. Gần một phân nhánh Hopf, những thay đổi như vậy trong phản hồi hiệu dụng cũng có thể điều chỉnh sự chậm lại tới hạn và tính ổn định của trạng thái dao động.
Sự hình thành phức hợp và hằng số kết hợpPhản ứng P + X ⇌ PX với hằng số kết hợp K phân chia tổng lượng khuôn thành P tự do và PX liên kết. Biểu đồ cột cho thấy việc tăng K[X] chuyển phần trăm liên kết từ thấp lên gần bão hòa, để lại ít P tự do hơn cho quá trình sao chép.