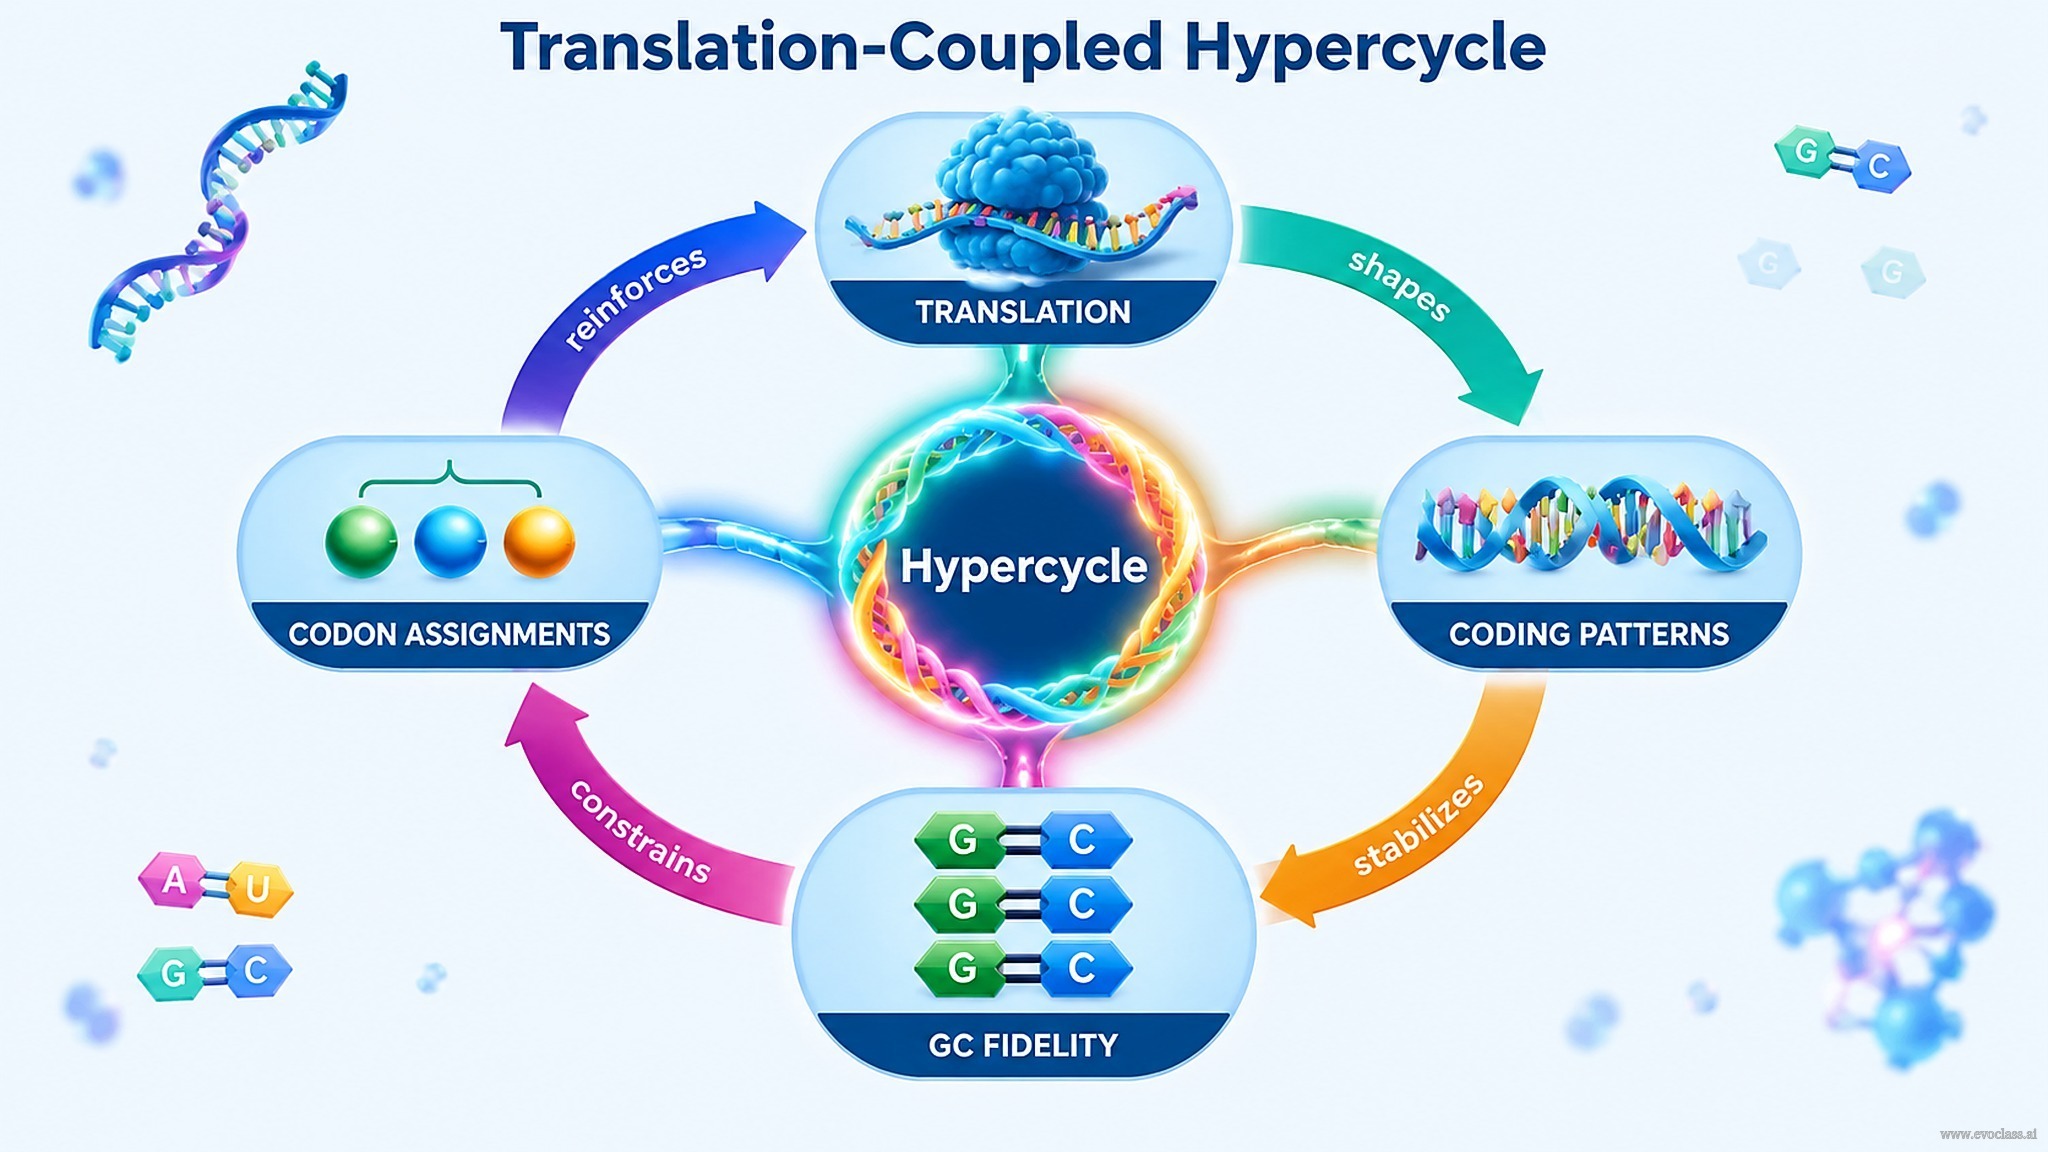
Trang này tích hợp ba luồng nội dung trước đây vốn tách biệt thành một kịch bản tiền sinh học mạch lạc: động học siêu chu trình ghép với dịch mã, logic mã hóa nguyên thủy, và hóa học RNA giàu GC. Sự tổng hợp cho thấy một siêu chu trình thực tế không thể được lắp ghép chỉ từ các số hạng sao chép và dịch mã dùng chung; nó đòi hỏi một liên kết xúc tác khép kín giữa các chức năng do RNA mã hóa.
Từ một tập hợp đang phân rã đến một liên kết xúc tác khép kín
Một sơ đồ tối thiểu, trong đó một tập hợp các sợi RNA mã hóa một replicase và bốn chức năng synthetase, minh họa vấn đề này. Khi các số hạng sao chép và dịch mã được dùng chung, chúng thu gọn thành một hàm tăng trưởng chung duy nhất, khiến tập hợp phân rã do cạnh tranh nội bộ. Thành phần còn thiếu là một liên kết xúc tác khép kín: mỗi chức năng do RNA mã hóa phải đóng góp vào việc sao chép hoặc dịch mã của các chức năng khác, để tập thể tồn tại như một siêu chu trình thay vì một tập hợp các khuôn mẫu cạnh tranh nhau.
Mã hóa nguyên thủy và đọc mã không cần ribosome
Mã hóa nguyên thủy phải giải quyết tính mạch lạc khung, việc đọc mã không dấu phẩy và chuyển peptide không cần ribosome. Một thông điệp nguyên thủy có thể được đọc thông qua các adapter giống tRNA, vốn chuyển đổi giữa các cấu hình hf và FH trong quá trình chuyển peptide (xem Hình 49). Cấu hình hoạt động phụ thuộc vào việc phân tử giống tRNA mang một axit amin hay được gắn vào một chuỗi peptide đang phát triển. Việc chuyển một axit amin vào chuỗi peptide sẽ lật adapter từ hf sang FH, cho phép đọc mã liên tục mà không cần một bộ máy dịch mã phức tạp. Tiếp xúc vòng anticodon năm cặp base và hai cấu hình vòng giữ một peptidyl-tRNA đang phát triển gắn với thông điệp. Tính mạch lạc khung và giải mã không dấu phẩy đảm bảo rằng việc đọc mã luôn giữ đúng khung và không sụp đổ thành các khung đọc chồng lấn hoặc thay thế.
Hóa học giàu GC và các gán mã codon sớm
Các trình tự giàu GC mang lại độ ổn định và độ trung thực duplex cao hơn, khiến chúng có khả năng là tiền thân của những adapter và thông điệp có thể tái tạo đầu tiên. Những khiếm khuyết AU sau này có thể đưa vào những biến dị có ý nghĩa chọn lọc. Các gán mã codon sớm, chẳng hạn như GGC/GCC và bước GAC/GUC tiếp theo, được lý giải thông qua hóa lý và độ phong phú nucleotide, chứ không phải thông qua một bộ máy dịch mã hoàn toàn hiện đại. Mạng tinh thể GC không tuần hoàn với những khiếm khuyết AU có lợi về mặt chọn lọc, cùng các tiêu chí cấu trúc đằng sau bảng chữ cái axit amin sơ khai, hoàn thiện bức tranh.
Những luồng nội dung này không phải là những phát kiến độc lập. Các mô thức mã hóa ràng buộc việc chuyển giống dịch mã, việc chuyển giống dịch mã đòi hỏi sự khép kín xúc tác, và hóa học giàu GC đặt ngưỡng ổn định cho cả hai. Kịch bản thu được coi nguồn gốc của dịch mã và nguồn gốc của mã di truyền là những vấn đề phân tử gắn kết với nhau.
Tổng hợp về Dịch mã và Mã hóa Nguyên thủyBản đồ khái niệm này tích hợp liên kết xúc tác khép kín giữa các chức năng do RNA mã hóa, mã hóa nguyên thủy với tính mạch lạc khung và đọc mã không dấu phẩy, chuyển peptide không cần ribosome nhờ sự lật adapter hf/FH, độ trung thực và độ ổn định giàu GC, cùng các gán mã codon sớm như GGC/GCC. Các mũi tên biểu thị những ràng buộc lẫn nhau và phản hồi giữa dịch mã, mã hóa và tổ chức siêu chu trình.